segunda-feira, 28 de junho de 2021


Primeiro macaco fóssil da América do Norte e intercâmbio biótico tropical no início do Mioceno

Abstrato

Os macacos do Novo Mundo (platirrinos) são uma parte diversa dos ecossistemas tropicais modernos na América do Norte e do Sul, mas sua história evolutiva inicial nos trópicos é amplamente desconhecida. As estimativas de divergência molecular sugerem que os primatas chegaram à América Central tropical, a extensão mais meridional da massa de terra norte-americana, com várias dispersões da América do Sul começando com o surgimento do istmo do Panamá 3-4 milhões de anos atrás (Ma) 1. A completa ausência de fósseis de primatas da América Central, entretanto, limitou nossa compreensão de sua história no Novo Mundo. Aqui apresentamos a primeira descrição de um macaco fóssil recuperado da massa de terra norte-americana, a mais antiga coroa platirrina conhecida, de uma camada datada precisamente de 20,9 Ma na Formação Las Cascadas na Bacia do Canal do Panamá, Panamá. 

Esta descoberta sugere que a diversificação em nível de família dos macacos existentes do Novo Mundo ocorreu nos trópicos, com novas estimativas de divergência para Cebidae entre 22 e 25 Ma, e fornece a evidência fóssil mais antiga para o intercâmbio de mamíferos entre as Américas do Sul e do Norte. O momento é consistente com as reconstruções tectônicas recentes 2 , 3de um canal marítimo da América Central relativamente estreito no início do Mioceno, coincidente com as dispersões sobre a água inferidas para muitos outros grupos de animais e plantas 4 . A descoberta de um primata do Mioceno no Panamá fornece evidências de uma distribuição tropical circuncaribenha de macacos do Novo Mundo nesta época, com barreiras oceânicas não restringindo totalmente seus movimentos para o norte, exigindo um conjunto complexo de fatores ecológicos para explicar sua ausência em amostras bem amostradas. localidades com idades semelhantes em latitudes mais altas da América do Norte.

Referências

  1. 1

    Kay, RF Biogeography in deep time - o que a filogenética, a geologia e o paleoclima nos dizem sobre a evolução dos primeiros platirrinos? Mol. Phylogenet. Evol. 82 , 358-374 (2015)

    Artigo  Google Scholar 

  2. 2

    Farris, DW et al. Fratura do istmo do Panamá durante a colisão inicial com a América do Sul. Geology 39 , 1007–1010 (2011)

    PUBLICIDADES  CAS  Artigo  Google Scholar 

  3. 3

    Montes, C. et al. Evidências para o Eoceno médio e a emergência de terras mais jovens no centro do Panamá: implicações para o fechamento do istmo. Geol. Soc. Sou. Touro. 124 , 780-799 (2012)

    PUBLICIDADES  CAS  Artigo  Google Scholar 

  4. 4

    Bacon, CD et al. Evidências biológicas apóiam o surgimento precoce e complexo do istmo do Panamá. Proc. Natl Acad. Sci. USA 112 , 6110–6115 (2015)

    PUBLICIDADES  CAS  Artigo  Google Scholar 

  5. 5

    MacFadden, BJ Extinta biodiversidade de mamíferos dos antigos trópicos do Novo Mundo. Trends Ecol. Evol. 21 , 157-165 (2006)

    Artigo  Google Scholar 

  6. 6

    Rincon, AF, Bloch, JI, Suarez, C., MacFadden, BJ & Jaramillo, CA Novos floridatragulinas (Mammalia, Camelidae) do início da Formação Las Cascadas do Mioceno, Panamá. J. Vertebr. Paleontol. 32 , 456-475 (2012)

    Artigo  Google Scholar 

  7. 7

    Rincon, AF, Bloch, JI, Macfadden, BJ & Jaramillo, CA Primeiro registro centro-americano de Anthracotheriidae (Mammalia, Bothriodontinae) do início do Mioceno do Panamá. J. Vertebr. Paleontol. 33 , 421-433 (2013)

    Artigo  Google Scholar 

  8. 8

    Rincon, AF, Bloch, JI, Macfadden, BJ & Jaramillo, CA Novos primeiros protoceratídeos do Mioceno (Mammalia, Artiodactyla) do Panamá. J. Verteb. Paleontol . http://dx.doi.org/10.1080/02724634.2015.970688 (2015)

  9. 9

    Wood, AR & Ridgwell, NM O primeiro calicothere da América Central (Mammalia, Perissodactyla) e as implicações paleobiogeográficas para esquizoteriínos de corpo pequeno. J. Vertebr. Paleontol . 35 , e923893 (2015)

    Artigo  Google Scholar 

  10. 10

    MacFadden, BJ et al. Calibração temporal e biocronologia da Fauna Centenário, início do Mioceno do Panamá. J. Geol. 122 , 113-135 (2014)

    PUBLICIDADES  CAS  Artigo  Google Scholar 

  11. 11

    Kirby, MX, Jones, DS & MacFadden, BJ Estratigrafia do Mioceno Inferior ao longo do Canal do Panamá e sua relação com a Península da América Central. PLoS One 3 , e2791 (2008)

    PUBLICIDADES  Artigo  Google Scholar 

  12. 12

    Woodburne, MO The Great American Biotic Interchange: dispersões, tectônica, clima, nível do mar e penas de retenção. J. Mamm. Evol. 17 , 245-264 (2010)

    Artigo  Google Scholar 

  13. 13

    Albright, LB, III et al. Cronoestratigrafia e bioestratigrafia revisadas da Formação John Day (Turtle Cove e Kimberly Members), Oregon, com implicações para a calibração atualizada da idade dos mamíferos terrestres Arikareean da América do Norte. J. Geol. 116 , 211-237 (2008)

    PUBLICIDADES  Artigo  Google Scholar 

  14. 14

    Tedford, RH et al. em Mamíferos do Cretáceo Superior e Cenozóico da América do Norte: Biostratigraphy and Geochronology 169–231 (Columbia Univ. Press, 2004)

  15. 15

    MacFadden, BJ Cronologia das localidades de primatas do Cenozóico na América do Sul. J. Hum. Evol. 19 , 7-21 (1990)

    Artigo  Google Scholar 

  16. 16

    Bond, M. et al. Primatas eocenos da América do Sul e as origens africanas dos macacos do Novo Mundo. Nature 520 , 538-541 (2015)

    PUBLICIDADES  Artigo  Google Scholar 

  17. 17

    Kay, RF Origens dos macacos do Novo Mundo. Science 347 , 1068–1069 (2015)

    PUBLICIDADES  CAS  Artigo  Google Scholar 

  18. 18

    Jameson Kiesling, NM, Yi, SV, Xu, K., Gianluca Sperone, F. & Wildman, DE O ritmo e o modo da evolução e biogeografia dos macacos do Novo Mundo no contexto da análise filogenômica. Mol. Phylogenet. Evol. 82 , 386-399 (2015)

    Artigo  Google Scholar 

  19. 19

    Houle, A. A origem dos platirrinos: uma avaliação do cenário Antártico e o modelo de ilha flutuante. Sou. J. Phys. Anthropol. 109 , 541-559 (1999)

    CAS  Artigo  Google Scholar 

  20. 20

    Springer, MS et al. Dinâmica macroevolutiva e biogeografia histórica da diversificação de primatas inferida de uma supermatriz de espécies. PLoS ONE 7 , e49521 (2012)

    PUBLICIDADES  CAS  Artigo  Google Scholar 

  21. 21

    Perelman, P. et al. Filogenia molecular de primatas vivos. PLoS Genet. 7 , e1001342 (2011)

    CAS  Artigo  Google Scholar 

  22. 22

    Cooke, SB, Rosenberger, AL & Turvey, S. Um macaco extinto do Haiti e as origens dos primatas das Grandes Antilhas. Proc. Natl Acad. Sci. USA 108 , 2699–2704 (2011)

    PUBLICIDADES  CAS  Artigo  Google Scholar 

  23. 23

    Rosenberger, AL Platyrrhines, PAUP, paralelismo e a hipótese de linhagem longa: uma resposta a Kay et al. (2008). J. Hum. Evol. 59 , 214–217 (2010)

  24. 24

    MacPhee, RD, Iturralde-Vinent, MA & Gaffney, ES Domo de Zaza, uma localidade de vertebrados do Mioceno no centro-sul de Cuba, com notas sobre a evolução tectônica de Porto Rico e da Passagem de Mona. Sou. Mus. Novit. 3394 , 1-42 (2003)

    Artigo  Google Scholar 

  25. 25

    Dunn, RE et al. Uma nova cronologia para a Idade dos Mamíferos Terrestres da América do Sul no Eoceno Médio – início do Mioceno. Geol. Soc. Sou. Touro. 125 , 539–555 (2013)

    PUBLICIDADES  Artigo  Google Scholar 

  26. 26

    Rosenberger, A., Tejedor, M., Cooke, S. & Pekar, S. em South American Primates Developments in Primatology: Progress and Prospects (eds Garber, PA, Estrada, A., Bicca-Marques, JC, Heymann, EW & Strier, KB) Ch. 4 , 69-113 (Springer, 2009)

    Artigo  Google Scholar 

  27. 27

    Jaramillo, C. et al. Registro palinológico dos últimos 20 milhões de anos no Panamá. CH. 8 , 134–251 (Missouri Botanical Garden Press, 2014)

    Google Scholar 

  28. 28

    Rooney, TO, Franceschi, P. & Hall, CM Magmas saturados de água na região do Canal do Panamá: um precursor para a geração de magma semelhante a adakita? Contrib. Mineral. Gasolina. 161 , 373-388 (2011)

    PUBLICIDADES  CAS  Artigo  Google Scholar 

  29. 29

    Black, LP et al. A aplicação do SHRIMP à geocronologia fanerozóica; uma avaliação crítica de quatro padrões de zircão. Chem. Geol. 200 , 171-188 (2003)

    PUBLICIDADES  CAS  Artigo  Google Scholar 

  30. 30

    Montes, C. et al. Colisão do arco-continente e formação de oroclina: fechamento do canal da América Central. J. Geophys. Res. 117 , B4 (2012)

    Artigo  Google Scholar 

Baixar referências

Reconhecimentos

Agradecemos M. Silcox, D. Boyer, G. Gunnell, S. Chester, P. Morse, E. Sargis, D. Steadman, E. Kowalski, Z. Randall, A. Rosenberger, J. Krigbaum e D. Daegling por conselho e discussão, R. Kay e L. Marivaux pelas revisões que melhoraram significativamente a qualidade do manuscrito, D. Byerley e G. Maccracken pela descoberta de fósseis de primatas no Panamá, M. Droulliard pela assistência com o laboratório de geocronologia e trabalho de campo, R. Kay , P. Holroyd e D. Reed para acesso a espécimes comparativos, J. Bourque para preparação de fósseis, D. Byerley para arte associada à Fig. 3, D. Boyer por facilitar o acesso à instalação de microCT da Duke University SMIF, e D. Boyer, G. Yapuncich e J. Thostenson pela ajuda na aquisição e processamento de dados de varredura microCT (financiado em parte pela National Science Foundation (NSF) BCS 1304045 to D Boyer e E. St Clair e BCS 0851272 de R. Kay). Agradecemos a O. Moskalenko, M. Gitzendanner e D. Reed pela assistência com os recursos de computação de alto desempenho da Universidade da Flórida. Agradecemos à Autoridad del Canal de Panama (ACP) e ao Ministerio de Comercio e Industria (MICI) pelo apoio logístico e acesso à Zona do Canal do Panamá. Parte deste manuscrito foi escrita quando JIB foi apoiado como um Edward P. Bass Distinguished Visiting Environmental Scholar no Yale Institute for Biospheric Studies (YIBS). O NSF (projeto PIRE 0966884),O Fundo de Paleobiologia do Smithsonian Tropical Research Institute e o Museu de História Natural da Flórida financiaram esta pesquisa. Esta é a Contribuição da Universidade da Flórida para a Paleobiologia 782.

Informação sobre o autor

Afiliações

Contribuições

JIB, ARW, EDW e GSM contribuíram para o planejamento do projeto. JIB, ARW e ARH contribuíram para a paleontologia sistemática e varreduras microCT. DAF e AFR contribuíram para análises radioisotópicas e estratigrafia. BJM, AFR, GSM, ARW e JIB contribuíram para a análise biocronológica. EDW, JIB e ARW contribuíram para as análises filogenéticas. EDW realizou análises de datação de divergência. CM e CAJ contribuíram para a análise paleogeográfica. NAJ, JIB e CAJ contribuíram para o resumo do pólen. ARW, AFR, JIB, GSM, EDW e DSJ contribuíram para o trabalho de campo. JIB, BJM, GSM, CAJ e DSJ contribuíram para o suporte financeiro. Todos os autores contribuíram para a preparação do manuscrito e da figura.

autor correspondente

Correspondência para Jonathan I. Bloch .

Declarações de ética

Interesses competitivos

Os autores declaram não haver interesses financeiros concorrentes.

Informação adicional

Os LSIDs para Panamacebus (gênero), urn: lsid: zoobank.org: act: C33F8967-EE79-47B8-8A98-2C6D2C7557CA , e para Panamacebus transitus (espécie), urn: lsid: zoobank.org: act: 3E01F3F2-B1F8- 433E-B110-9AD5AAF3DB99 , foram depositados no ZooBank.

Figuras e tabelas de dados estendidos

Dados estendidos Figura 1 Mapa da parte sul do Canal do Panamá (Corte Gaillard).

Círculos pretos marcam a posição da localidade da Fauna Local de Lirio Norte (YPA024) e outros locais específicos de coleta de vertebrados terrestres (Fauna Centenário) na área (modificado da ref. 10 ).

Dados estendidos Figura 2 Fotografia da parede norte (face sul) na localidade da Fauna Local de Lirio Norte (YPA024).

Amostra datada de rocha MD11 foi coletada de uma camada de cinzas que forma a parte superior de um tufo andesítico soldado com vários metros de espessura. O tufo é exposto dentro da seção adaptável da Formação Las Cascadas aproximadamente 0,25 m abaixo, e em estreita proximidade com a unidade contendo fósseis de mamíferos que inclui os fósseis Panamacebus .

Dados estendidos Figura 3 Bioestratigrafia de nível genérico de taxa selecionados do início do Mioceno (~ 21 Ma) Formação Las Cascadas, Panamá.

Biocronologias individuais foram interpretadas a partir de faixas temporais conhecidas de latitudes mais altas. A calibração dos limites NALMA é conforme descrito anteriormente 13 , 14 .

Dados estendidos Figura 4 Comparações detalhadas dos molares superiores de Panamacebus com Neosaimiri .

a - d , vistas da esquerda para a direita, oclusal, distal, lingual, mesial e vestibular do M 1 esquerdo (UF 280128: http://dx.doi.org/10.17602/M2/M8531 ) ( a ) e do M esquerdo 2 (UF 281001: http://dx.doi.org/10.17602/M2/M8550 ) ( d ) de P. transitus em comparação com M 1 e M 2 de N. fieldsi ( b , c , e - g ): direita M 1 (IGM-KU 89008: http://dx.doi.org/10.17602/M2/M8541 ) ( b ), direito M 1(IGM 89019: http://dx.doi.org/10.17602/M2/M8544 ) ( c ), M direita 2 (IGM-KU 89018: http://dx.doi.org/10.17602/M2/M8543 ) ( e ), H direita 2 (IGM-KU 89104: http://dx.doi.org/10.17602/M2/M8548 ) ( f ), e M direita 2 (IGM-KU 89011: http: //dx.doi. org / 10.17602 / M2 / M8542 ) ( g ). As imagens foram geradas a partir de dados de varredura microCT (consulte Métodos e links associados aos números das amostras). Os dentes do lado direito foram invertidos para facilitar a comparação com os dentes do lado esquerdo. Barra de escala, 1 mm.

Dados estendidos Figura 5 Comparações detalhadas dos molares superiores de Panamacebus com Neosaimiri e Cebus .

um - g , esquerda para a direita, oclusal, distal, lingual, mesial e vistas bucais da esquerda H 1 (UF 280128: http://dx.doi.org/10.17602/M2/M8531 ) ( um ) e a M esquerda 2 (UF 281001: http://dx.doi.org/10.17602/M2/M8550 ) ( c ) de P. transitus em comparação com M 1 e M 2 de N. fieldsi ( b , d ): M 1 direito (IGM 89019: http://dx.doi.org/10.17602/M2/M8544 ) ( b ), e M direita 2 (IGM-KU 89104:http://dx.doi.org/10.17602/M2/M8548 ) ( d ); e os M 1 e M 2 esquerdos de Cebus capucinus (USNM 291128; http://dx.doi.org/10.17602/M2/M8627 ) nas vistas oclusal ( e ), lingual ( f ) e vestibular ( g ). As imagens foram geradas a partir de dados de varredura microCT (consulte Métodos e links associados aos números das amostras). Os dentes do lado direito foram invertidos para facilitar a comparação com os dentes do lado esquerdo. Barra de escala, 1 mm.

Dados estendidos Figura 6 Comparações detalhadas dos dentes inferiores do Panamacebus com os de Neosaimiri e Stirtonia .

a - k , vistas da esquerda para a direita, oclusal, distal, lingual, mesial e vestibular da parte esquerda I 1 (UF 280130: http://dx.doi.org/10.17602/M2/M8400 ) ( a ), direita I 2 (UF 267048, espelhado: http://dx.doi.org/10.17602/M2/M8395 ) ( d ), P 2 esquerdo (UF 280127: http://dx.doi.org/10.17602/M2/M8397 ) ( g ), P 4 esquerdo (UF 280129: http://dx.doi.org/10.17602/M2/M8399 ) ( i ) e C 1 direito (UF 280131, espelhado: http://dx.doi.org/ 10.17602 / M2 / M8401 ) ( k) de P. transitus em comparação com o direito I 1 (IGM-KU 89086: http://dx.doi.org/10.17602/M2/M8546 ) ( b ), direito I 2 (IGM-KU 89092: http: // dx.doi.org/10.17602/M2/M8547 ) ( e ), esquerdo I 2 (UCMP 39205: http://dx.doi.org/10.17602/M2/M1880 ) ( f ), direito P 2 (IGM-KU 90016: http://dx.doi.org/10.17602/M2/M8549 ) ( h ) e C 1 direito (IGM-KU 89021: http://dx.doi.org/10.17602/M2/M8432 ) ( j ) de N. fieldsi e o direito I2 (UCMP 38989: http://dx.doi.org/10.17602/M2/M1799 ) de Stirtonia tatacoensis ( c ). As imagens foram geradas a partir de dados de varredura microCT (consulte Métodos e links associados aos números das amostras). Os dentes do lado direito foram invertidos para facilitar a comparação com os dentes do lado esquerdo. Barra de escala, 5 mm.

Dados estendidos Figura 7 Comparações detalhadas dos dentes inferiores do Panamacebus com os do Cebus .

a - i , vistas oclusais ( a ), linguais ( c ) e vestibulares ( e ) de P. transitus parcial esquerda I 1 (UF 280130: http://dx.doi.org/10.17602/M2/M8400 ), direita I 2 (UF 267048, espelhado: http://dx.doi.org/10.17602/M2/M8395 ), C 1 direito (UF 280131, espelhado: http://dx.doi.org/10.17602/M2/M8401 ), P 2 esquerdo (UF 280127: http://dx.doi.org/10.17602/M2/M8397 ) e P 4 esquerdo (UF 280129: http://dx.doi.org/10.17602/M2/M8399 ); oclusal ( b ), lingual (d ) e vistas vestibulares ( f ) de C. capucinus direito P 2 –P 4 (USNM 291128: http://dx.doi.org/10.17602/M2/M8629 ); e vistas oclusais ( g ), linguais ( h ) e vestibulares ( i ) do dentário esquerdo de C. capucinus com I 1 –M 3 (USNM 291236: http://dx.doi.org/10.17602/M2/M8622 ). Os dentes do lado direito foram espelhados para facilitar a comparação com os dentes do lado esquerdo. As imagens foram geradas a partir de dados de varredura microCT (consulte Métodos). Barras de escala, 5 mm.

Dados estendidos Figura 8 Reconstrução paleogeográfica detalhada da região da Bacia do Canal do Panamá durante o final do Oligoceno e início do Mioceno, mostrando a localização das principais formações geológicas, falhas e blocos tectônicos.

Ambientes sedimentares foram extrapolados de seções estratigráficas publicadas que foram colocadas sobre a reconstrução palinspástica nos seguintes locais: (1) seções do Pacífico que incluem conglomerados e estratos arenosos; (2) bacia superior do Magdalena; (3) Carvão da Formação Amaga e conglomerática arenosa; (4) Choco; (5) no extremo leste do Panamá; 96) oeste do Panamá; (7) Panamá; (8) Bacia do canal; (9) noroeste da Colômbia; (10) Sierra Nevada Santa Marta, estratos arenosos e conglomeráticos não nomeados; (11) Península de Guajira; (12) Falcão; (13) Falcon / Lara; (14) Bacia média do Magdalena; (15) Maciço da Floresta; (16) Cordillera Oriental axial; (17) contrafortes; (18) Bacia média sul do Magdalena. Consulte os Métodos Suplementares para referências e discussão detalhada.

Dados estendidos Figura 9 Árvore de credibilidade máxima do clado resumindo as árvores concatenadas da análise de datação por divergência usando o modelo de nascimento-morte mostrando o Platyrrhini.

Intervalos de densidade posterior noventa e cinco por cento mais altos são mostrados em nós chave e os ramos correspondentes são rotulados com valores de probabilidade posterior. Para maior clareza, apenas o Platyrrhini são mostrados aqui.

Dados estendidos Figura 10 Árvore de credibilidade máxima do clado resumindo as árvores concatenadas da divergência datando a análise usando o modelo Yule mostrando o Platyrrhini.

Intervalos de densidade posterior noventa e cinco por cento mais altos são mostrados em nós chave e os ramos correspondentes são rotulados com valores de probabilidade posterior. Para maior clareza, apenas o Platyrrhini são mostrados aqui.

Informação suplementar

Figuras Suplementares

Este arquivo contém as Figuras Suplementares 1-10 compreendendo: uma ilustração da nomenclatura de cúspide e crista (Figura 1), imagens de micro tomografias computadorizadas das dentições superior e inferior de Cebupitecia e Estirtonia do Mioceno médio da Colômbia (Figuras 2-3) e filogenética árvores resultantes de análises de máxima parcimônia do Panamacebus (Figuras 4-10). (PDF 1652 kb)

Métodos e resultados suplementares

Este arquivo contém métodos detalhados e comparações morfológicas adicionais de Panamacebus com outros primatas e métodos e resultados detalhados de análises estratigráficas, geocronológicas, filogenéticas e de divergência e reconstruções paleobotânicas. (PDF 1005 kb)

Tabelas Suplementares

Este arquivo compactado contém as Tabelas Suplementares 1-7 compreendendo: (1) idades U-Pb de zircões magmáticos individuais usados ​​para estimar a data absoluta do horizonte fossilífero onde os fósseis do Panamacebus foram descobertos; (2) Lista das calibrações de nó anteriores usadas para a análise de datação de divergência no BEAST; (3) Dados de localização e riqueza de pólen usados ​​na reconstrução paleobotânica; (4) Configurações de digitalização para as micro tomografias apresentadas neste documento; (5) Tabela de estatísticas resumidas das análises de datação de divergência no BEAST; (6) Lista de fauna de mamíferos do Lirio Norte LF (YPA024), Formação Las Cascadas, Panamá; (7) Afinidades biogeográficas e riqueza de formações portadoras de pólen do Oligoceno ao Mioceno médio na Flórida, Porto Rico, sul do México, Costa Rica e Panamá. (ZIP 285 kb)

Dados suplementares

Este arquivo compactado contém Dados Suplementares 1-4 compreendendo: (1) A matriz morfológica de caracteres-táxons (no formato Nexus) usada na análise de parcimônia contendo o novo táxon, Panamacebus, e listas de caracteres ordenados e caracteres ponderados; (2) A árvore de restrição molecular usada na segunda análise filogenética, apresentada no formato Nexus; (3) O alinhamento de sequência reduzido usado na análise de datação por divergência, apresentado no formato Phylip; (4) Lista de todos os táxons incluídos em cada clado calibrado com um anterior na análise de datação por divergência. (ZIP 1923 kb)

Slides de PowerPoint

Direitos e permissões

Reimpressões e permissões


Fonte: 

sábado, 26 de junho de 2021


Tornando o intercâmbio excelente novamente

Outro dia, fui marcado em um tweet perguntando quando o Great American Biotic Interchange (também conhecido como GABI) começou. Em suma, não existe uma resposta simples; depende principalmente da sua definição.

Se você não está familiarizado com o GABI, é o nome dado à troca em grande escala de animais (principalmente mamíferos terrestres) que ocorreu entre as Américas do Norte e do Sul no final do Cenozoico (a parte do tempo geológico desde dinossauros gigantes foram extintos). Como essa troca envolveu principalmente animais (em oposição a plantas), às vezes é chamada de GAFI, que substitui “Faunal” (animais) por “Biótico” (toda a vida). No entanto, GABI foi cunhado primeiro, e GAFI soa como um papel em um set de filme , então GABI é a sigla usada com mais frequência. Às vezes, “Biótico” é deixado de fora, tornando-se o Grande Intercâmbio Americano, mas quem quer dizer GAI? Eu vou com GABI.

Uma ilustração maravilhosa de alguns dos mamíferos que participaram do Great American Biotic Interchange, mais conhecido como GABI. As setas indicam a direção em que os grupos migraram. Modificado de The Wonders of Life on Earth (Time Editors, 1960).

Na região temperada da América do Norte, os efeitos do GABI foram mínimos, pelo menos da perspectiva de hoje. Animais como o porco-espinho norte-americano, a gambá da Virgínia e o tatu de nove bandas são todos sulistas que vieram para o norte pelo atual Panamá, mas eles representam apenas uma pequena proporção dos mamíferos que você pode encontrar na América do Norte hoje. Um punhado de mamíferos de grande a gigante também chegou à América do Norte, mas mais tarde foi extinto há cerca de 12.000 anos. Estes incluíam vários tipos de preguiças gigantes , um gliptodonte , uma capivara e até mesmo um notoungulado . 

Os imigrantes sul-americanos tiveram um impacto maior na América Central e no que hoje é o sul do México; as comunidades de mamíferos modernos nessas áreas incluem vários tipos de gambás, macacos, tamanduás, preguiças e alguns roedores neotropicais conhecidos como cutias , ratos espinhosos e pacas . Muitos desses animais atraem turistas a lugares como a Costa Rica para observação da vida selvagem, mas eles próprios são relativamente novos na área.

Diagrama ilustrando a maioria das famílias de mamíferos sul-americanos que imigraram para a América Central e do Norte durante o GABI. Todas as 20 famílias atualmente reconhecidas que participaram estão listadas. Grupos com contorno tracejado foram posteriormente extintos na América do Norte. Modificado de Pascual (2006: fig. 14). Reutilização permitida sob CC BY-NC-SA 2.0 .

Na América do Sul, os imigrantes norte-americanos tiveram um apogeu e agora são diversos e abundantes em áreas tropicais e temperadas. Isso inclui uma grande variedade de carnívoros (como onça, lobo-guará, cachorro-do-mato , quati , urso de óculos e tayra , só para citar alguns) e mamíferos com cascos (antas, camelos como guanacos e alpacas, e veados como os pudu e brocket veados), bem como o grupo mais bem sucedido, mas menos visível (a menos que você está realmente procurando): roedores sigmodontinae, que incluem centenas de espécies de pequenos ratos e camundongos sul-americanos. Os humanos também imigraram para a América do Sul durante o GABI, assim como elefantes, musaranhos, coelhos, esquilos, ratos-canguru e cavalos.

Diagrama ilustrando a maioria das famílias de mamíferos norte-americanos que imigraram para a América do Sul durante o GABI. Todas as 19 famílias atualmente reconhecidas que participaram estão listadas. Grupos com contorno tracejado foram posteriormente extintos na América do Sul. A extinta família Palaeomerycidae não foi incluída devido a dúvidas em torno de seu único registro sul-americano. Modificado de Pascual (2006: fig. 14). Reutilização permitida sob CC BY-NC-SA 2.0 .

O GABI foi facilitado pela formação do Istmo do Panamá, que é a conexão terrestre que hoje une as Américas. Você pode se surpreender ao saber que nem sempre existiu. Provavelmente existiu de alguma forma por volta do final da Era Mesozóica (a época do Tiranossauro e do Tricerátopo ), mas isso foi muito antes de os mamíferos de que estamos falando existirem; logo após o início da “Era dos Mamíferos”, a conexão entre as Américas desapareceu. Assim, as Américas do Norte e do Sul foram separadas pelo oceano por dezenas de milhões de anos, tornando as travessias entre elas difíceis (embora não impossíveis) para a maioria dos mamíferos não voadores por cerca de 60 milhões de anos.

Quando a conexão terrestre entre as Américas se formou novamente? Isso é difícil de saber. No entanto, temos algumas boas evidências indiretas. Uma grande variedade de mamíferos norte-americanos apareceu na América do Sul pela primeira vez há cerca de 2,6 milhões de anos, e o mesmo é verdade para os mamíferos sul-americanos na América do Norte. Esse padrão só faz sentido se esses mamíferos pudessem andar entre os dois continentes. Assim, todos os cientistas concordam que uma conexão terrestre sólida existia há cerca de 2,6 milhões de anos (fim do Plioceno).

No entanto, uma pequena minoria de mamíferos fez sua jornada interamericana mais cedo, durante o Plioceno ou mesmo durante o final do Mioceno. * Por exemplo, dois tipos de preguiça chegaram à América do Norte há 9 milhões de anos e cerca de 5 milhões de anos atrás, uma preguiça diferente, um pampate (um parente extinto de tatus) e um grande pássaro terrorista (incapaz de voar) viviam ali. Glyptodonts e capivaras vieram logo depois. Na América do Sul, um parente extinto dos guaxinins norte-americanos chegou à Argentina há cerca de 7 milhões de anos, roedores sigmodontinos semelhantes a camundongos chegaram lá por volta de 5 milhões de anos atrás e os queixadas chegaram lá cerca de 3,5 milhões de anos atrás. ** 

Escala de tempo GABI simplificada
Escala de tempo simplificada que ilustra as primeiras ocorrências de grupos de imigrantes (GABI) na América do Sul e na América do Norte / Central. O sombreado amarelo indica o intervalo de tempo (desde ~ 2,6 milhões de anos atrás) quando a maioria dos grupos são registrados pela primeira vez no outro lado do istmo do Panamá. Abreviaturas: Pleist, Pleistocene; Plio, Plioceno; Q, quaternário. O Holoceno está incluído no Pleistoceno por uma questão de simplicidade. Ilustração de D. Croft. Reutilização permitida sob CC BY-NC-SA 2.0 .

Esses primeiros imigrantes indicam que uma conexão terrestre sólida entre as Américas surgiu antes, durante o Plioceno ou mesmo no final do Mioceno? Provavelmente não - embora alguns geólogos discordem (com base em outros dados ). Muitos desses mamíferos que se dispersam precocemente pertencem a grupos que, no passado, cruzaram outras barreiras oceânicas . Portanto, argumentou-se que eles fizeram a mesma coisa entre as Américas; em vez de atravessar um istmo seco, eles cruzaram fortuitamente a barreira oceânica que separa as Américas, talvez facilitada por uma série de pequenas ilhas. Esta parece ser uma explicação muito razoável para preguiças e pequenos roedores e provavelmente também um mamífero omnívoro e semiarbóreo como Cyonasua(o parente do guaxinim). É um pouco mais difícil imaginar um pampa lá fazendo a travessia, embora eu não achasse impossível. Não tenho tanta certeza sobre um pássaro terrorista.

Se você não acha que uma travessia oceânica com sorte soa como uma explicação muito boa, então vale a pena pensar sobre o cenário alternativo; quão plausível é que uma conexão terrestre sólida existisse muito antes de 2,6 milhões de anos atrás e apenas esses poucos grupos decidissem fazer a travessia? Eu diria que é muito menos plausível do que a travessia de um pássaro terrorista antes que uma conexão terrestre sólida existisse. A ponte de terra sem dúvida agiu como um "filtro" até certo ponto - muitos grupos de mamíferos norte-americanos bem-sucedidos nunca se dispersaram na América do Sul - mas o fato de que a maioria dos grupos de mamíferos fez a travessia começando por volta de 2,6 milhões de anos atrás é impressionante (e bem- estabelecido) padrão no registro fóssil.

Voltando à nossa pergunta principal, quando o GABI começou?

Para alguns pesquisadores , o Great American Biotic Interchange não começou até que muitos mamíferos imigrantes fossem registrados na América do Sul e do Norte, cerca de 2,6 milhões de anos atrás, por volta do final do Plioceno. Embora tenha havido intercâmbio antes dessa época, não foi "ótimo".

Para mim, intercâmbio é a palavra-chave, e a mistura natural dessas faunas em uma escala continental é o que o torna “ótimo”. Portanto, quando falo do GABI, digo que começou há cerca de 9 milhões de anos, no final do Mioceno. O padrão do GABI é claramente um continuum de intercâmbio, variando de um gotejamento no final do Mioceno a um dilúvio no Pleistoceno. Não vejo nenhuma razão convincente para designar um ponto específico ao longo deste continuum como o ponto em que se torna “grande”, particularmente devido aos caprichos do registro fóssil.

Independentemente da definição, não há dúvida de que o GABI está entre os maiores “experimentos naturais” de mistura faunística que já ocorreram!


* Curiosamente, um macaco rafting fez o seu caminho da América do Sul para a América do Norte durante o início do Mioceno , cerca de 20 milhões de anos atrás, mas aparentemente não teve sucesso em estabelecer primatas como residentes de longa data da América Central.

** Nos últimos anos, afirma-se que restos de um gomphothere (um parente extinto de elefantes) e queixadas do leste do Peru têm pelo menos 9 milhões de anos de idade, o que atrasaria as primeiras aparições desses grupos no final do Mioceno. Essas afirmações ainda não foram totalmente aceitas pela comunidade científica e os espécimes podem ter idade do Pleistoceno .

Referências e leituras adicionais:

sexta-feira, 25 de junho de 2021


Antigos carvalhos da Europa são arquivos - proteja-os

O carvalho do rei, Kongeegen, na Dinamarca

Kongeegen, o Rei Carvalho, na Dinamarca, pode ter até 2.000 anos. Crédito: Andreas Altenburger / Alamy

Algumas das árvores mais antigas da Europa estão em perigo porque não estão recebendo o nível de proteção necessário. Os carvalhos ( Quercus robur ) com mais de 1.000 anos são encontrados no Reino Unido e na Fennoscandia, que inclui a Dinamarca, a Suécia e a Noruega.

Por exemplo, o King Oak da Dinamarca (na foto) é uma das árvores vivas mais antigas do mundo, com cerca de 1.900 anos de idade. O Reino Unido tem a maior coleção de carvalhos antigos, refletindo 1.500 anos de construção de navios.

As árvores contêm anéis que representam arquivos de flutuações climáticas históricas e níveis de gases atmosféricos, de modo que podem ajudar a responder a questões urgentes sobre as mudanças climáticas e a dinâmica do ecossistema ( PM Kelly et al. Nature 340 , 57-60; 1989 ).

A Fennoscandia e o Reino Unido poderiam proteger melhor seus carvalhos usando mecanismos como os oferecidos pela rede de áreas protegidas Natura 2000 da União Europeia ou as proteções conferidas pelos sítios do Patrimônio Mundial da UNESCO no Reino Unido. Caso contrário, práticas de manejo insustentáveis, desmatamento, poluição do ar e mudanças climáticas podem deixar essas espécies antigas vulneráveis ​​a doenças e extinção, com a perda de informações científicas insubstituíveis e patrimônio cultural.

Nature 594 , 495 (2021)

doi: https://doi.org/10.1038/d41586-021-01699-0


  • segunda-feira, 14 de junho de 2021


    Cinco curiosidades sobre 'superjacaré' brasileiro mais forte que tiranossauro

    • Fernando Duarte
    • Da BBC Brasil em Londres
    Purussaurus brasiliensis | Foto: Tito Aureliano

    Crédito, Tito Aureliano

    Legenda da foto,

    A mordida do Purussaurus era 20 vezes mais poderosa que a de um tubarão branco

    O Purussaurus brasiliensis está extinto há 8 milhões de anos, mas ainda pode causar um certo frisson na comunidade científica.

    O antepassado do jacaré, que viveu na região da Amazônia no período mioceno, foi descoberto em 1892, pelo cientista e aventureiro brasileiro Barbosa Rodrigues. Mas um estudo publicado na semana passada tirou o réptil de décadas de esquecimento: uma equipe de pesquisadores brasileiros pela primeira vez fez estimativas detalhadas de suas dimensões e de sua fisiologia.

    A principal revelação foi a de que a mordida do Purussaurus era duas vezes mais forte que a do Tiranossauro Rex, o mais notório dos dinossauros.

    Mas essa não foi a única curiosidade, como a lista abaixo mostra.

    Um carnívoro voraz

    Segundo Aline Ghilardi, paleontóloga da Universidade Federal do Rio de Janeiro, o Purussaurus precisava de uma imensa quantidade de comida para sustentar o corpanzil que podia passar dos 12 metros de comprimento. Ela e seus colegas calcularam que o jacaré pré-histórico precisava comer uma média de 40kg de carne diariamente para sobreviver.

    Isso é pelo menos 15 vezes mais do que um jacaré contemporâneo come.

    "O mioceno foi uma era marcada por grandes mamíferos na região da Amazônia. Havia preguiças de cinco metros, por exemplo. Isso era perfeito para o Purussarus", conta Ghilardi.

    Purussaurus versus tiranossauro: quem venceria?

    Mandíbula do Purussaurus | Foto: Divulgação

    Crédito, Divulgacao

    Legenda da foto,

    O jacaré pré-histórico podia chegar a 12 metros de comprimento e pesar até oito toneladas

    O Purussaurus viveu há 8 milhões de anos, mais de 50 milhões depois da extinção do tiranossauro. Mas Ghilardi não tem dúvidas sobre quem levaria a melhor caso os dois animais se encontrassem pelo caminho.

    "O tiranossauro não teria vez numa luta. Para começar, o Purussaurus vivia numa região de pântanos, o que lhe dava mais vantagem territorial. E sempre vale lembrar que um antepassado do jacaré era predador do tiranossauro", conta Ghilardi.

    Dentada violenta

    Uma lista dos animais de mordida mais poderosa tem detalhes impressionantes. Segundo a equipe de pesquisadores, a força da mordida média do jacaré pré-histórico brasileiro era de sete toneladas, com força mínima de 41 mil e máxima de mais de 115 mil. O tiranossauro, por exemplo, não passava de 57 mil.

    A pesquisa brasileira foi possível por causa da descoberta de um crânio no Acre pelos paleontologistas Edson Guilherme e Jonas Souza Filho.

    Design vencedor

    Não é por mera coincidência que o "ranking da mordida" tem seis animais da família dos jacarés e crocodilos entre os dez mais fortes. "O Purussaurus tinha uma anatomia bem adequada para uma mordida violenta e sustentável", diz Ghilardi.

    Tiranossauro | Foto: BBC
    Legenda da foto,

    O Tiranossauro Rex viveu milhões de anos antes do Purussaurus, mas tinha antepassado como predador

    E essa eficiência se manteve ao longo de milhões de anos.

    "Basta vermos as semelhanças entre os antepassados e os jacarés e crocodilos de hoje", observa.

    Análises de outros pesquisadores em fósseis do Purussaurus revelaram que ele já era capaz de fazer os temidos "rolamentos" na água com que jacarés e crocodilos de hoje matam e desmembram suas presas.

    Derrotado por montanhas

    Na Amazônia miocênica, o Purussaurus era o rei da selva – ou melhor, do pântano.

    Mas um fenômeno geológico seria fatal para o jacaré pré-histórico: o surgimento da Cordilheira dos Andes, que teve um impacto profundo no meio-ambiente do continente inteiro, e ainda mais dramático na região amazônica. As mudanças extinguiram diversas espécies e tornaram a vida do Purussaurus brasiliensis extremante complicada.

    "A constante subida dos Andes e a mudança do sistema amazônico de pântanos para os sistemas de rios que temos hoje reduziu muito a área para esses animais gigantes viverem. Ao reduzir também o número de presas, causou rapidamente a extinção dos superjacarés amazônicos. É uma lição para nós de que nem sempre é necessário um meteoro para causar a extinção de um grupo bem sucedido de espécies", afirma Tito Aureliano, da Universidade Federal de Pernambuco (UFPE), um dos autores do estudo.


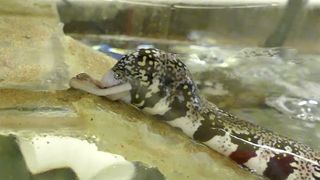
    Essas enguias podem engolir presas em terra, graças às mandíbulas extensíveis em suas gargantas

    Uma moreia-floco de neve prepara-se para engolir um lanche de lula. Uma moreia-floco de neve prepara-se para engolir um lanche de lula. 
      (Crédito da imagem: Rita Mehta e Kyle Donohoe)

    Moreias têm um segundo conjunto oculto de mandíbulas que são o material dos pesadelos. Essas mandíbulas extras podem saltar para a frente em um instante para agarrar a presa e arrastar o animal para a goela da enguia.

    Essas terríveis mandíbulas de estilingue ajudam um tipo de moreia a fazer algo impossível para a maioria dos peixes: engolir suas presas enquanto estão em terra, de acordo com um novo estudo. É uma visão enervante, com vídeos de pesquisadores mostrando presas sendo puxadas para baixo pela garganta da enguia enquanto a boca da moreia se abre.

    Os peixes normalmente precisam de água em movimento para transportar o alimento da boca para o estômago. Mas as moreias-do-floco de neve ( Echidna nebulosa ) podem emboscar caranguejos na terra se contorcendo do mar para pegar suas presas durante a maré baixa, e pesquisadores descobriram recentemente que o recuo das mandíbulas secundárias das enguias foi forte o suficiente para ajudar as moreias a engolir sua refeição sem ter para recuar para o oceano.

    Relacionado: Fotos: o peixe de aparência mais estranha do mundo

    Todos os peixes ósseos - aqueles com esqueletos feitos principalmente de ossos, em vez de cartilagem - têm mandíbulas faríngeas além das mandíbulas principais. A mandíbula faríngea fica atrás da faringe ou garganta. Eles são menores do que as mandíbulas na boca dos peixes e são usados ​​para agarrar e furar ou esmagar alimentos, de acordo com o Museu Nacional de História Natural Smithsonian . 

    Mas, ao contrário da mandíbula da faringe da maioria dos peixes, as moreias "são altamente móveis" e podem saltar da garganta e entrar na boca das moreias, disse Rita Mehta, professora associada do Departamento de Ecologia e Biologia Evolutiva da Universidade da Califórnia Santa Cruz (UCSC).

    Em 2007, Mehta descreveu como as moreias aproveitavam esse movimento extremo enquanto se alimentavam na água, com suas mandíbulas faríngeas atuando como "essas pinças maravilhosas que agarram a presa", ela disse anteriormente ao Live Science . No novo estudo, publicado em 7 de junho no Journal of Experimental Biology , Mehta e o coautor Kyle Donohoe, assistente de pesquisa do Laboratório de Sistemas Sensorial e Cognição Pinniped da UCSC, filmou enguias enquanto comiam refeições fora da água, Mehta disse ao Live Science por e-mail.

    "Com base no que sabíamos sobre a mecânica das mandíbulas faríngeas, fazia sentido que, se as moreias conseguissem capturar presas na entremarés ou em terra, também pudessem engoli-las na terra sem depender da água", disse Mehta.


    Músculos longos puxam a mandíbula faríngea das moreias para agarrar a presa e, em seguida, desliza-a pela garganta. (Crédito da imagem: Zina Deretsky, National Science Foundation (em homenagem a Rita Mehta, UC Davis))

    Treinar moreias-floco de neve para se alimentarem de água em experimentos de laboratório - e depois registrar os resultados - levou seis anos, de acordo com o estudo. Os cientistas instalaram enguias em aquários equipados com plataformas e rampas acima da água. Eles então treinaram as enguias - chamadas Benjen, Marsh, Qani, Jetsom, Frosty, Flatsom e LB - para escalar as rampas para pegar pedaços de lula. Com o tempo, a comida foi movida para cima na rampa, até que finalmente as enguias começaram a se contorcer para fora da água e ondular pelas rampas para encontrar comida.

    "Para a maioria dos testes terrestres, moreias-floco de neve ondularam o terço superior de seu corpo na água para capturar a presa na rampa", relataram os pesquisadores. Eles analisaram 67 vídeos de refeições de enguias na água e na rampa, descobrindo que os peixes usavam a mandíbula faríngea da mesma forma e na mesma velocidade na água ou na terra. 

    Moreias não são "peixes fora d'água" comuns. Eles podem funcionar durante a privação temporária de oxigênio, e estudos com um parente de uma moreia-floco de neve, a moreia mediterrânea ( Muraena helena ), mostraram que lipídios e muco na pele das moreias podem proteger as enguias contra o ressecamento quando expostas ao ar, o estudo autores escreveram. 

    Os experimentos ofereceram exemplos nunca vistos de comportamento da moreia, sugerindo como as moreias podem combinar características anfíbias com uma mandíbula de estilingue para torná-las caçadoras versáteis e formidáveis ​​em ambientes úmidos ou secos. Essas adaptações podem permitir que moreias encontrem novos tipos de alimento se seu suprimento regular desaparecer e pode ajudar os peixes a evitar a competição em seus ecossistemas oceânicos, permitindo que se alimentem em um habitat diferente, disse Mehta. 

    As descobertas foram publicadas em 7 de junho no Journal of Experimental Biology .

    Originalmente publicado na Live Science.