quinta-feira, 7 de julho de 2022


Pesquisadores descrevem novo fóssil de canguru da Papua Nova Guiné
Novo canguru descrito - de PNG
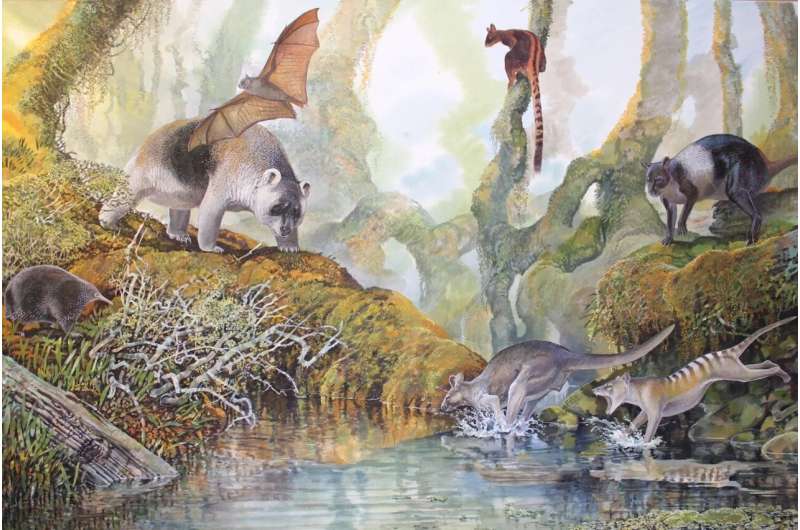
Impressão artística da megafauna Nombe Rockshelter, mostrando o canguru Nombe à direita. Crédito: Obra de Peter Schouten

Paleontólogos australianos da Flinders University descreveram um novo gênero de canguru fóssil gigante das montanhas do centro de Papua Nova Guiné.

A nova descrição do  descobriu que, em vez de estar intimamente relacionado aos cangurus australianos, provavelmente pertence a um gênero único de canguru mais primitivo encontrado apenas em Papua Nova Guiné.

O canguru, descrito pela primeira vez em 1983 pelo professor Tim Flannery, é conhecido a partir de fósseis com cerca de 20.000-50.000 anos de idade. Eles vêm do Nombe Rockshelter, um sítio arqueológico e paleontológico na província de Chimbu, Papua Nova Guiné (PNG).

Nombe já é conhecido por várias espécies extintas de cangurus e  gigantes de quatro patas chamados diprotodontídeos.

Pesquisadores da Flinders University renomearam o animal Nombe nombe, após o local de sua descoberta – e planejam retornar a PNG para novas escavações e pesquisas no próximo ano.

O atarracado e musculoso Nombe vivia em uma floresta tropical montanhosa diversificada com vegetação rasteira espessa e um dossel fechado. Aqui, evoluiu para comer as folhas duras de árvores e arbustos, com um maxilar grosso e fortes músculos de mastigação.

Grande parte da vida animal da Nova Guiné é pouco conhecida fora da ilha, apesar de sua cor e distinção. Esta descoberta dá uma nova vida à exploração da história faunística da Nova Guiné.
Novo canguru descrito - de PNG
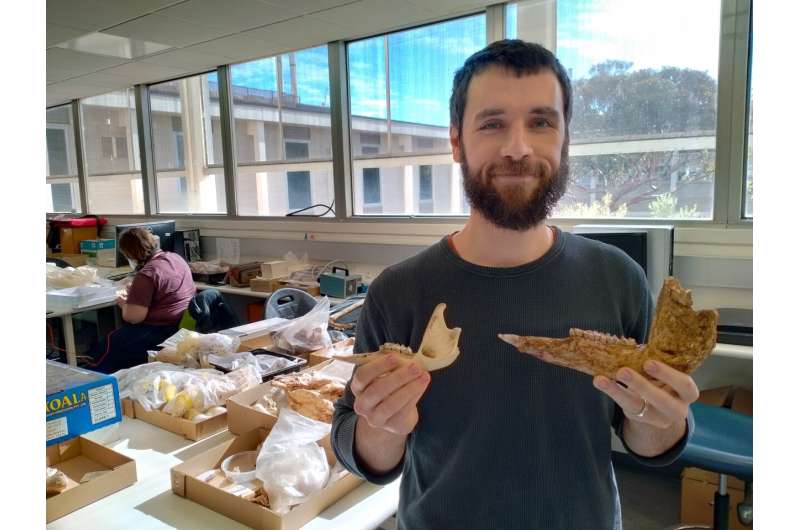
O pesquisador de paleontologia da Flinders University Isaac Kerr com um osso de mandíbula de canguru australiano e uma mandíbula fóssil de megafauna australiana usada no último estudo da Royal Society. Crédito: Universidade Flinders

"A fauna da Nova Guiné é fascinante, mas muito poucos australianos têm uma idéia do que realmente está lá", diz Flinders, Ph.D. em paleontologia. candidato Isaac Kerr.

"Existem várias espécies de equidnas grandes, de nariz comprido e comedores de vermes que ainda existem hoje, muitas espécies diferentes de cangurus e gambás que não encontramos na Austrália e mais ainda no registro fóssil.

“Pensamos nesses animais como sendo exclusivamente australianos, mas eles têm essa outra vida intrigante dentro da Nova Guiné”.

Usando imagens 3D e outras tecnologias, os pesquisadores estudaram restos do Museu e Galeria de Arte PNG. Eles agora acreditam que a espécie pode ter evoluído de uma antiga forma de canguru que se dispersou na Nova Guiné no final do Mioceno, cerca de 5 a 8 milhões de anos atrás.

Durante esse tempo, as ilhas da Nova Guiné e da Austrália continental foram conectadas por uma "ponte terrestre" devido aos níveis mais baixos do mar, em vez de separadas pelo Estreito de Torres inundado como são hoje. Esta "ponte" permitiu que os primeiros mamíferos australianos, incluindo várias formas gigantes extintas, se movessem para as florestas tropicais da Nova Guiné.

Quando o Estreito de Torres inundou novamente, no entanto, essas populações de animais se desconectaram de seus parentes australianos e evoluíram separadamente para se adequar ao seu lar tropical e montanhoso PNG.

Nombe agora é considerado descendente de uma dessas antigas linhagens de cangurus.
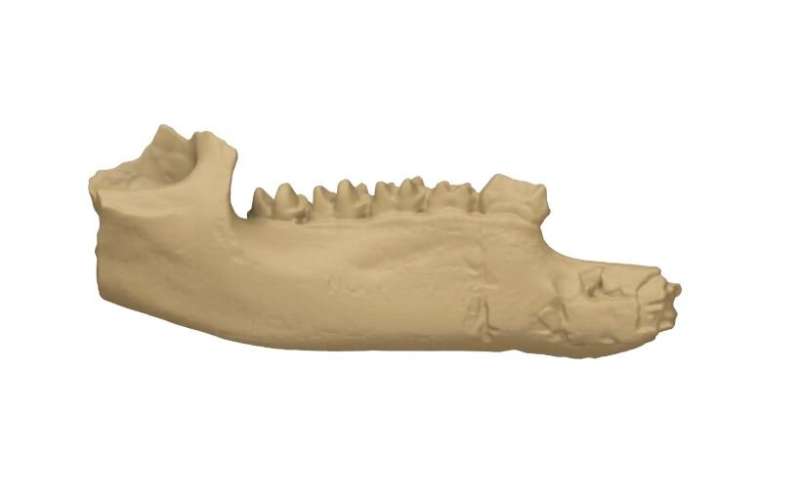
Novo canguru descrito - de PNG
Renderização 3D do osso maxilar fossilizado de canguru PNG usado no novo estudo da Flinders University. Crédito: I Kerr, Flinders University

Trabalhos paleontológicos esporádicos foram realizados lá por pesquisadores americanos e australianos nas décadas de 1960, 70 e 80, muitos dos quais resultaram em fascinantes descobertas de megafauna extinta. No entanto, nenhuma escavação paleontológica ocorreu desde o início dos anos 90, uma situação que os pesquisadores da Flinders University procuram remediar.

Co-autor do novo artigo Transactions of the Royal Society of South Australia , o professor da Flinders University, Gavin Prideaux, diz que a pesquisa se expandirá graças a uma doação da Australia Pacific Science Foundation.

"Estamos muito animados para realizar três escavações paleontológicas em dois locais diferentes no leste e no centro de PNG nos próximos três anos", diz ele.

"Trabalharemos com os curadores do Museu e Galeria de Arte de Papua Nova Guiné e outros contatos em PNG, com quem esperamos construir algum interesse local na paleontologia da Nova Guiné".


Explorar mais

Espécies fósseis do tamanho de Quokka mostram cangurus evoluindo para comer folhas, pela quarta vez

Mais informações: Um novo gênero de canguru fóssil do final do Pleistoceno Nova Guiné, Transações da Royal Society of South Australia (2022). DOI: 10.1080/03721426.2022.2086518


Evidência descobriu que insetos são possivelmente capazes de sentir dor

inseto
Crédito: Unsplash/CC0 Public Domain

Um trio de pesquisadores, dois da Queen Mary University de Londres, o outro da Universidade de Teerã, encontrou evidências que sugerem que os insetos podem ser capazes de sentir dor. Em seu artigo publicado em Proceedings of the Royal Society B , Matilda Gibbons, Lars Chittka e Sajedeh Sarlak, descrevem problemas que encontraram ao tentar descobrir se os insetos sentem dor e a lógica que usaram para mostrar sua possibilidade.

Pesquisas anteriores e evidências anedóticas sugeriram que os  não sentem dor. Por causa disso, os humanos acharam fácil prejudicá-los ou matá-los. Nesse novo esforço, o trio de pesquisa sugere que nossas suposições podem estar erradas.

Os pesquisadores começaram observando que pesquisas anteriores mostraram que animais e insetos têm sistemas fisiológicos que reagem ao que nos animais seria descrito como uma experiência dolorosa. Essas experiências foram separadas no que veio a ser conhecido como nocicepção - a diferença entre responder fisicamente a um  e qualquer possível dor associada ao evento. Ambos respondem se você cortar uma das pernas de um inseto, por exemplo. 

Mas o que não ficou claro é se isso é doloroso para os insetos. Para ajudar a responder a essa pergunta, os pesquisadores usaram o que veio a ser conhecido como ordem descendente de nocicepção – onde o comportamento de nível superior pode ser associado a um evento prejudicial.

Os seres humanos demonstraram ser capazes de interromper uma resposta à dor se ocorrer durante uma emergência – algumas pessoas não percebem que foram feridas em um acidente de carro, por exemplo, até serem tratadas em um hospital. Pesquisas anteriores mostraram que isso é possível porque um evento tão traumático pode levar o cérebro a começar a produzir opiáceos. Os insetos não produzem opiáceos, observam os pesquisadores, mas produzem outros neuropeptídeos que podem servir ao mesmo propósito. Eles descobriram que esses neuropeptídeos são produzidos em insetos durante  , sugerindo que eles são capazes de ordem descendente de nocicepção, o que é uma possível evidência de que eles sentem dor.

Os pesquisadores sugerem que mais trabalho precisa ser feito para determinar se os insetos realmente sentem  e, se sentirem, como abordar as  torno de seu tratamento por seres humanos, causando-lhes danos.


Explorar mais

Insetos sentem dor crônica após lesão

Mais informações: Matilda Gibbons et al, Descending control of nociception in insects?, Proceedings of the Royal Society B: Biological Sciences (2022). DOI: 10.1098/rspb.2022.0599
Informações do jornal: Proceedings of the Royal Society B 

quarta-feira, 29 de junho de 2022

 O que são conodontes?

O que eram conodontes permaneceu um mistério por muitos anos. Acreditava-se que esses microfósseis pertenciam a vermes anelídeos, artrópodes, moluscos, quetognatos (vermes marinhos), peixes (como dentes) e até plantas. A descoberta de um "animal conodonte" articulado foi um avanço significativo.


Os conodontes são um grupo de microfósseis extintos conhecidos desde o final do Cambriano (aproximadamente 500 milhões de anos atrás) até o final do Triássico (cerca de 200 milhões de anos atrás). Eles são as únicas partes duras conhecidas de um grupo extinto de animais que se acredita serem parentes distantes do peixe-bruxa vivo.


Morfologia geral

Os conodontes são geralmente preservados como elementos diminutos e discretos, muitas vezes denticulados (com projeções semelhantes a dentes) de 0,3 mm a 3 mm de comprimento, com uma forma variando de coniforme (semelhante a dentes) a ramiforme (barras) a pectiniforme (placas). Cada espécie é reconstruída como tendo um certo número de elementos com várias formas, incluindo M e S (Sa, Sb, Sc e Sd) posicionados anteriormente e P (Pa e Pb) posicionados posteriormente. Eles formaram um aparelho bilateralmente simétrico localizado na região da cabeça de um 'animal conodonte'.


Composição e preservação

Os conodontes são compostos de fosfato de cálcio, semelhantes aos ossos e dentes dos vertebrados, com uma cor preservada variando de translúcido e incolor a marrom claro a preto e opaco. Eles são preservados na maioria dos tipos de rochas sedimentares marinhas, incluindo carbonatos, xistos, siltitos e sílex, e às vezes são encontrados acumulados em grande número. Como sua composição mineral resiste à dissolução, os conodontes podem ser extraídos de amostras de rochas carbonáticas usando um processo de lixiviação de ácido fraco (por exemplo, ácido acético 10%) em laboratório.


Classificação

O que eram conodontes permaneceu um mistério por muitos anos. Acreditava-se que pertenciam a vermes anelídeos, artrópodes, moluscos, quetognatos (vermes marinhos), peixes (como dentes) e até plantas. A descoberta de um "animal conodonte'" articulado nas rochas carboníferas da Escócia e no Ordoviciano da África do Sul apoia sua classificação atual como um grupo extinto (Classe Conodonta) de craniados, que inclui peixes sem mandíbula até vertebrados com mandíbula no Filo Chordata.


Função e anatomia

Com base nas descobertas de conjuntos de planos de cama, aglomerados fundidos e, mais importante, conjuntos completos encontrados na região da 'cabeça' de 'animais conodontes', os conodontes são interpretados como aparelhos de alimentação. Esta interpretação também é apoiada por estudos recentes de histologia de conodontes, microestrutura e microdesgaste de superfície.


Ecologia

Com uma história fóssil de cerca de 300 milhões de anos (duas vezes maior que a dos dinossauros), os animais conodontes parecem ter sido um dos grupos de maior sucesso que viveram nos oceanos antigos. Eles viviam em uma ampla variedade de habitats, desde regiões rasas entre marés até o mar profundo e de zonas tropicais quentes a altas latitudes frias. Essas pequenas criaturas semelhantes a vermes de alguns a dezenas de centímetros de comprimento provavelmente tinham modos de vida bastante variados, de formas bênticas (que habitam o fundo) ou nektobentônicas (perto do fundo) a pelágicas (que habitam o oceano aberto, muitas vezes espalhadas). , a julgar pelos padrões de distribuição de seus fósseis.


Diversidade

A morfologia altamente diversificada dos conodontes sugere que eles devem ter ocupado a maioria dos principais nichos no oceano. Atualmente existem mais de 1500 espécies pertencentes a mais de 50 famílias relatadas, e provavelmente há muitas mais ainda esperando para serem descobertas. Com rápida radiação e diversificação após sua primeira aparição no final do Cambriano, sua diversidade atingiu seu ápice no Ordoviciano, com mais de dois terços (35) do total de famílias registradas. Após o Carbonífero, os conodontes experimentaram uma fase de declínio gradual que durou cerca de 100 milhões de anos até sua extinção final no final do Triássico.


Marcadores para a escala de tempo geológico

Os conodontes são usados ​​pelos geólogos como uma importante ferramenta para datar e correlacionar rochas paleozóicas e triássicas regional e globalmente devido à sua abundância, sua morfologia altamente diversificada e rapidamente evoluída e sua ampla distribuição. Eles atuam como marcadores primários definindo os limites de muitos sistemas, séries e estágios do Paleozóico e Triássico. Por exemplo, o Sistema Ordoviciano pode ser subdividido em cerca de 30 biozonas definidas por conodontes e graptólitos, cada um com um período de tempo inferior a dois milhões de anos. Este grau de resolução não é superado por nenhum outro método de datação atualmente disponível.


Aplicações industriais

Além de sua utilidade na resolução de tempo e correlação bioestratigráfica, os conodontes também são amplamente utilizados na reconstrução da oceanografia, clima e biogeografia do mundo Paleozóico, e na prática de mapeamento geológico e explorações minerais. Por exemplo, os padrões de cor (CAI – Color Alteration Index) de conodontes são frequentemente usados ​​para determinar a história térmica pós-enterro de bacias sedimentares na indústria de exploração de hidrocarbonetos.

 O que são trilobitas?

O grupo Trilobita existiu desde o início do Período Cambriano (520 milhões de anos atrás) até o final do Período Permiano (250 milhões de anos atrás). O nome Trilobita é derivado da estrutura trilobada do exoesqueleto, que possui um lobo central elevado (ou eixo) e um par de lobos laterais, chamados pleuras. O corpo trilobite também é dividido longitudinalmente em três regiões ou tagmata: uma cabeça ou cefalo, uma região média (tórax) composta de vários segmentos articulados e uma placa de cauda chamada pigídio, que consiste em segmentos fundidos.

Trilobitas como artrópodes

Apesar de um quarto de bilhão de anos desde sua extinção, as afinidades zoológicas dos trilobitas podem ser determinadas a partir de estruturas preservadas em fósseis. Antes que o primeiro trilobita com as pernas fossilizadas fosse descrito em 1870, já estava bem estabelecido que Trilobita pertencia aos Arthropoda. Os artrópodes são o filo animal mais rico em espécies que vive hoje e têm sido o grupo mais diversificado de animais multicelulares desde o início do Cambriano. Seus principais subgrupos são os crustáceos (como camarões e caranguejos), os quelicerados (incluindo aranhas, escorpiões e ácaros) e os grupos totalmente terrestres Insecta e Myriapoda (este último incluindo milípedes e centopéias).


Trilobita é o grupo de artrópodes inteiramente extinto mais rico em espécies. Nos trilobites, o exoesqueleto duro que cobre a superfície dorsal do corpo e sua segmentação bem marcada (por exemplo, os segmentos articulados do tórax) são características clássicas dos artrópodes. O exoesqueleto trilobita foi mineralizado, construído de calcita. O hipóstomo trilobita, uma placa fixada na parte inferior da cabeça logo na frente da abertura da boca, corresponde a uma estrutura semelhante (o labrum) em outros artrópodes. Um par de olhos compostos é desenvolvido na maioria dos trilobites, com o arranjo de suas unidades (ommatídeos) sendo típico de Artrópodes (por exemplo, olhos compostos em caranguejos-ferradura, crustáceos e insetos). Trilobites periodicamente trocam seu exoesqueleto para acomodar o crescimento; Os fósseis de trilobitas às vezes preservam as chamadas configurações de muda que mostram vários estágios na liberação do antigo exoesqueleto e fuga do então animal de corpo mole. A muda é outra característica diagnóstica dos artrópodes. Na maioria das trilobites, a muda foi realizada dividindo o escudo da cabeça ao longo de linhas de fraqueza (chamadas suturas faciais) que correm ao longo da superfície visual do olho.


Pernas de trilobitas

As pernas estão preservadas em menos de 20 espécies de trilobites, mas a estrutura das pernas confirmou a posição do grupo dentro dos Arthropoda. As trilobitas tinham um par de antenas multiarticuladas que se projetavam na frente da cabeça (mas presas mais atrás, contra o hipóstomo), depois mais três pares de pernas da cabeça. As pernas presas ao corpo sob o lobo médio, o eixo, e espalhadas para fora sob os lobos laterais do corpo, as pleuras.


Todos os artrópodes vivos também têm uma cabeça composta por pelo menos quatro segmentos com pernas. Os três pares de pernas da cabeça pós-antenal em trilobites são estruturalmente muito parecidos com os membros atrás da cabeça, um par dos quais foi anexado em cada segmento do tórax e no pigídio. O tórax é composto de dois a 61 segmentos, sendo geralmente constante em uma espécie (a maioria das trilobites tem entre seis e 15 segmentos em seu tórax).


Todas as pernas pós-antenais têm uma estrutura semelhante de duas ramificações (ou birramosas). Um ramo interno de sete segmentos é construído como uma típica perna ambulante em artrópodes vivos, e um ramo externo tem uma franja de filamentos que sugerem que ele funcionava como uma guelra. O ramo interno e externo de cada perna se liga a um grande segmento mediano (chamado coxopodito ou base) que carrega uma bateria de espinhos fortes ao longo de sua margem interna. Esses espinhos teriam funcionado como os espinhos muito semelhantes ao longo da margem interna das pernas em caranguejos-ferradura vivos, sendo usados ​​para rasgar o alimento antes de ser transportado para a boca. A boca nos trilobites se abria na parte de trás do hipóstomo e deve ter sido direcionada posteriormente (como em muitos crustáceos).


Primos de caranguejos-ferradura?

Que as trilobitas são artrópodes está fora de dúvida, mas a posição exata de Trilobita na árvore evolutiva dos artrópodes é mais controversa. Os primeiros trabalhadores tomaram a antiguidade geológica dos trilobites como evidência de que eles eram o tipo mais primitivo de artrópodes, e podem ter incluído os ancestrais dos crustáceos e quelicerados.


Um único par de antenas é provavelmente uma característica primitiva para todos os artrópodes, e a semelhança da estrutura das pernas ao longo do corpo do trilobita (por exemplo, sem as peças bucais especializadas derivadas das pernas de crustáceos ou insetos) também pode ser interpretada como primitiva. Os trabalhadores mais recentes consideram que, entre os artrópodes vivos, os parentes mais próximos dos trilobitas são os quelicerados. A semelhança desses grupos pode não ser óbvia quando comparamos com as aranhas, ácaros ou escorpiões terrestres, mas torna-se mais aparente quando examinamos os quelicerados vivos mais primitivos, os caranguejos-ferradura.


Trilobites, caranguejos-ferradura e escorpiões marinhos têm fileiras de espinhos semelhantes ao longo da margem interna de suas pernas. As lamelas no ramo externo da perna dos trilobitas são semelhantes (e acredita-se que tenham a mesma origem evolutiva) que os filamentos das brânquias dos caranguejos-ferradura e dos pulmões dos aracnídeos.


Os olhos dos trilobites penetram na superfície dorsal do escudo da cabeça como nos caranguejos-ferradura. No entanto, os trilobitas não são os ancestrais diretos dos caranguejos-ferradura ou outros quelicerados. Todos os trilobites compartilham certas características únicas (como a mineralogia da calcita do exoskelton e do olho calcificado) para indicar que são um ramo separado dos Artrópodes.


Leitura adicional

Para informações mais detalhadas sobre a estrutura das trilobites, incluindo sua anatomia de partes moles, excelentes fontes são o volume Trilobita revisado do Tratado de Paleontologia de Invertebrados (1997, Geological Society of America e University of Kansas Press) e o livro de HB Whittington Trilobites (1992). , Boydell).


Um site abrangente, A Guide to the Orders of Trilobites , é mantido por SM Gon III.

http://www.trilobites.info/ 

Trilobitas australianas


Trilobites australianos: uma lista de espécies e bibliografia. Esta lista resume a classificação e a diversidade em nível de espécie de Trilobita na Austrália.

segunda-feira, 27 de junho de 2022


Nova compreensão da arquitetura da Terra: mapas atualizados de placas tectônicas

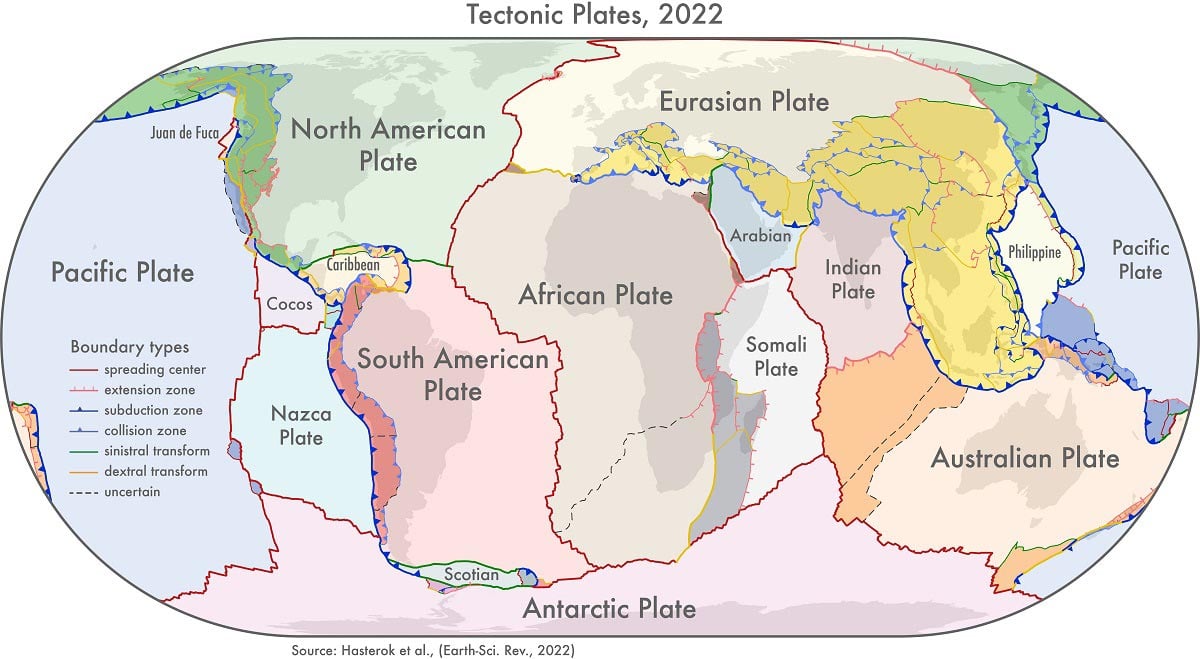
Placas Tectônicas 2022

Novo modelo de placa tectônica com zonas limítrofes em sombreamento mais escuro. Crédito: Dr. Derrick Hasterok, Universidade de Adelaide

Novos modelos que mostram como os continentes foram montados estão fornecendo novos insights sobre a história da Terra e ajudarão a fornecer uma melhor compreensão dos perigos naturais, como terremotos e vulcões.

“Analisamos o conhecimento atual da configuração das zonas de limite de placas e a construção passada da crosta continental”, disse o Dr. Derrick Hasterok, professor do Departamento de Ciências da Terra da Universidade de Adelaide, que liderou a equipe que produziu os novos modelos.

“Os continentes foram montados algumas peças de cada vez, um pouco como um quebra-cabeça, mas cada vez que o quebra-cabeça era terminado, ele era cortado e reorganizado para produzir uma nova imagem. Nosso estudo ajuda a iluminar os vários componentes para que os geólogos possam juntar as imagens anteriores.

“Descobrimos que as zonas de fronteira das placas representam quase 16% da crosta terrestre e uma proporção ainda maior, 27%, dos continentes.”

“Nosso novo modelo para placas tectônicas explica melhor a distribuição espacial de 90% dos terremotos e 80% dos vulcões dos últimos dois milhões de anos, enquanto os modelos existentes capturam apenas 65% dos terremotos”.

— Dr. Derrick Hasterok, Professor, Departamento de Ciências da Terra, Universidade de Adelaide


Novos modelos mostrando a arquitetura da Terra. Crédito: Dr. Derrick Hasterok, Universidade de Adelaide

A equipe produziu três novos modelos geológicos: um modelo de placa, um modelo de província e um modelo de orogenia.

“Existem 26 orogenias – o processo de formação de montanhas – que deixaram uma marca na arquitetura atual da crosta. Muitos deles, mas não todos, estão relacionados à formação de supercontinentes”, disse o Dr. Hasterok.

“Nosso trabalho nos permite atualizar mapas de placas tectônicas e de formação de continentes encontrados em livros didáticos. Esses modelos de placas que foram montados a partir de modelos topográficos e sismicidade global não são atualizados desde 2003.”

O novo modelo de placa inclui várias novas microplacas, incluindo a microplaca Macquarie, que fica ao sul da Tasmânia, e a microplaca Capricorn, que separa as placas indiana e australiana.

“Para enriquecer ainda mais o modelo, adicionamos informações mais precisas sobre os limites das zonas de deformação: modelos anteriores mostravam essas áreas como áreas discretas em vez de zonas amplas”, disse Dr. Hasterok.

“As maiores mudanças no modelo de placas ocorreram no oeste da América do Norte, que geralmente tem a fronteira com a Placa do Pacífico desenhada como as falhas de San Andreas e Queen Charlotte. Mas a fronteira recém-delineada é muito mais ampla, aproximadamente 1.500 km, do que a zona estreita previamente desenhada.

“A outra grande mudança está na Ásia central. O novo modelo agora inclui todas as zonas de deformação ao norte da Índia à medida que a placa abre caminho para a Eurásia.”


Uma história contada pelos continentes. Crédito: Dr. Derrick Hasterok, Universidade de Adelaide

Publicado na revista Earth-Science Reviews , o trabalho da equipe fornece uma representação mais precisa da arquitetura da Terra e tem outras aplicações importantes.

“Nosso novo modelo para placas tectônicas explica melhor a distribuição espacial de 90% dos terremotos e 80% dos vulcões dos últimos dois milhões de anos, enquanto os modelos existentes capturam apenas 65% dos terremotos”, disse o Dr. Hasterok.

“O modelo de placa pode ser usado para melhorar os modelos de riscos de geohazards; o modelo de orogenia ajuda a entender os sistemas geodinâmicos e modelar melhor a evolução da Terra e o modelo de província pode ser usado para melhorar a prospecção de minerais.”

Referência: “New Maps of Global Geological Provinces and Tectonic Plates” por Derrick Hasterok, Jacqueline A. Halpin, Alan S. Collins, Martin Hand, Corné Kreemer, Matthew G. Gard e Stijn Glorie, 31 de maio de 2022, Earth-Science Reviews .
DOI: 10.1016/j.earscirev.2022.104069

O trabalho incluiu pesquisadores das Universidades de Adelaide, Tasmânia, Nevada-Reno e Geoscience Australia.