Pesquisadores encontraram ferramentas de pedra e machados de mão semelhantes aos da indústria acheuliana — exemplos dos quais são mostrados aqui — em um sítio arqueológico nos arredores de Londres. Heritage Image Partnership Ltd/Alamy Stock Photo
Há cerca de 480.000 anos, o mundo estava congelado. Grande parte do que hoje são as Ilhas Britânicas estava soterrada por gelo espesso. Pesquisadores há muito presumiam que até mesmo o solo sem gelo seria inabitável. Mas ferramentas de pedra descobertas à beira de um rio perto de Londres e descritas hoje na Nature Ecology & Evolution sugerem que os hominídeos ocupavam, pelo menos intermitentemente, essa paisagem gélida, embora a caça fosse escassa e os antigos europeus talvez ainda não dominassem o fogo.
Os arqueólogos estão perplexos. "A presença de hominídeos em condições de frio levanta questões importantes sobre como eles sobreviveram", diz Rob Hosfield, arqueólogo da Universidade de Reading que não participou do trabalho.
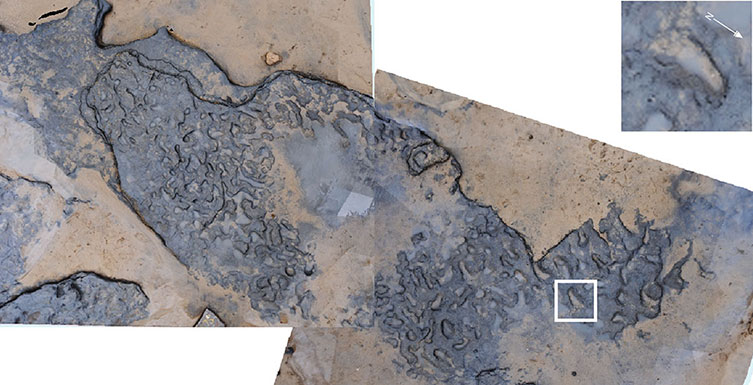
Os humanos antigos, possivelmente um ancestral antigo dos humanos modernos chamado Homo antecessor , se mudaram para o norte da Europa há cerca de 1 milhão de anos, deixando evidências raras, mas impressionantes de sua presença, incluindo uma coleção de pegadas de 850.000 a 950.000 anos descobertas em uma praia na costa sudeste da Inglaterra em 2013.
Na década de 1920, arqueólogos descobriram mais de 300 machados de mão antigos ali, mas datar as ferramentas com precisão não era possível com os métodos da época. Novas escavações realizadas por uma equipe internacional revelaram ferramentas de pedra adicionais e as dataram usando uma técnica chamada radiofluorescência infravermelha, que pode determinar quanto tempo se passou desde que os sedimentos foram soterrados.
Os resultados confirmam que, já há 773.000 anos, humanos antigos estavam presentes no local, onde fabricaram algumas das primeiras ferramentas acheulianas — machados de mão e outros implementos com um perfil bifacial distinto — ainda não encontradas no norte da Europa. Naquela época, Old Park parece ter sido abandonado, possivelmente em resposta ao resfriamento do clima. Mas, há cerca de 440.000 anos, as datações dos sedimentos sugerem que os humanos reapareceram. Nessa época, o H. antecessor havia desaparecido, e a Europa abrigava outros humanos, incluindo o Homo heidelbergensis , frequentemente considerado um ancestral dos neandertais, dos denisovanos e dos humanos modernos.
Anúncio
Este período posterior de atividade humana em Old Park ocorre durante uma onda de frio extremo conhecida como fase glacial Angliana. Espessas camadas de gelo estariam presentes a apenas 65 quilômetros ao norte. Talvez, especulam os pesquisadores que trabalham no sítio, as pessoas viajassem para o local apenas no verão e se retirassem para o sul no inverno. Mas Marie-Hélène Moncel, arqueóloga do Museu Nacional de História Natural de Paris, acha esse cenário difícil de acreditar. "Se imaginarmos um grupo humano vindo no verão, perto da frente glacial, onde poucos animais poderiam viver, é um pouco estranho", diz ela.
Em vez disso, ela afirma que é mais provável que humanos antigos tenham ocupado o local durante um período "interestadial" dentro da glaciação angliana, quando as condições aqueceram ligeiramente e o gelo recuou. Mesmo assim, o ambiente teria sido extremo: fragmentos microscópicos de plantas recuperados do local sugerem que se tratava de uma pradaria fria com poucas árvores, semelhante à atual estepe eurasiana, logo ao sul das florestas boreais da Sibéria.
Essas visitas provavelmente foram testes extenuantes de sobrevivência, diz Hosfield. "Que abrigos naturais estavam disponíveis em uma paisagem fria e aberta? Que fontes de combustível haveria?"
É possível, ele especula, que os humanos antigos queimassem esterco de animais ou mesmo ossos para se aquecer. Mas não está claro se esses fabricantes de ferramentas aprenderam a controlar o fogo. "As primeiras evidências de fogo no norte da Europa só aparecem por volta de 300.000 a 400.000 anos atrás", observa Tomos Proffitt, arqueólogo da Universidade do Algarve e membro da equipe de pesquisa.
Por enquanto, as ferramentas e técnicas que esses antigos viajantes usaram para sobreviver no norte gélido permanecem um mistério. Mas seu feito "desafia o status quo vigente" do pensamento arqueológico, diz Proffitt. "Encontrar evidências da presença humana [nas Ilhas Britânicas] durante esse período é genuinamente surpreendente."
quinta-feira, 7 de agosto de 2025
Translator
A
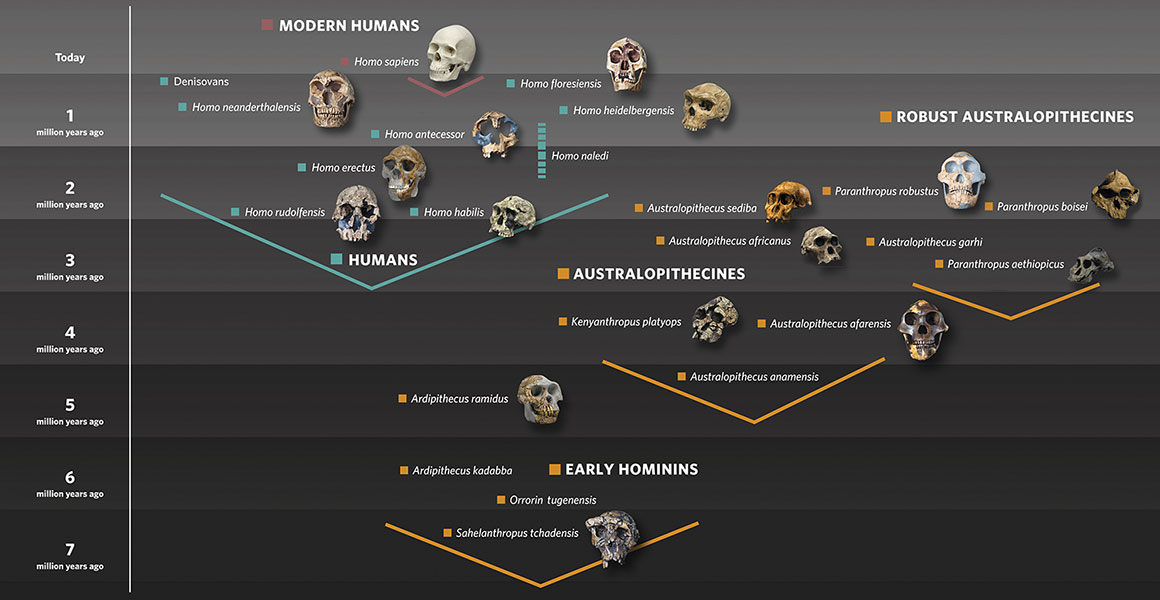
parede de introdução da galeria exibe a diversidade da árvore
genealógica humana usando réplicas de crânios pertencentes aos nossos
antigos parentes hominídeos
A desenvolvedora da galeria Jenny Wong nos conta mais.
A galeria leva os visitantes em uma jornada épica que abrange os últimos sete milhões de anos.
Começando na África com nossos primeiros parentes hominídeos (que são
mais próximos de nós do que dos chimpanzés), os visitantes viajarão no
tempo para conhecer nossos ancestrais humanos enquanto se espalhavam
pela Europa e Ásia. A jornada termina com os humanos modernos como a
única espécie humana sobrevivente no mundo atual.
Ao longo do caminho, os visitantes podem ver espécimes de estrelas
das coleções do museu e conhecer algumas das pesquisas mais recentes que
esclarecem nosso passado.
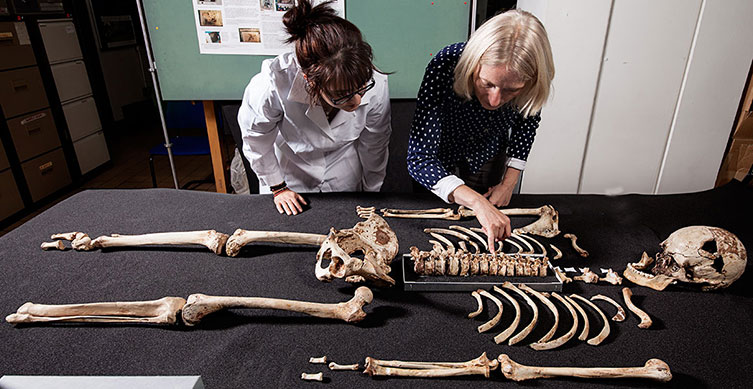
A
conservadora Effie Verveniotou e a pesquisadora de origens humanas,
Dra. Louise Humphrey, examinam o esqueleto humano moderno quase completo
mais antigo já encontrado na Grã-Bretanha antes de sua exibição na
galeria. O Homem de Cheddar viveu há cerca de 10.000 anos.
Uma grande saga
A história da evolução humana não é uma progressão linear e
organizada, com começo e fim concretos. Em vez disso, é a história de
uma árvore genealógica cujos ramos complexos e densos se estendem por
muitos milênios e continentes. Apresenta um elenco mutável de antigos
parentes hominídeos, becos sem saída evolutivos e muitas incógnitas.
Adaptação, sobrevivência e extinção fornecem o pano de fundo dinâmico
desta história.
Ao reunir vestígios fósseis, os cientistas estão revelando como eram
nossos parentes antigos, como eles se relacionavam e como se adaptaram à
vida em diferentes paisagens e climas desafiadores.
Conheça os parentes antigos
Ao entrar na galeria, os visitantes encontram hominídeos como nós e
nossos parentes extintos australopitecos, comparando-os a não hominídeos
como o chimpanzé para explorar as diferenças.
A linhagem humana se separou da linhagem dos chimpanzés há cerca de sete milhões de anos. Evidências
fósseis relacionadas aos primeiros hominídeos que viveram após essa
separação são escassas, mas fornecem pistas importantes sobre como
nossos ancestrais viveram.
de seis a sete milhões de anos, A partir do crânio de Sahelanthropus tchadensis, de seis milhões de anos, encontrado no Chade, sabemos que eles tinham pequenos caninos desenvolvidos, enquanto ossos das pernas de Orrorin tugenensis, mostram que eles exibiam bipedalismo primitivo (andar sobre duas pernas).
Os visitantes podem investigar mais a fundo as principais características dos hominídeos
, como andar habitualmente eretos e ter caninos pequenos que não são
usados como armas, usando uma tela sensível ao toque digital interativa.
O canino Laetoli de 3,5 milhões de anos pertencente ao Australopithecus afarensis é o fóssil de hominídeo mais antigo da coleção do Museu
Os visitantes da galeria também poderão ver uma réplica de um dos hominídeos bípedes mais famosos, o Australopithecus afarensis conhecido como Lucy, que viveu há cerca de 3,2 milhões de anos.
Há cerca de dois milhões de anos, várias espécies de australopitecos,
como Lucy, evoluíram e se espalharam pelo sul e leste da África. Restos
fósseis mostram que eles se adaptaram para sobreviver em diferentes
nichos ecológicos, alterando suas dietas.
Os cientistas acreditam que alguma forma de australopiteco provavelmente deu origem à próxima fase da evolução humana, o gênero Homo .
O que é um ser humano?
Muitas espécies semelhantes a nós viveram nos últimos dois milhões de
anos. Algumas coexistiram com os humanos modernos na Ásia e na Europa
há apenas 40.000 anos.
Quem eram esses parentes e como viviam é o assunto da próxima parte da galeria.
Além da nossa espécie, a galeria apresenta outros oito tipos de humanos: Homo habilis , Homo rudolfensis , Homo erectus , Homo antecessor , Homo heidelbergensis , Homo floresiensis (apelidado de "o hobbit"), Homo neanderthalensis (os neandertais) e o recentemente descoberto Homo naledi . Os misteriosos denisovanos , que podem ou não ser uma espécie distinta, também fazem uma aparição.
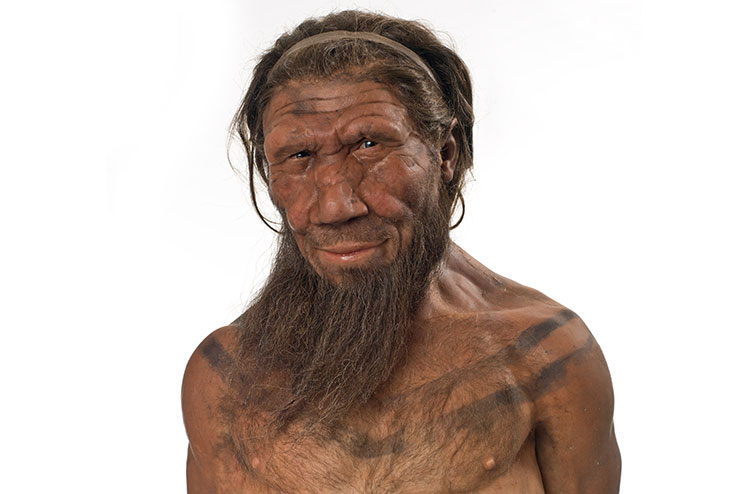
Modelo cientificamente preciso do Homo neanderthalensis
, desenvolvido por Kennis & Kennis. Os neandertais sobreviveram na
Europa até a extinção da espécie, há cerca de 39.000 anos.
Espécimes
fósseis, moldes e outros objetos em exposição fornecem uma série de
instantâneos no tempo, oferecendo aos visitantes vislumbres da vida de
nossos antigos parentes.
As exibições incluem uma machadinha de sílex possivelmente feita pelo Homo heidelbergensis
e um crânio de rinoceronte abatido cujos cérebros foram extraídos e
comidos por humanos antigos em Sussex, Inglaterra, há cerca de 500.000
anos.
Os visitantes podem investigar um sepultamento neandertal e outras
pistas sobre o comportamento neandertal, como ferramentas inovadoras,
que sugerem mentes capazes de criatividade e invenção.
Ao se depararem com um modelo neandertal cientificamente preciso, os
visitantes verão o quão fisicamente adaptados eles eram aos climas
frios.
O minúsculo Homo floresiensis destaca outra maneira pela
qual nossos antigos parentes se adaptaram ao ambiente, tornando-se
menores em resposta aos recursos limitados disponíveis no ambiente da
ilha de Flores, na Indonésia — um processo conhecido como nanismo
insular.
Teste rápido
Onde nossa espécie, Homo sapiens , evoluiu?
Isso mesmo!
O Homo sapiens evoluiu na África. Somos descendentes de diversas populações espalhadas pelo continente.
Primeiras experiências fascinantes
Os visitantes conhecerão algumas das pesquisas interessantes nas
quais os cientistas do museu se envolveram recentemente como parte dos
projetos Ocupação Humana Antiga da Grã-Bretanha e Caminhos para a
Grã-Bretanha Antiga, incluindo a descoberta das pegadas humanas mais antigas da Europa .
Em 2013, a erosão da costa de Norfolk expôs uma trilha preservada de
pegadas que datam de cerca de 900.000 anos atrás. Análises sugerem que
elas foram deixadas por um pequeno grupo de humanos, talvez alguns dos
primeiros a pisar na Grã-Bretanha. Você pode tocar em uma réplica de
pegada na galeria.
Uma
área das pegadas de 900.000 anos encontradas em Happisburgh, Norfolk,
com uma foto ampliada da oitava pegada mostrando impressões dos dedos
dos pés
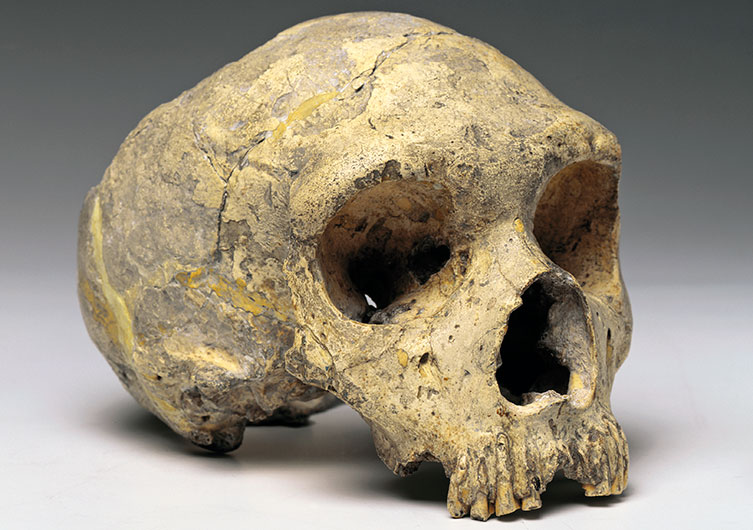
Outros espécimes de estrelas nesta parte da galeria incluem o crânio de Broken Hill do Homo heidelbergensis — o primeiro fóssil humano primitivo encontrado na África — e o crânio de Gibraltar 1, o primeiro crânio de neandertal adulto já encontrado . O Gibraltar 1 foi recentemente amostrado para DNA antigo, e os resultados são aguardados com grande expectativa.
Uma nova visão do passado
Com os avanços na extração e análise de DNA antigo e no
sequenciamento dos genomas neandertais e denisovanos, os cientistas
estão revelando com mais detalhes como nossos ancestrais poderiam ter se
parecido e se comportado. Eles também estão identificando o que
exatamente herdamos de nossos parentes humanos antigos mais próximos.
Sabemos que o cruzamento com esses humanos antigos permitiu que o Homo sapiens adquirisse genes que melhoraram suas chances de sobrevivência, e alguns desses genes permanecem em muitos de nós hoje.
Parte do DNA herdado dos neandertais parece ter estado envolvido no
aumento da imunidade, por exemplo, enquanto uma variante genética
herdada dos denisovanos — presente hoje em populações tibetanas — pode
permitir melhor sobrevivência em grandes altitudes.
Gibraltar 1, o primeiro crânio de mulher neandertal adulta já descoberto
Fora da África
A parte final da galeria explora como nossa espécie, Homo sapiens , se originou na África, antes de se dispersar pelo mundo e se tornar a única espécie humana sobrevivente hoje.
Os humanos modernos evoluíram na África há cerca de 200.000 anos.
Eles têm uma caixa craniana mais alta e arredondada, rostos e
sobrancelhas menores e um queixo mais proeminente do que outros humanos
antigos.
Os moldes em exposição incluem fósseis de humanos modernos
encontrados na África (cerca de 195.000 anos), Israel (cerca de 100.000
anos) e Austrália (cerca de 12.000 anos).
Esses fósseis mostram que, em vez de surgirem totalmente formados na
África, as características típicas do ser humano moderno se
desenvolveram ao longo do tempo. Eles também sugerem que pode ter havido
pelo menos duas ondas de migração para fora da África — uma datando de
cerca de 100.000 anos atrás e outra de cerca de 60.000 anos atrás.
Fora da África, somos todos descendentes daqueles que partiram naquela segunda onda de migração.
Cultura em evolução
Artefatos nesta zona final da galeria destacam o artesanato e a
engenhosidade dos humanos modernos, bem como o simbolismo antigo e as
práticas culturais, como o canibalismo.
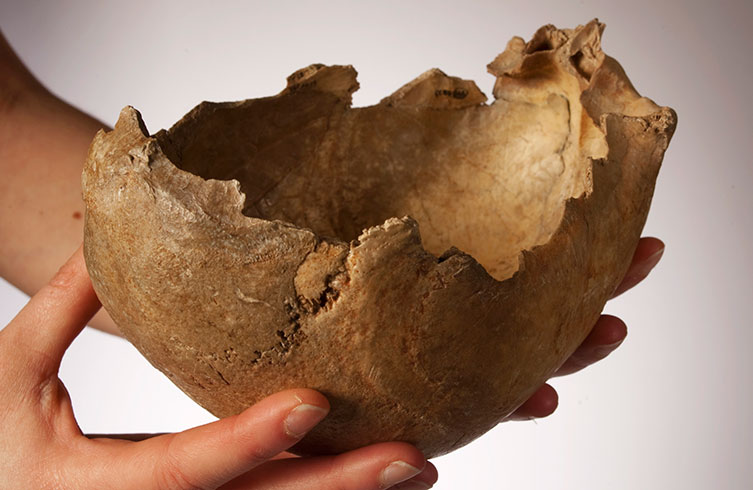
Crânio
humano moldado em forma de xícara. Os cientistas do museu, Dra. Silvia
Bello e Prof. Chris Stringer, têm pesquisado marcas de corte em ossos da
Caverna de Gough, em Somerset, Inglaterra, para entender melhor o
comportamento dos humanos que viveram lá há 14.700 anos.
Uma história em mudança
A evolução humana é um quebra-cabeça com milhares de peças fósseis e
bilhões de fragmentos de DNA. À medida que novos fósseis são descobertos
e adicionados à árvore genealógica humana, novas técnicas de datação e
dados climáticos fornecem uma imagem mais precisa das condições em que
nossos ancestrais evoluíram.
Técnicas aprimoradas de DNA ajudarão a determinar onde cada espécie
se encaixa na árvore genealógica e nos darão mais informações sobre a
evolução humana recente e em andamento.
Cientistas e coleções de museus desempenham um papel fundamental na
formação de um dos campos mais promissores da ciência atualmente. Temos o
prazer de poder mostrar aos visitantes alguns desses trabalhos na galeria .
terça-feira, 1 de julho de 2025
Translator
História genética de um grupo arcaico de hominídeos da Caverna Denisova na Sibéria
Utilizando
DNA extraído de um osso de dedo encontrado na Caverna Denisova, no sul
da Sibéria, sequenciamos o genoma de um hominídeo arcaico com uma
cobertura de cerca de 1,9 vezes. Este indivíduo pertence a um grupo que
compartilha uma origem comum com os neandertais. Esta população não
esteve envolvida no suposto fluxo gênico dos neandertais para os
eurasianos; no entanto, os dados sugerem que ela contribuiu com 4 a 6%
de seu material genético para os genomas dos melanésios atuais.
Designamos esta população de hominídeos como "denisovanos" e sugerimos
que ela pode ter sido disseminada na Ásia durante o Pleistoceno
Superior. Um dente encontrado na Caverna Denisova carrega um genoma
mitocondrial muito semelhante ao do osso do dedo. Este dente não
compartilha características morfológicas derivadas com os neandertais ou
os humanos modernos, indicando ainda mais que os denisovanos têm uma
história evolutiva distinta dos neandertais e dos humanos modernos.
Conteúdo semelhante sendo visualizado por outras pessoas
Há
menos de 200.000 anos, humanos anatomicamente modernos (ou seja,
humanos com esqueletos semelhantes aos dos humanos atuais) surgiram na
África. Naquela época, bem como posteriormente, quando os humanos
modernos surgiram na Eurásia, outros hominídeos "arcaicos" já estavam
presentes na Eurásia. Na Europa e na Ásia Ocidental, os hominídeos
definidos como neandertais com base em sua morfologia esquelética
viveram há pelo menos 230.000 anos, antes de desaparecerem do registro
fóssil há cerca de 30.000 anos. 1 No
leste da Ásia, não há consenso sobre quais grupos estavam presentes.
Por exemplo, na China, alguns enfatizaram afinidades morfológicas entre
os neandertais e o espécime de Maba. 2 , ou entre o Homo heidelbergensis e o crânio de Dali 3 . No entanto, outros classificam esses espécimes como ' Homo sapiens primitivos ' 4 . Além disso, até pelo menos 17.000 anos atrás, o Homo floresiensis , um hominídeo de baixa estatura que parece representar uma divergência inicial da linhagem que levou aos humanos atuais 5 , 6 , 7 , estava presente na ilha de Flores, na Indonésia, e possivelmente em outros lugares.
Sequências
de DNA recuperadas de restos mortais de hominídeos oferecem uma
abordagem complementar à morfologia para a compreensão das relações
entre hominídeos. Para os neandertais, o genoma nuclear foi recentemente
determinado com uma cobertura de cerca de 1,3 vezes maior. 8 Isso
revelou que as sequências de DNA neandertais e as dos humanos atuais
compartilham ancestrais comuns, em média, há cerca de 800.000 anos, e
que a divisão populacional dos ancestrais neandertais e humanos modernos
ocorreu entre 270.000 e 440.000 anos atrás. Também demonstrou que os
neandertais compartilhavam mais variantes genéticas com os humanos
atuais na Eurásia do que com os humanos atuais na África Subsaariana,
indicando que o fluxo gênico dos neandertais para os ancestrais de não
africanos ocorreu a tal ponto que 1% a 4% dos genomas de pessoas fora da
África são derivados de neandertais. 8 . Além disso, dez sequências parciais e seis completas de DNA mitocondrial (mt) foram determinadas em neandertais 9 , 10 , 11 , 12 , 13 , 14 , 15 , 16 , 17 .
Isso mostrou que todos os neandertais estudados até agora compartilham
um ancestral comum de mtDNA da ordem de 100.000 anos atrás 10 , e por sua vez, compartilham um ancestral comum com os mtDNAs dos humanos atuais, há cerca de 500.000 anos 10 , 18 , 19 (como
esperado, isso é mais antigo do que o tempo de divisão da população
humana moderna entre Neandertais de 270.000 e 440.000 anos atrás,
estimado a partir do genoma nuclear 8 ).
Uma dessas sequências de mtDNA também mostrou que hominídeos portadores
de mtDNAs típicos de neandertais estavam presentes tão a leste quanto
as montanhas Altai, no sul da Sibéria. 13 .
Em
2008, a falange manual distal de um hominídeo juvenil foi escavada na
Caverna Denisova. Este sítio arqueológico está localizado nas Montanhas
Altai, no sul da Sibéria, e é um sítio de referência para o Paleolítico
Médio e Superior da região, onde escavações sistemáticas ao longo dos
últimos 25 anos revelaram camadas culturais que indicam que a ocupação
humana no local começou há cerca de 280.000 anos. 20 A
falange foi encontrada na camada 11, datada de 50.000 a 30.000 anos
atrás. Esta camada contém microlâminas e ornamentos corporais de pedra
polida, típicos da "indústria do Paleolítico Superior", geralmente
considerada associada aos humanos modernos, mas também ferramentas de
pedra mais características do Paleolítico Médio inicial, como raspadores
laterais e blocos de Levallois. 21 , 22 , 23 .
Recentemente, usamos uma abordagem de captura de DNA 10 em
combinação com sequenciamento de alto rendimento para determinar um
genoma completo de mtDNA da falange de Denisova. Surpreendentemente,
este mtDNA divergiu da linhagem comum que levou aos mtDNAs humanos e
neandertais modernos há cerca de um milhão de anos.19 ,
ou seja, cerca de duas vezes mais distante no tempo do que a
divergência entre os mtDNAs de Neandertais e humanos modernos.
No
entanto, o mtDNA é herdado maternalmente como uma unidade única sem
recombinação e, portanto, está sujeito a eventos aleatórios, como deriva
genética, bem como fluxo gênico e seleção positiva. Em contraste, o
genoma nuclear compreende dezenas de milhares de loci não ligados, em
sua maioria de evolução neutra. Isso permite análises de relações
genéticas que são robustas à estocasticidade da deriva genética e são
muito menos afetadas pela seleção positiva. Para esclarecer a relação do
indivíduo Denisova com outros grupos de hominídeos, sequenciamos o
genoma nuclear de Denisova e analisamos suas relações genômicas com os
neandertais e os humanos atuais. Também tentamos esclarecer a cronologia
da ocupação hominídea da caverna e identificamos um dente desse grupo
de hominídeos entre o material escavado na Caverna Denisova.
Determinação da sequência de DNA
Toda
a porção interna da amostra da falange foi usada para extração de DNA
em nossa instalação de sala limpa, onde procedimentos para minimizar a
contaminação do DNA humano atual são rigorosamente implementados. 24 , 25 ( Seção 1 de Informações Suplementares
). O DNA foi tratado com duas enzimas: uracil-DNA-glicosilase, que
remove resíduos de uracila do DNA para deixar sítios abásicos 26 e a endonuclease VIII, que corta o DNA nos lados 5' e 3' dos sítios abásicos. A incubação subsequente com a polinucleotídeo quinase T4 e a DNA polimerase T4
foi utilizada para gerar extremidades rombas fosforiladas em 5',
passíveis de ligação com adaptadores. Como a grande maioria dos resíduos
de uracila ocorre próximo às extremidades de moléculas de DNA antigas,
esse procedimento leva a uma redução apenas moderada no comprimento
médio das moléculas na biblioteca, mas a uma redução significativa na
incorporação incorreta de nucleotídeos derivados de uracila. 27 .
Duas
bibliotecas de sequenciamento independentes (SL3003 e SL3004) foram
criadas a partir do DNA, usando um protocolo Illumina modificado 28 onde
uma reação em cadeia da polimerase (PCR) é usada para adicionar um
índice de 7 nucleotídeos (neste caso, 5'-GTCGACT-3') às moléculas da
biblioteca. Este índice garante que as bibliotecas não sejam
contaminadas por outras bibliotecas de sequenciamento quando retiradas
da sala limpa para serem sequenciadas. 29
As
bibliotecas foram sequenciadas na plataforma Illumina Genome Analyser
IIx por 101 ciclos a partir de cada extremidade das moléculas e mais 7
ciclos para determinação do índice até que quase todas as sequências
únicas nas bibliotecas tivessem sido observadas múltiplas vezes, ou
seja, quase todos os clones presentes nas bibliotecas tivessem sido
sequenciados ( seção 1 de Informações Suplementares ). As bases foram chamadas utilizando o algoritmo de aprendizado de máquina Ibis. 30 e
uma sobreposição de pelo menos 11 bases foi necessária para que as
leituras de extremidade pareada fossem fundidas a sequências de DNA de
tamanho molecular completo que foram analisadas posteriormente. Isso
resulta em uma taxa de erro bastante reduzida. 27 , embora remova da análise as poucas moléculas com mais de 191 nucleotídeos de comprimento ( ∼ 0,1% em SL3003 e ∼ 0,2% em SL3004). As sequências foram mapeadas usando o programa BWA. 31 aos
genomas humano (hg18/NCBI 36) e do chimpanzé (panTro2/CGSC 2.1), bem
como ao genoma ancestral inferido dessas espécies (do alinhamento de
seis vias Enredo-Pecan-Ortheus) 32 .
Duplicatas de PCR foram identificadas e usadas para aumentar ainda mais
a precisão da sequência, chamando sequências de consenso.
Um
total de 82.227.320 sequências mapeadas exclusivamente (qualidade de
mapeamento ≥ 30) para o genoma humano, resultando em cerca de 5,2
gigabases de sequências de DNA (cobertura genômica 1,9 vezes maior), e
72.304.848 sequências mapeadas exclusivamente para o genoma do
chimpanzé. Quando as substituições inferidas como tendo ocorrido nas
linhagens Denisova e humana atual foram comparadas, os números relativos
de diferentes classes de substituições de nucleotídeos são notavelmente
semelhantes, e o excesso de substituições candidatas na linhagem
Denisova em relação à linhagem humana atual é de apenas 1,7 vezes ( Figura 2.2 e Tabela 2.4 Complementares ). Isso reflete uma melhora na taxa de erro em relação ao genoma neandertal em mais de uma ordem de magnitude. 8 e é principalmente devido à remoção enzimática de resíduos de uracila do DNA de Denisova 27 .
Estimamos que a maioria dos erros nas sequências de DNA de Denisova se
deve à baixa cobertura genômica e não a quaisquer características
típicas do DNA antigo.
Estimativas de contaminação por DNA humano
Embora
medidas rigorosas para prevenir a contaminação dos experimentos com DNA
de humanos atuais tenham sido implementadas em todas as etapas do
laboratório, é impossível prevenir completamente a contaminação, pois
amostras de ossos e reagentes podem ser contaminados antes de entrarem
na sala limpa. Para estimar os níveis de contaminação nas sequências
produzidas, utilizamos três abordagens ( Informações Suplementares, seção 3).
Primeiramente,
estimamos o nível de contaminação por mtDNA usando 276 posições de
sequência onde o mtDNA de Denisova difere de >99% dos mtDNAs humanos
atuais. Para a biblioteca SL3003, observamos 7.433 sequências únicas que
cobriam tais posições, e 7.421 eram do tipo Denisova. Para a biblioteca
SL3004, os números correspondentes foram 5.042 e 5.036, indicando que a
contaminação por mtDNA nas bibliotecas é da ordem de 0,2% (intervalo de
confiança de 95% [IC]: 0,1-0,3%) e 0,1% (IC: 0,1-0,3%),
respectivamente.
Em segundo lugar, identificámos sequências que são exclusivas do cromossoma Y 8 Se
o indivíduo de quem a falange deriva for do sexo feminino, o número
dessas sequências representa a extensão da contaminação por DNA
masculino. Encontramos zero e três dessas sequências do cromossomo Y nas
duas bibliotecas, respectivamente, enquanto 1.449 e 696 são esperadas
se o indivíduo for do sexo masculino. Assim, a contaminação por DNA do
osso derivado de uma falange feminina e masculina nas duas bibliotecas é
da ordem de 0,00% (IC: 0,00-0,25%) e 0,43% (IC: 0,09-1,26%),
respectivamente.
Terceiro, para estimar a extensão da
contaminação nuclear do DNA, usamos uma biblioteca para identificar
posições onde o indivíduo Denisova carrega uma variante de sequência
ancestral, isto é, semelhante à dos chimpanzés, que entre os humanos
atuais é derivada e não se sabe que varia. Em seguida, examinamos
sequências que mapeiam nessas posições na outra biblioteca e
determinamos se elas carregam a sequência ancestral ou a sequência
derivada. A observação de uma sequência derivada na segunda biblioteca
pode ser devido a uma de três possibilidades: que o fragmento de DNA em
questão vem da contaminação humana atual; que o indivíduo Denisova é
heterozigoto na posição em questão; ou que houve um erro de
sequenciamento. Implementamos um método de máxima verossimilhança que
usa o número de observações independentes de estados ancestrais e
derivados entre posições para coestimar a contaminação juntamente com a
heterozigosidade e o erro de sequenciamento como parâmetros incômodos ( seção 3 de Informações Suplementares ). A partir dessa análise, infere-se que ambas as bibliotecas têm taxas de contaminação inferiores a 1%.
Características ancestrais e duplicações
O
rascunho da sequência do genoma Denisova permite a identificação de
características ancestrais no genoma Denisova e derivadas de humanos
atuais. Descrevemos anteriormente um conjunto de 10,5 milhões de
diferenças em nucleotídeos únicos e cerca de meio milhão de
inserções/deleções (indels) inferidas como decorrentes de mudanças
ocorridas na linhagem humana desde a separação do ancestral comum com o
chimpanzé. 8 .
Destas, 4.267.431 (40,5%) diferenças de nucleotídeo único e 105.372
(22,0%) indels são cobertas pelas sequências Denisova. Identificamos 129
substituições de aminoácidos inferidas e 14 indels nas sequências
codificadoras de genes onde o indivíduo Denisova carrega os alelos
ancestrais em posições onde os humanos atuais carregam alelos derivados e
não são conhecidos por variar ( Seção 4 de Informações Suplementares
). Também identificamos 90 desses locais em regiões não traduzidas
(UTRs) 5', 392 em UTRs 3', dois em genes de microRNA e 104 em regiões
aceleradas humanas. Quando comparamos os genomas Denisova e Neandertal,
descobrimos que eles carregam o mesmo estado atribuído em diferenças de
nucleotídeo único em 87,9% das posições ancestrais e 97,7% das posições
derivadas. Os resultados para indels são semelhantes: 87,6% para estados
ancestrais e 98,6% para estados derivados ( Tabela Suplementar 4.3 ).
Analisamos o conteúdo de duplicação segmentar do genoma Denisova detectando regiões com excesso de profundidade de leitura ( seção 5 de Informações Suplementares
). Em uma comparação tripla dos genomas Denisova, Neandertal e humano
atual, encontramos um excesso de duplicações privadas de Denisova (2,27
megabases (Mb)) em comparação com duplicações que eram privadas em
Neandertais (0,60 Mb) ou humanos atuais (1,32 Mb). Essas regiões foram
identificadas com base em assinaturas de excesso de profundidade de
leitura e divergência de sequência aumentada, tornando improvável que
sejam artefatos. Também identificamos duas regiões onde a arquitetura de
duplicação de Denisova é mais semelhante à do chimpanzé do que à dos
Neandertais ou humanos atuais, incluindo duas regiões cromossômicas
associadas à doença neurológica em humanos: atrofia muscular espinhal em
5q13 (incluindo SMN2 , uma das duplicações genéticas mais recentes na linhagem humana) e doença neuropsiquiátrica em 16p12.1.
Relationship to Neanderthals and modern humans
Uma
questão fundamental é se o indivíduo Denisova é um grupo externo aos
neandertais e aos humanos modernos, como sugere o mtDNA 19 ,
seja um grupo irmão dos neandertais ou dos humanos modernos, ou se se
enquadra na faixa de variação de qualquer um desses dois grupos.
Abordamos isso estimando a divergência entre a sequência de referência
do genoma Denisova e do humano como uma fração da divergência entre os
humanos atuais e o ancestral comum compartilhado com o chimpanzé. Para
isso, pontuamos a frequência com que o genoma Denisova carrega o estado
humano versus o estado do chimpanzé em posições onde os genomas de
referência humano e do chimpanzé diferem; assumindo taxas evolutivas
constantes ( seção 2 de Informações Suplementares ). Restringimos esta análise às partes do genoma de referência humano que são de ancestralidade africana. 33 como fluxo genético dos neandertais para os não africanos 8 poderia
complicar essas análises. O genoma de Denisova divergiu do genoma
humano de referência em 11,7% (IC: 11,4-12,0%) ao longo da linhagem até o
ancestral humano-chimpanzé. Para o Neandertal Vindija, a divergência é
de 12,2% (IC: 11,9-12,5%). Assim, enquanto a divergência do mtDNA de
Denisova com os mtDNAs humanos atuais é cerca de duas vezes mais
profunda que a do mtDNA Neandertal 19 , a divergência média do genoma nuclear de Denisova dos humanos atuais é semelhante à dos neandertais.
Uma
possível explicação para a divergência semelhante entre o indivíduo
Denisova e os neandertais dos africanos atuais é que ambos descendem de
uma população ancestral comum que se separou anteriormente dos
ancestrais dos humanos atuais. Tal cenário preveria uma relação mais
próxima entre o indivíduo Denisova e os neandertais do que entre
qualquer um deles e os humanos atuais. Para testar essa previsão,
estimamos a divergência entre pares de sete genomas antigos e modernos
(Denisova, Neandertais, Franceses, Han, Papuas, Iorubás e San), usando
uma abordagem em que corrigimos as taxas de erro em cada genoma com base
na suposição de que cada um tem o mesmo número de diferenças
verdadeiras em relação ao chimpanzé ( seção 6 de Informações Suplementares
). A divergência média entre os neandertais Denisova e Vindija é
estimada em 9,84% do caminho até o ancestral chimpanzé-humano; ou seja,
menos do que a divergência média de 12,38% de ambos em relação aos
africanos atuais. Considerando 6,5 milhões de anos para a divergência
entre humanos e chimpanzés, isso implica que as sequências de DNA dos
neandertais e do indivíduo denisovano divergiram em média há 640.000
anos, e dos africanos atuais há 804.000 anos.
Para analisar mais a
fundo a relação do indivíduo Denisova e dos neandertais, alinhamos as
sequências de Denisova, Neandertal e Iorubá ao genoma do chimpanzé,
escolhemos uma única sequência aleatoriamente para representar cada
grupo e examinamos locais onde foram observadas duas cópias de um alelo
derivado e uma cópia de um alelo ancestral. Espera-se que erros de
sequenciamento tenham uma contribuição insignificante nesses locais. O
número de locais onde o indivíduo Denisova e o Neandertal se agrupam,
excluindo os Iorubás e os chimpanzés, é de 46.362, em comparação com uma
média de 22.012 locais para os outros dois padrões possíveis (Iorubá e
Denisova, ou Iorubá e Neandertal). Esse excesso de locais onde Denisova e
Neandertal se agrupam apoia a visão de que o indivíduo Denisova e os
neandertais compartilham uma história comum desde a separação dos
ancestrais dos humanos modernos ( seção 6 de Informações Suplementares ).
Um gargalo específico do Neandertal
O
fato de que o genoma nuclear de Denisova compartilha, em média, um
ancestral comum mais recente com os neandertais do que com os humanos
atuais levanta a questão de se a divergência geral da sequência de DNA
do indivíduo de Denisova se enquadra dentro do grupo morfológica e
geograficamente definido como neandertais, ou se representa um grupo
irmão dos neandertais.
Para investigar esta questão, aproveitámos
o facto de que, além dos três indivíduos da Caverna de Vindija, na
Croácia, de onde foram produzidas a maior parte das sequências do genoma
neandertal, determinámos sequências de ADN nuclear de mais três
indivíduos neandertais da Rússia, Espanha e Alemanha. 8 Destes,
o esqueleto de uma criança neandertal, com 60.000 a 70.000 anos,
encontrado na Caverna Mezmaiskaya, na Rússia, é o mais antigo e
geograficamente mais próximo do indivíduo de Denisova. Utilizando os 56
Mb de sequências de DNA autossômico determinadas a partir deste espécime
8 ,
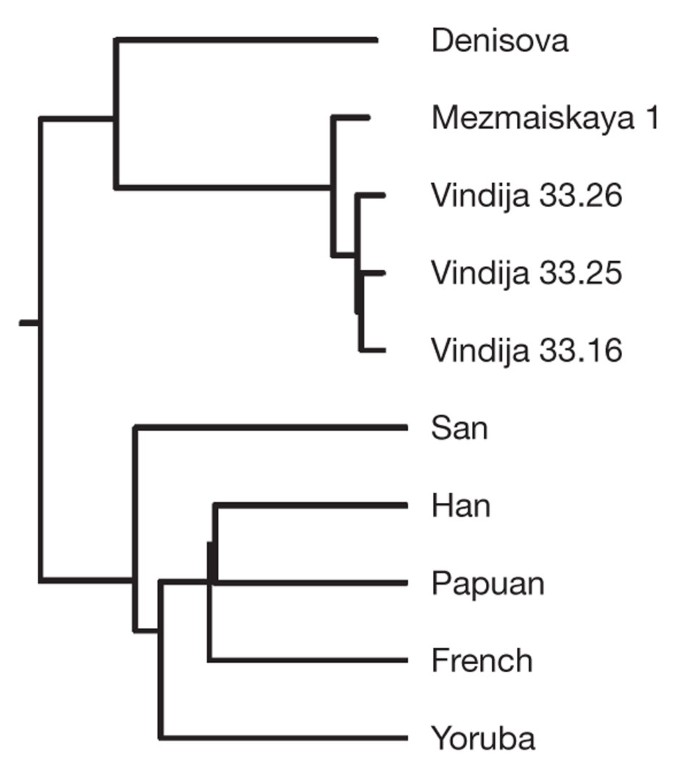
estimamos que a divergência na sequência de DNA entre os neandertais de
Vindija e Mezmaiskaya corresponde a uma data de 140.000 ± 33.000 anos
atrás ( seção 6 de Informações Suplementares ) ( Fig. 1
). Essa divergência notavelmente baixa — que corresponde a cerca de um
terço do par mais próximo de humanos atuais que analisamos — está de
acordo com a observação de que a diversidade entre os mtDNAs neandertais
é baixa em relação aos humanos atuais. 10 e
indica que os neandertais Vindija e Mezmaiskaya descendem de uma
população ancestral comum que passou por um gargalo drástico desde que
se separou dos ancestrais do indivíduo Denisova.
Figura 1:
Uma árvore de união de vizinhos baseada em
divergências de sequências de DNA autossômico em pares de cinco
hominídeos antigos e cinco atuais.
Vindija 33.16, Vindija 33.25 e Vindija 33.26 referem-se aos números de catálogo dos ossos de neandertal.
Para
compreender melhor o gargalo na história dos neandertais de Vindija e
Mezmaiskaya, examinamos alinhamentos quádruplos da sequência genômica do
neandertal de Vindija, do neandertal de Mezmaiskaya, do indivíduo de
Denisova e do genoma do chimpanzé. Em substituições transversais, onde
duas cópias dos alelos derivados são observadas, detectamos 924
substituições que agrupam os neandertais de Vindija e Mezmaiskaya, 80
que agrupam Vindija e Denisova e 81 que agrupam Mezmaiskaya e Denisova.
Isso corresponde a pelo menos 65% de probabilidade de que as sequências
de DNA nos neandertais compartilhem um ancestral comum mais recente do
que sua separação do ancestral do indivíduo de Denisova ( Informações Suplementares
, seção 7). É muito maior do que a probabilidade de 15 a 20% associada
ao gargalo "Fora da África", comum aos não africanos atuais. 34 .
Se substituirmos o Neandertal de Mezmaiskaya nesta análise por um
Neandertal de El Sidron, Espanha, ou de Feldhofer, Alemanha, os
resultados são qualitativamente semelhantes, embora os números sejam
menores ( seção 7 de Informações Suplementares
). Assim, concluímos que os Neandertais tardios em uma ampla
distribuição geográfica têm uma história populacional distinta daquela
do indivíduo Denisova, pois compartilham um forte gargalo populacional
não experimentado pelos ancestrais do indivíduo Denisova. Chamamos o
grupo ao qual esse indivíduo pertencia de Denisovanos em analogia aos
Neandertais, pois os Denisovanos são descritos pela primeira vez com
base em dados moleculares da Caverna Denisova, assim como os Neandertais
foram descritos pela primeira vez com base em restos de esqueletos
recuperados no Vale do Neander, na Alemanha.
Nenhum fluxo genético denisovano em todos os eurasianos
Mostramos
anteriormente que os neandertais de Vindija compartilham mais alelos
derivados com não africanos do que com africanos, o que é consistente
com os neandertais contribuindo com 1–4% dos genomas dos humanos atuais
na Eurásia. 8.
To investigate the extent to which the Denisova individual shares this
pattern, we examined alignments of sets of four genomes, each consisting
of an African (Yoruba or San), a Eurasian (French or Han), an archaic
hominin (Neanderthal or Denisovan) and the chimpanzee. We randomly
sampled one allele from each of the three hominins, and counted all
transversion differences between the African and the Eurasian where the
archaic individual carries the derived allele (the ‘D statistics’ of ref. 8). Neanderthals match the French genome on average 4.6 ± 0.7% more often than they match the Yoruba genome (Table 1).
Although the Denisova individual also matches the French more than the
Yoruba genome, this skew is significantly less strong at 1.8 ± 0.5%. The
estimates of D statistics were quantitatively consistent (within
two standard deviations) for all other choices of Eurasian and African
populations (Table 1).
These findings indicate that the archaic component of the Eurasian gene
pool is less closely related to the Denisova individual than to
Neanderthals.
Tabela 1 Compartilhamento de alelos derivados entre hominídeos atuais e arcaicos
Também
examinamos 13 regiões genômicas que identificamos anteriormente como
candidatas a uma contribuição de material genético arcaico para os não
africanos, com base em suas divergências genéticas mais profundas nos
não africanos do que nos africanos. 8 Utilizando
"SNPs de marcação" que informam se um haplótipo é da linhagem exclusiva
de não africanos, descobrimos que o indivíduo Denisova corresponde ao
haplótipo não africano profundamente divergente em 6 casos, enquanto os
Neandertais o fazem em 11 casos ( Informações Suplementares
, seção 7). Assim, tanto os Neandertais quanto os Denisovanos estão
mais relacionados do que seria de se esperar por acaso a esses segmentos
genômicos, mas o sinal nos Denisovanos é mais fraco.
Essas
análises indicam que os neandertais são mais intimamente relacionados do
que os denisovanos à população que contribuiu para o pool genético dos
ancestrais dos eurasianos atuais. O fato de os eurasianos compartilharem
alguma afinidade adicional com o indivíduo denisovano em relação aos
africanos é compatível com um cenário em que os denisovanos
compartilhavam parte de sua história com os neandertais antes do fluxo
gênico dos neandertais para os humanos modernos.
Fluxo genético denisovano nos ancestrais dos melanésios
Embora
o indivíduo Denisova derive de uma população que não esteve diretamente
envolvida no fluxo gênico dos neandertais para os eurasianos, é
possível que os denisovanos tenham se misturado com os ancestrais dos
povos atuais em algumas partes do Velho Mundo. Para investigar isso,
analisamos a relação do genoma Denisova com os genomas de 938 humanos
atuais de 53 populações que foram genotipadas em 642.690 polimorfismos
de nucleotídeo único (SNPs). 35 .
Classificamos cada um desses humanos atuais com base em sua proximidade
relativa aos neandertais e ao indivíduo de Denisova em posições onde
temos dados de alta qualidade para os genomas neandertais e de Denisova (
seção 8 de Informações Suplementares ). Usando as médias das 53 populações, os dois primeiros componentes principais separam as populações em três grupos ( Fig. 2
): primeiro, as 7 populações da África Subsaariana; segundo, um grupo
de 44 populações não africanas, bem como um grupo do norte da África; e
terceiro, populações de Papua e Bougainville da Melanésia. Quando
indivíduos de populações selecionadas são analisados separadamente, os
ilhéus de Papua e Bougainville permanecem distintos de quase todos os
indivíduos fora da África ( Fig. 8.1b Suplementar
). Assim, com relação à sua relação com os neandertais e os
denisovanos, as populações da Melanésia se destacam em relação a outras
populações não africanas.
Figura 2:
Relação das populações atuais com o indivíduo Denisova e os neandertais com base em 255.077 SNPs.
Análise
de componentes principais das médias de 53 populações humanas atuais
projetadas sobre os dois principais componentes definidos por Denisova:
neandertais e chimpanzés. As sete populações "africanas" são San, Mbuti,
Biaka, Bantu do Quênia, Bantu da África do Sul, Iorubá e Mandenka; as
populações "não africanas" são 44 grupos diversos de fora da África,
exceto os papuas e os ilhéus de Bougainville.
Para
explorar isso mais a fundo, analisamos a relação do genoma de Denisova
com os genomas de cinco humanos atuais que sequenciamos anteriormente
para uma cobertura cerca de cinco vezes maior. 8 (um
genoma Yoruba e um San da África, um genoma Francês da Europa, um
genoma Han da China e um genoma Papua da Melanésia), bem como sete
humanos atuais que sequenciamos para uma cobertura de 1 a 2 vezes para
este estudo (um genoma Mbuti da África, um genoma Sardenho da Europa, um
genoma Mongol da Ásia Central, um genoma Cambojano do Sudeste Asiático,
um genoma Papua adicional da Melanésia, um genoma de um ilhéu de
Bougainville da Melanésia e um genoma Karitiana da América do Sul) ( seção 9 de Informações Suplementares ). Usamos a D estatística 8 para
testar se vários pares de humanos atuais compartilham números iguais de
alelos derivados com o indivíduo Denisova. Para fazer isso,
restringimos as comparações a pares de humanos atuais sequenciados ao
mesmo tempo para minimizar a chance de que diferenças no processamento
da amostra pudessem afetar os resultados. Descobrimos que o indivíduo
papua com cobertura quíntupla compartilha 4,0 ± 0,7% mais alelos com o
indivíduo Denisova do que o indivíduo francês, e observamos uma
assimetria semelhante em todas as 10 comparações de populações
melanésias e outras não africanas ( Tabela 1 ). Quando estratificamos os dados por classe de substituição de base e cromossomo, as estatísticas D permanecem qualitativamente inalteradas ( Seção 10 de Informações Suplementares ). Da mesma forma, as estatísticas D observadas ( D
são consistentes para todas as profundidades de cobertura de leitura,
indicando que erros de mapeamento, por exemplo, devido a duplicações
segmentares, provavelmente não explicam esses resultados. Finalmente,
diferenças na taxa de erro de sequenciamento entre amostras não podem
explicar as estatísticas Seção de Informações Suplementares 10).
Sob
a suposição de que o fluxo gênico explica essas observações,
determinamos a direção desse fluxo gênico perguntando se os melanésios e
outros eurasianos compartilham alelos derivados com os africanos com a
mesma frequência. Se o fluxo gênico fosse inteiramente para os
ancestrais do indivíduo denisovano, não esperaríamos que isso afetasse o
relacionamento dos africanos com os melanésios e outros eurasianos e,
portanto, esperaríamos que eles compartilhassem alelos derivados com a
mesma frequência com os africanos. No entanto, descobrimos que os alelos
derivados em africanos correspondem aos melanésios 3,4 ± 0,4% menos
frequentemente do que em outros não africanos ( Z = 10,8). Como
essa assimetria é observada sem o uso de dados denisovanos, ela não
pode ser explicada pelo fluxo gênico para os denisovanos ou, por
exemplo, pela contaminação da amostra denisovana pelo DNA melanésio
atual. Assim, pelo menos parte do suposto fluxo gênico deve ter sido
para os melanésios ( Informações Suplementares ). seção 8 de
Quando
comparamos a assimetria na fração de alelos derivados compartilhados
com os dois hominídeos arcaicos com o que seria esperado para indivíduos
de ascendência 100% Neandertal ou Denisova, respectivamente ( seção 8 de Informações Suplementares e ref. 8
), estimamos que 2,5 ± 0,6% dos genomas de populações não africanas
derivam de Neandertais, de acordo com nossa estimativa anterior de 1–4%.
8 Além
disso, estimamos que 4,8 ± 0,5% dos genomas dos melanésios derivam de
denisovanos. No total, até 7,4 ± 0,8% dos genomas dos melanésios podem,
portanto, derivar de uma mistura recente com hominídeos arcaicos.
Um modelo de história populacional
Para
entender as implicações das relações observadas entre o indivíduo
Denisova, os neandertais e os humanos atuais, ajustamos as estatísticas D descritas nas seções anteriores a um modelo parametrizado de história populacional. As estatísticas D
para o indivíduo Denisova diferem em dois aspectos importantes daquelas
para o neandertal. Primeiro, o indivíduo Denisova compartilha menos
alelos derivados com as populações francesa ou chinesa han do que os
neandertais. Segundo, o indivíduo Denisova compartilha mais alelos
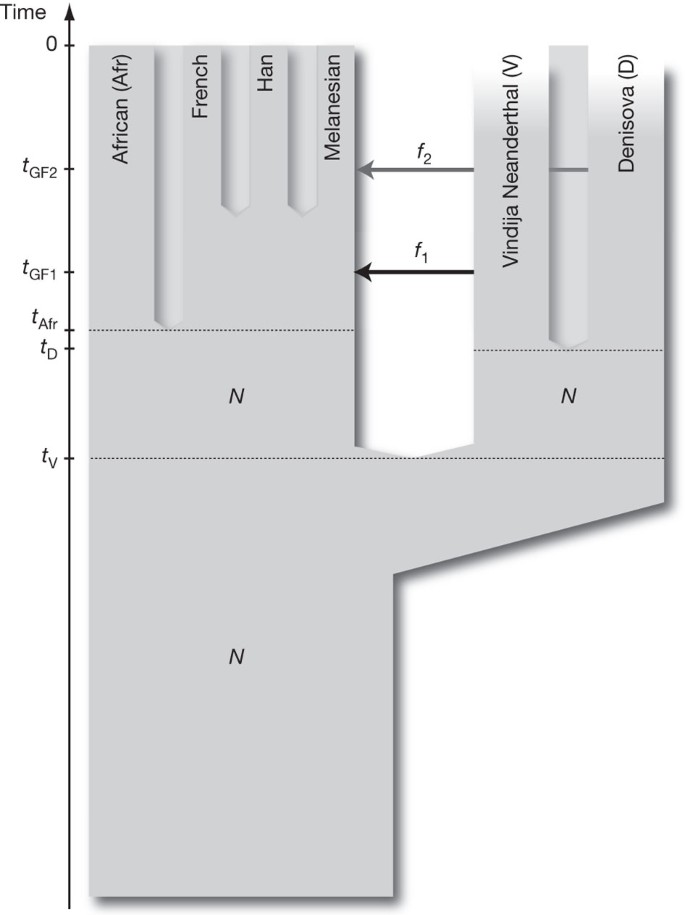
derivados com os papuas do que os neandertais. Somos capazes de ajustar
os dados com um modelo que assume que os denisovanos são um grupo irmão
dos neandertais com um tempo de divergência populacional de metade a
dois terços do tempo para o ancestral comum dos neandertais e humanos.
Após a divergência dos denisovanos dos neandertais, houve fluxo gênico
dos neandertais para os ancestrais de todos os não africanos atuais.
Mais tarde, houve uma miscigenação entre os denisovanos e os ancestrais
dos melanésios que não afetou outras populações não africanas. Este
modelo é ilustrado em Fig. 3 e é descrito em detalhes na seção 11 de Informações Suplementares .
Figura 3:
Um modelo de história populacional compatível com os dados.
N denotes effective population size, t denotes time of population separation, f denotes amount of gene flow and tGF denotes time of gene flow.
Outros
modelos mais complexos também poderiam explicar os dados. Por exemplo,
um modelo que invoca apenas o fluxo gênico de Denisovanos para
ancestrais Melanésios fora da África e assume quatro subpopulações na
África que existiram entre os tempos da origem dos ancestrais
Denisovanos e Neandertais e os ancestrais dos atuais Eurasianos também
poderia se ajustar aos dados ( Fig. Suplementar 11.4
). No entanto, como as barreiras ao fluxo gênico entre tais
subpopulações teriam que persistir por centenas de milhares de anos para
criar os padrões observados, tal modelo é menos plausível em termos
biológicos do que um modelo que invoca duas instâncias de fluxo gênico
fora da África.
Discordância entre o mtDNA e as histórias nucleares
A
história populacional indicada pelo genoma nuclear é diferente daquela
indicada pela filogenia do mtDNA. Há duas explicações possíveis para
isso. Uma é que a linhagem do mtDNA foi introduzida em ancestrais
denisovanos por mistura de outra linhagem de hominídeos para a qual não
temos dados. A outra é que a discordância é o resultado de
"classificação de linhagem incompleta", isto é, a distribuição aleatória
de linhagens genéticas devido à deriva genética, que pode ter permitido
que uma linhagem divergente de mtDNA sobrevivesse em denisovanos por
acaso, enquanto se perdia em neandertais e humanos modernos. Um grande
tamanho populacional ancestral torna a classificação de linhagem
incompleta mais provável de ocorrer. Na seção 11 de Informações Suplementares
, mostramos que, dadas suposições razoáveis sobre o tamanho das
populações ancestrais, a discordância da filogenia do mtDNA com aquela
indicada pelo DNA nuclear pode ser explicada por uma pequena quantidade
de mistura de outro hominídeo arcaico ou por classificação de linhagem
incompleta. Assim, os dados não nos permitem favorecer uma hipótese em
detrimento da outra.
Um dente da Caverna Denisova
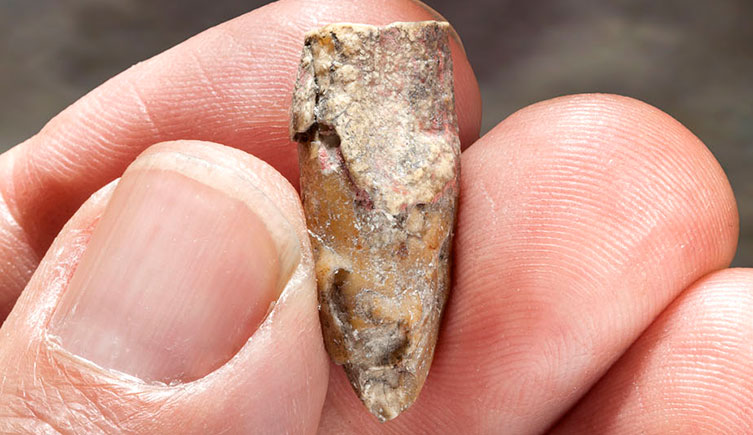
Em 2000, um dente de hominídeo foi descoberto na camada 11.1 da galeria sul da Caverna Denisova ( Fig. 4a, b ). O dente é de um adulto jovem e, portanto, de um indivíduo diferente da falange, que se origina de um juvenil ( Informações Suplementares,
seção 12). Para elucidar a relação do dente com o indivíduo do qual a
falange é derivada, extraímos DNA de 50 mg de dentina da raiz do dente e
preparamos uma biblioteca de sequenciamento ( Informações Suplementares,
seção 13). Cerca de 0,17% das sequências aleatórias de DNA determinadas
a partir dessa biblioteca se alinharam ao genoma humano, enquanto o
restante provavelmente representa contaminação microbiana comum em ossos
antigos. Portanto, utilizamos uma nova abordagem de captura de DNA. 36 para
isolar sequências de mtDNA da biblioteca de sequenciamento. Um total de
15.094 sequências foram identificadas, o que permitiu a montagem do
genoma completo do mtDNA com uma cobertura média de 58 vezes. Essa
sequência difere em duas posições do mtDNA da falange, enquanto difere
em cerca de 380 posições tanto do Neandertal quanto dos humanos atuais. O
tempo desde o ancestral comum mais recente dos dois mtDNAs da Caverna
Denisova é estimado em 7.500 anos, com um limite superior de 95% de
16.000 anos ( seção 13 de Informações Suplementares ). Concluímos que o dente e a falange derivam de dois indivíduos diferentes, provavelmente da mesma população de hominídeos.
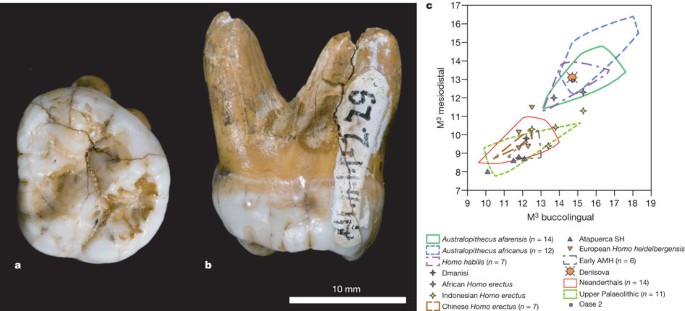
Figura 4:
Morfologia do molar de Denisova.
a, b, Occlusal (a) and mesial (b) views. c,
Comparison of the Denisova molar to diverse third molars, in a biplot
of the mesiodistal and buccolingual lengths (in mm). AMH, anatomically
modern humans; SH, Sima de los Huesos. Supplementary Fig. 12.1 presents a similar comparison to second molars.
O dente é um molar superior esquerdo quase completo, provavelmente o terceiro, mas possivelmente o segundo ( Fig. 4b
). A coroa é trapezoidal e afunila-se fortemente distalmente, com
paredes linguais e vestibulares protuberantes, dando ao dente uma
aparência inflada ( Informações Suplementares , seção 12). As raízes são curtas, porém robustas e fortemente alargadas.
No
geral, o dente é muito grande (diâmetro mesiodistal, 13,1 mm;
bucolingual, 14,7 mm). Como um terceiro molar, está fora da faixa de
variação normal de tamanho de todos os táxons fósseis do gênero Homo , com exceção de H. habilis e H. rudolfensis , e comparável aos Australopitecos ( Fig. 4c ). Comparado aos segundos molares, é maior do que os neandertais ou os primeiros humanos modernos, mas semelhante a H. erectus e H. habilis ( Fig. 12.1 suplementar ).
Além
do tamanho, também se distingue da maioria dos terceiros molares
neandertais pela ausência de redução do hipocone, e dos segundos e
terceiros molares neandertais pela presença de uma grande bacia em garra
e pelo forte alargamento da coroa. Além disso, não possui a projeção
lingual do hipocone observada em todos os primeiros e muitos segundos
molares neandertais, e possui raízes fortemente divergentes, ao
contrário das raízes pouco espaçadas e frequentemente fundidas dos
neandertais.
É de particular interesse comparar o molar de Denisova com os hominídeos do Pleistoceno Médio da China, onde o H. erectus e outras formas arcaicas, às vezes interpretadas como H. heidelbergensis
, podem ter sobrevivido até recentemente. Infelizmente, muito poucos
desses fósseis preservam terceiros molares superiores. Dos poucos
exemplos disponíveis, a maioria difere do molar de Denisova por seu
tamanho fortemente reduzido. Os segundos molares são mais frequentes do
que os terceiros molares, e a maioria tem formato trapezoidal como o de
Denisova, mas não têm a posição lingualmente inclinada do hipocone e do
metacone e o forte alargamento basal da coroa.
O molar de
Denisova corrobora a evidência de DNA de que a população de Denisova é
distinta dos neandertais tardios, bem como dos humanos modernos. De
fato, as características primitivas do dente de Denisova sugerem que os
denisovanos podem ter sido separados da linhagem neandertal antes que
características dentais neandertais fossem documentadas na Eurásia
Ocidental (> 300.000 anos a.C. ) ( Informações Suplementares, seção 12), embora não possamos excluir a possibilidade de que a morfologia dentária de Denisova resulte de uma reversão.
Estratigrafia e datação
O
pequeno tamanho tanto da falange quanto do dente impede a datação
direta por radiocarbono. Em vez disso, datamos sete fragmentos ósseos
encontrados próximos aos restos mortais de hominídeos na camada 11 nas
galerias leste e sul. Para garantir que estivessem associados à ocupação
humana da caverna, escolhemos ossos que apresentam evidências de
modificação humana, incluindo uma costela com incisões regulares e um
projétil ósseo à queima-roupa, geralmente associado a conjuntos
culturais do Paleolítico Superior. Na galeria sul, onde ossos
modificados não estavam disponíveis, utilizamos ossos de herbívoros ( Informações Suplementares ). seção 12 de
Quatro das sete datas são infinitas, com mais de 50.000 anos AP (não calibradas), enquanto três são finitas, entre 16.000 e 30.000 anos AP ( Tabela Suplementar 12.1 ). A costela com incisões e o projétil à queima-roupa têm cerca de 30.000 e 23.000 anos AP , respectivamente. Juntamente com três datas anteriores 23 Isso demonstra que a camada 11 contém vestígios culturais de pelo menos dois períodos diferentes: um com mais de 50.000 anos a.C.
e outro mais recente. No entanto, a estratigrafia é complicada pela
descoberta de uma área em forma de cunha próxima à área onde a falange
foi encontrada, que provavelmente está perturbada ( Informações Suplementares
, seção 12). Restos de hominídeos grandes o suficiente para permitir
datações diretas por radiocarbono podem eventualmente ser descobertos na
caverna, mas uma hipótese razoável é que a falange e o molar pertençam à
ocupação mais antiga.
Discussion
A
preservação molecular da falange de Denisova é excepcional, pois a
fração de DNA endógeno em relação ao microbiano é de cerca de 70%. Em
contraste, em todos os restos mortais de Neandertais estudados até o
momento, a abundância relativa de DNA endógeno é inferior a 5%, e
tipicamente inferior a 1%. Além disso, o comprimento médio dos
fragmentos de DNA de hominídeos na falange de Denisova é de 58 pares de
bases (pb) (SL3003) e 74 pb (SL3004), apesar do tratamento enzimático
que remove resíduos de uracila e diminui o tamanho médio do fragmento,
enquanto na maioria das amostras de Neandertais bem preservadas, o
tamanho é de 50 pb ou menos sem esse tratamento. Assim, embora muitos
Neandertais sejam preservados em condições aparentemente semelhantes às
da Caverna de Denisova, a falange de Denisova é um dos poucos ossos
encontrados em condições temperadas que estão tão bem preservados quanto
muitos restos de permafrost. 37 , 38 Não
está claro o porquê. Não se deve a alguma condição que afeta todos os
restos mortais de hominídeos na Caverna Denisova, pois a fração de DNA
endógeno no dente é de 0,17%; ou seja, típica de outros restos mortais
de hominídeos do Pleistoceno Superior. É possível que uma rápida
dessecação do tecido após a morte, que limitaria a degradação do DNA por
enzimas endógenas, bem como o crescimento microbiano, tenha permitido
essa preservação excepcional.
O indivíduo Denisova e a população à
qual pertencia carregam algumas características moleculares (mtDNA),
bem como morfológicas (dentais) excepcionalmente arcaicas. No entanto, o
quadro que emerge da análise do genoma nuclear é aquele em que a
população Denisova é um grupo irmão dos Neandertais. Três possibilidades
poderiam explicar como tais características arcaicas passaram a estar
presentes nos Denisovanos. Uma possibilidade é que essas características
tenham sido mantidas nos Denisovanos, mas se perderam nos humanos
modernos e nos Neandertais. Uma segunda possibilidade, não mutuamente
exclusiva, é que elas entraram na população Denisova através do fluxo
gênico de algum hominíneo ainda mais divergente. Embora tal fluxo gênico
não possa ser detectado com os dados atuais de mtDNA e DNA nuclear, o
sequenciamento posterior de outros restos de hominíneos pode, no futuro,
permitir testes para sua detecção. Uma terceira possibilidade que
poderia explicar a morfologia dentária aparentemente arcaica, mas não o
mtDNA, é uma reversão para características ancestrais.
Após a
divergência entre si, denisovanos e neandertais tiveram histórias
populacionais amplamente distintas, como demonstrado por diversas
observações. Primeiro, os padrões de compartilhamento de alelos indicam
que os ancestrais denisovanos não contribuíram com genes em um nível
detectável para os povos atuais em toda a Eurásia, enquanto os
neandertais o fizeram. 8 Assim,
os neandertais, em algum momento, interagiram com ancestrais dos atuais
eurasianos, independentemente dos denisovanos. Em segundo lugar, a
diversidade genética dos neandertais em toda a sua distribuição
geográfica nos últimos trinta ou quarenta mil anos de sua história foi
extremamente baixa, indicando que eles experimentaram um ou mais
gargalos genéticos fortes, independentemente dos denisovanos. Em
terceiro lugar, nossos resultados indicam que os denisovanos, mas não os
neandertais, contribuíram com genes para os ancestrais dos atuais
melanésios. Em quarto lugar, a morfologia dentária não mostra evidências
de quaisquer características derivadas observadas em neandertais. De
fato, restos dentários da Sima de los Huesos de Atapuerca, para os quais
foram propostas idades entre 350.000 e 600.000 anos 39 , 40 , já apresentam características morfológicas semelhantes às do Neandertal que não são vistas no molar de Denisova.
Uma
questão interessante é quão difundidos eram os denisovanos. Uma
possibilidade é que eles viveram em grandes partes do leste da Ásia na
época em que os neandertais estavam presentes na Europa e na Ásia
ocidental. Uma observação compatível com essa possibilidade é que
parentes denisovanos parecem ter contribuído com genes para os atuais
melanésios, mas não para as populações atuais que atualmente vivem muito
mais perto da região de Altai, como os chineses han ou os mongóis ( Tabela 1
). Assim, eles pelo menos em algum momento estiveram presentes em uma
área onde interagiram com os ancestrais dos melanésios e isso
presumivelmente não foi no sul da Sibéria. Estudos adicionais de
características moleculares e morfológicas de restos de hominídeos pela
Ásia devem esclarecer quão difundidos eram os denisovanos e como eles
estavam relacionados a hominídeos arcaicos que não os neandertais.
O
indivíduo Denisova pertence a um grupo de hominídeos que compartilha um
ancestral comum com os neandertais, mas possui uma história
populacional distinta. Definimos esse grupo com base em evidências
genômicas e o chamamos de Denisovanos, mas nos abstemos de quaisquer
designações taxonômicas lineanas formais que indiquem o status de
espécie ou subespécie para neandertais ou denisovanos. Em nossa opinião,
esses resultados mostram que, no continente eurasiano, existiam pelo
menos duas formas de hominídeos arcaicos no Pleistoceno Superior: uma
forma eurasiana ocidental com características morfológicas comumente
usadas para defini-los como neandertais, e uma forma oriental à qual os
indivíduos Denisova pertencem. No futuro, quando genomas mais completos
desses e de outros hominídeos arcaicos forem sequenciados a partir de
restos mortais que permitam a avaliação de mais características
morfológicas, suas relações serão ainda mais bem compreendidas. Este
será um esforço importante, visto que o quadro emergente da evolução dos
hominídeos do Pleistoceno Superior é aquele em que o fluxo gênico entre
diferentes grupos de hominídeos era comum.
Os dados de sequência bruta dos dois fósseis de
Denisova, dos sete humanos atuais e do mtDNA do dente foram depositados
no Arquivo Europeu de Nucleotídeos do EMBL-EBI sob os números de acesso ERP000318 , ERP000121 e FR695060
, respectivamente. Os alinhamentos das leituras de sequência de
Denisova com os genomas humano e de chimpanzé estão disponíveis para
navegação e download em http://genome.ucsc.edu/Denisova .
Referências
Hublin, JJ A origem dos Neandertais. Processo. Acad. Nacional. Ciência. EUA 106 , 16022–16027 (2009)
Lalueza-Fox, C. et al. DNA mitocondrial de um neandertal ibérico sugere afinidade populacional com outros neandertais europeus. Curr. Biol. 16 , R629–R630 (2006)
Endicott,
P., Ho, S. Y. & Stringer, C. Using genetic evidence to evaluate
four palaeoanthropological hypotheses for the timing of Neanderthal and
modern human origins. J. Hum. Evol.59, 87–95 (2010)
Meyer,
M. & Kircher, M. Preparação da biblioteca de sequenciamento
Illumina para captura e sequenciamento de alvos altamente multiplexados.
Cold Spring Harb. Protoc. 2010. 10.1101/pdb.prot5448 (2010)
Briggs, AW et al. Padrões de danos em sequências de DNA genômico de um neandertal. Proc. Natl Acad. Sci. USA 104 , 14616–14621 (2007)
Kircher,
M., Stenzel, U. e Kelso, J. Melhoria na chamada de bases para o
Analisador de Genoma Illumina usando estratégias de aprendizado de
máquina. Genome Biol. 10 , R83 (2009)
Reich,
D. et al. Reduced neutrophil count in people of African descent is due
to a regulatory variant in the Duffy antigen receptor for chemokines
gene. PLoS Genet.5, e1000360 (2009)
Keinan,
A., Mullikin, JC, Patterson, N. & Reich, D. A medição do espectro
de frequência dos alelos humanos demonstra maior deriva genética em
asiáticos orientais do que em europeus. Nature Genet. 39 , 1251–1255 (2007)
Maricic,
T., Whitten, M. & Pääbo, S. Captura multiplexada de sequências de
DNA de genomas mitocondriais usando produtos de PCR. PLoS ONE 5 , e14004 (2010)
Bischoff, JL et al. Datações de alta resolução da série U dos hominídeos de Sima de los Huesos rendem 600 +∞ −66 mil anos: Implicações para a Evolução da Linhagem Neandertal Primitiva. J. Archaeol. Sci. 34 , 763–770 (2007)
Bischoff,
JL et al. Os hominídeos de Sima de los Huesos datam de além do
equilíbrio U/Th (>350 mil anos-luz) e talvez de 400 a 500 mil
anos-luz: Novas datações radiométricas. J. Archaeol. Sci. 30 , 275–280 (2003)
Agradecemos
a C. Bustamante, AI Krivoshapkin, M. Lachmann, R. Nielsen, K. Pruefer,
A. Tsybankov, L. Vigilant e W. Zhai pelos comentários; a K. Finstermeier
pelo trabalho gráfico; ao grupo de sequenciamento MPI-EVA, R. Schultz e
S. Weihnachtsmann pelo suporte técnico; e a P. Fujita, A. Hinrichs e K.
Learned pelo desenvolvimento do portal do navegador genômico da UCSC
para os dados de Denisova. O Fundo Presidencial de Inovação da Sociedade
Max Planck e a Fundação Krekeler forneceram apoio financeiro. MS foi
apoiado por uma bolsa dos Institutos Nacionais de Saúde dos EUA
(R01-GM40282). A Fundação Nacional de Ciências concedeu uma Bolsa
Internacional de Pós-Doutorado (OISE-0754461) a JMG, uma Bolsa em
Informática Biológica a PLFJ e uma bolsa HOMINID (1032255) a DR.
Informações do autor
Notas do autor
David
Reich, Richard E. Green, Martin Kircher, Johannes Krause, Nick
Patterson, Eric Y. Durand e Bence Viola: Esses autores contribuíram
igualmente para este trabalho.
Authors and Affiliations
Department of Genetics, Harvard Medical School, Boston, 02115, Massachusetts, USA
David Reich, Adrian W. Briggs & Swapan Mallick
Broad Institute of MIT and Harvard, Cambridge, 02142, Massachusetts, USA
David Reich, Nick Patterson, Swapan Mallick & Heng Li
Department of Evolutionary Genetics, Max Planck Institute for Evolutionary Anthropology, Leipzig 04103, Germany,
Richard
E. Green, Martin Kircher, Johannes Krause, Bence Viola, Adrian W.
Briggs, Udo Stenzel, Tomislav Maricic, Qiaomei Fu, Matthias Meyer, Mark
Stoneking, Janet Kelso & Svante Pääbo
Departamento de Engenharia Biomolecular, Universidade da Califórnia, Santa Cruz 95064, EUA,
Richard E. Green
Instituto de Arqueologia Científica, Universidade de Tübingen, Tübingen 72070, Alemanha,
Johannes Krause
Departamento de Biologia Integrativa, Universidade da Califórnia, Berkeley, 94720, Califórnia, EUA
Eric Y. Durand e Montgomery Slatkin
Departamento de Evolução Humana, Instituto Max Planck de Antropologia Evolutiva, Leipzig 04103, Alemanha,
Bence Viola, Michael Richards, Sahra Talamo e Jean-Jacques Hublin
Departamento de Biologia, Universidade Emory, Atlanta, 30322, Geórgia, EUA
Philip LF Johnson
Divisão de Ciências Biológicas, Universidade de Montana, Missoula, 59812, Montana, EUA
Jeffrey M. Good
Departamento de Ciências do Genoma, Instituto Médico Howard Hughes, Universidade de Washington, Seattle, 98195, Washington, EUA
Tomas Marques-Bonet, Can Alkan e Evan E. Eichler
Instituto de Biologia Evolutiva (UPF-CSIC), 08003 Barcelona, Espanha
Tomas Marques-Bonet
CAS-MPS
Joint Laboratory for Human Evolution and Archeometry, Institute of
Vertebrate Paleontology and Paleoanthropology of Chinese Academy of
Sciences, Beijing, 100044, China
Qiaomei Fu
Department of Anthropology, University of British Columbia, Vancouver, British Columbia V6T 1Z1, Canada,
Michael Richards
Palaeolithic
Department, Institute of Archaeology & Ethnography, Russian Academy
of Sciences, Siberian Branch, Novosibirsk 630090, Russia,
Michael V. Shunkov e Anatoli P. Derevianko
Contribuições
J.Kr.,
TM, QF e MM realizaram os experimentos; DR, REG, MK, J.Kr., NP, EYD,
AWB, US, PLFJ, TM, JMG, TB-M., CA, SM, HL, EEE, M.St., J.Ke., M.Sl. e SP
analisaram dados genéticos; BV, MR, ST, MVS, APD e J.-JH analisaram
dados arqueológicos e antropológicos; DR e SP escreveram e editaram o
manuscrito.
Este
arquivo contém 13 seções de Informações Suplementares (consulte o
Índice), que incluem Dados Suplementares, Figuras Suplementares, Tabelas
Suplementares e referências adicionais. Para Dados Suplementares 1,
acesse o seguinte link para acessar este arquivo: http://bioinf.eva.mpg.de/download/DenisovaGenome/Denisova_Neandertal_catalog.tgz (PDF 4630 kb)
This
spreadsheet describes the 13 regions of potential admixture from
Neandertals into modern humans as described in Green et al., Science
328:710 (2010). (XLS 60 kb)
Este artigo é distribuído sob os termos da licença
Creative Commons Atribuição-Uso Não Comercial-Compartilhamento pela
mesma Licença ( http://creativecommons.org/licenses/by-nc-sa/3.0/
), que permite a distribuição e reprodução em qualquer meio, desde que o
autor e a fonte originais sejam creditados. Esta licença não permite a
exploração comercial, e trabalhos derivados devem ser licenciados sob a
mesma licença ou uma licença similar.
Reich, D., Green, R., Kircher, M. et al. História genética de um grupo arcaico de hominídeos da Caverna Denisova na Sibéria.
Natureza 468 , 1053–1060 (2010). https://doi.org/10.1038/nature09710