Mostrando postagens com marcador migrações humanas. Mostrar todas as postagens

sexta-feira, 5 de setembro de 2025


Os ancestrais humanos desafiaram as terras do norte da Inglaterra cobertas de gelo há 440.000 anos

Como exatamente os antigos fabricantes de ferramentas sobreviveram às condições adversas permanece um mistério

  • 1 de setembro de 2025
  • 11h00 horário do leste dos EUA
  • Por Colin Barras
Nove bifaces acheulianos
Pesquisadores encontraram ferramentas de pedra e machados de mão semelhantes aos da indústria acheuliana — exemplos dos quais são mostrados aqui — em um sítio arqueológico nos arredores de Londres. Heritage Image Partnership Ltd/Alamy Stock Photo

Há cerca de 480.000 anos, o mundo estava congelado. Grande parte do que hoje são as Ilhas Britânicas estava soterrada por gelo espesso. Pesquisadores há muito presumiam que até mesmo o solo sem gelo seria inabitável. Mas ferramentas de pedra descobertas à beira de um rio perto de Londres e descritas hoje na Nature Ecology & Evolution sugerem que os hominídeos ocupavam, pelo menos intermitentemente, essa paisagem gélida, embora a caça fosse escassa e os antigos europeus talvez ainda não dominassem o fogo.

Os arqueólogos estão perplexos. "A presença de hominídeos em condições de frio levanta questões importantes sobre como eles sobreviveram", diz Rob Hosfield, arqueólogo da Universidade de Reading que não participou do trabalho.

Os humanos antigos, possivelmente um ancestral antigo dos humanos modernos chamado Homo antecessor , se mudaram para o norte da Europa há cerca de 1 milhão de anos, deixando evidências raras, mas impressionantes de sua presença, incluindo uma coleção de pegadas de 850.000 a 950.000 anos descobertas em uma praia na costa sudeste da Inglaterra em 2013.

Na década de 1920, arqueólogos descobriram mais de 300 machados de mão antigos ali, mas datar as ferramentas com precisão não era possível com os métodos da época. Novas escavações realizadas por uma equipe internacional revelaram ferramentas de pedra adicionais e as dataram usando uma técnica chamada radiofluorescência infravermelha, que pode determinar quanto tempo se passou desde que os sedimentos foram soterrados.

Os resultados confirmam que, já há 773.000 anos, humanos antigos estavam presentes no local, onde fabricaram algumas das primeiras ferramentas acheulianas — machados de mão e outros implementos com um perfil bifacial distinto — ainda não encontradas no norte da Europa. Naquela época, Old Park parece ter sido abandonado, possivelmente em resposta ao resfriamento do clima. Mas, há cerca de 440.000 anos, as datações dos sedimentos sugerem que os humanos reapareceram. Nessa época, o H. antecessor havia desaparecido, e a Europa abrigava outros humanos, incluindo o Homo heidelbergensis , frequentemente considerado um ancestral dos neandertais, dos denisovanos e dos humanos modernos.

Anúncio

Este período posterior de atividade humana em Old Park ocorre durante uma onda de frio extremo conhecida como fase glacial Angliana. Espessas camadas de gelo estariam presentes a apenas 65 quilômetros ao norte. Talvez, especulam os pesquisadores que trabalham no sítio, as pessoas viajassem para o local apenas no verão e se retirassem para o sul no inverno. Mas Marie-Hélène Moncel, arqueóloga do Museu Nacional de História Natural de Paris, acha esse cenário difícil de acreditar. "Se imaginarmos um grupo humano vindo no verão, perto da frente glacial, onde poucos animais poderiam viver, é um pouco estranho", diz ela.

Em vez disso, ela afirma que é mais provável que humanos antigos tenham ocupado o local durante um período "interestadial" dentro da glaciação angliana, quando as condições aqueceram ligeiramente e o gelo recuou. Mesmo assim, o ambiente teria sido extremo: fragmentos microscópicos de plantas recuperados do local sugerem que se tratava de uma pradaria fria com poucas árvores, semelhante à atual estepe eurasiana, logo ao sul das florestas boreais da Sibéria.

Essas visitas provavelmente foram testes extenuantes de sobrevivência, diz Hosfield. "Que abrigos naturais estavam disponíveis em uma paisagem fria e aberta? Que fontes de combustível haveria?"

É possível, ele especula, que os humanos antigos queimassem esterco de animais ou mesmo ossos para se aquecer. Mas não está claro se esses fabricantes de ferramentas aprenderam a controlar o fogo. "As primeiras evidências de fogo no norte da Europa só aparecem por volta de 300.000 a 400.000 anos atrás", observa Tomos Proffitt, arqueólogo da Universidade do Algarve e membro da equipe de pesquisa.

Por enquanto, as ferramentas e técnicas que esses antigos viajantes usaram para sobreviver no norte gélido permanecem um mistério. Mas seu feito "desafia o status quo vigente" do pensamento arqueológico, diz Proffitt. "Encontrar evidências da presença humana [nas Ilhas Britânicas] durante esse período é genuinamente surpreendente."


terça-feira, 17 de dezembro de 2024

Translator


As pessoas não são ervilhas – por que a educação genética precisa de uma revisão

As décadas de genética desatualizada ensinada na maioria das escolas dos EUA alimentam conceitos errados sobre raça e diversidade humana. Um antropólogo biológico clama por mudança.
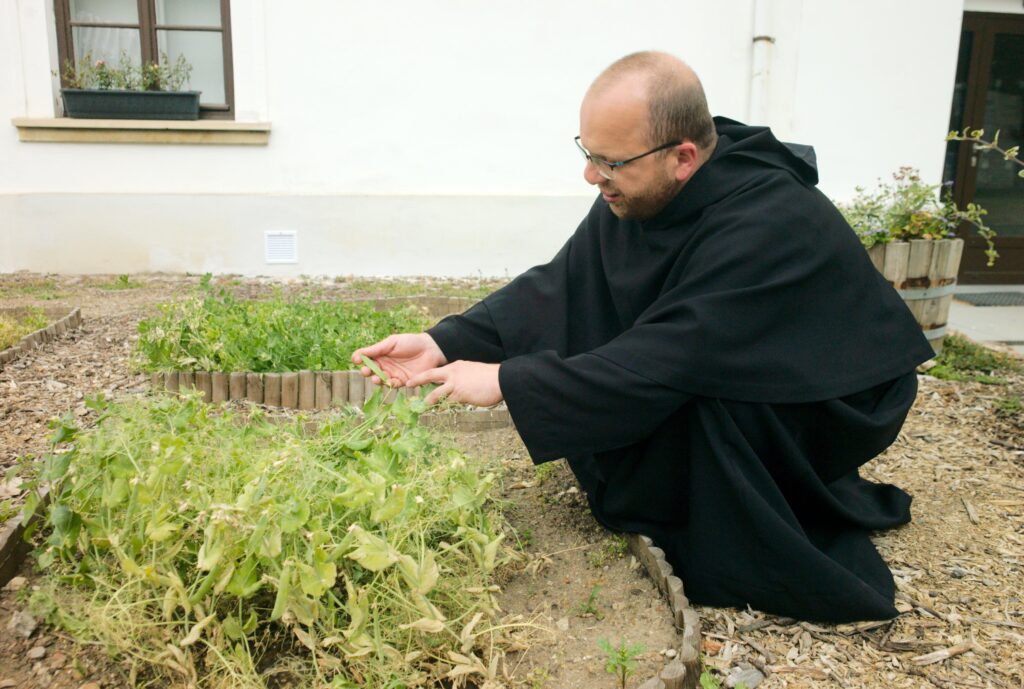
Uma pessoa vestindo uma túnica preta se agacha ao lado de um prédio branco para cuidar de um canteiro de ervilhas.

Os currículos de genética ainda se concentram frequentemente nas experiências de hereditariedade do padre austríaco do século XIX, Gregor Johann Mendel, com plantas de ervilha. O padre Jozef Rzonca está agachado no jardim onde Mendel conduziu sua famosa pesquisa.

Michael Heitmann/aliança de imagens/Getty Images

✽

Em uma longa viagem de ônibus no início da década de 1970, o geneticista Richard Lewontin, da Universidade de Chicago , passou o tempo fazendo algumas contas novas.

Lewontin geralmente ficava no laboratório, estudando proteínas derivadas de moscas-das-frutas moídas. Como o DNA codifica proteínas, esta pesquisa abordou uma questão fundamental: até que ponto os indivíduos da mesma espécie variam geneticamente?

No ônibus, Lewontin voltou sua atenção para os humanos. Usando os dados disponíveis, ele calculou como as diferenças de proteínas eram mapeadas entre as pessoas ao redor do mundo. Ao contrário do que os cientistas presumiam na altura, ele descobriu que a maioria das diferenças existia em todas as populações – o que significa que a variação genética subjacente era partilhada por toda a humanidade, e não classificada por região geográfica ou categorias “raciais” predominantes.

Lewontin publicou os seus cálculos num breve artigo em 1972 que terminou com esta conclusão definitiva: “Uma vez que… a classificação racial é agora considerada como praticamente sem significado genético ou taxonómico, não pode ser apresentada qualquer justificação para a sua continuação.” Seus resultados foram replicados repetidas vezes ao longo dos últimos 50 anos, à medida que os conjuntos de dados aumentaram de um punhado de proteínas para centenas de milhares de genomas humanos.

But despite huge strides in genetics research—leaving no doubt about the validity of Lewontin’s conclusions—genetics curricula taught in U.S. secondary and post-secondary schools still largely reflect a pre-1970s view.

Este atraso nos currículos é mais do que uma preocupação para aqueles que estão na torre de marfim. Cada vez mais, a genómica desempenha um papel de liderança nos cuidados de saúde, na justiça criminal e no nosso sentido de identidade e ligação com os outros. Ao mesmo tempo, o racismo científico está a aumentar, atingindo mais pessoas do que nunca graças às redes sociais . A educação desatualizada não consegue dissipar esta desinformação.

Da genética básica ensinada nas escolas de ensino fundamental e médio aos cursos universitários, os currículos de biologia precisam desesperadamente de uma revisão.

COMO O DNA DIFERE

Sou um antropólogo biológico que usa dados genômicos para responder perguntas sobre a evolução dos primatas e dos seres humanos. Quando comecei os meus estudos de doutoramento, há uma década, ficámos a saber do artigo de Lewontin pelo seu significado histórico, mas as suas descobertas eram notícias antigas.

Antes de seus cálculos, muitos cientistas esperavam encontrar diferenças genéticas substanciais entre pessoas de diferentes regiões geográficas ou raças. Digamos que os povos indígenas na África carregariam o marcador A, mas todos os povos indígenas nas Américas teriam o marcador C.

Numa palestra de 2004, o geneticista evolucionista Richard Lewontin explica como quase toda a variação genética humana está contida entre indivíduos de qualquer população local. Ele também enfatiza que as migrações, invasões e misturas entre pessoas ao longo da história humana impediram fronteiras “raciais” claras.

Televisão da Universidade da Califórnia

Lewontin encontrou um resultado bastante diferente: a grande maioria (mais de 85%) das diferenças genéticas existia entre indivíduos da mesma região geográfica. Isso equivale a alguns povos indígenas na África e alguns povos indígenas nas Américas carregando a letra A do DNA (base molecular), enquanto outros africanos e povos indígenas nas Américas carregam a letra C. A maior parte da variação genética humana é compartilhada por todos os continentes – ou os grupos raciais inventados durante e desde a expansão colonial europeia.

Cálculos equivalentes feitos ao longo das últimas duas décadas – com base em dados do genoma de milhares de indivíduos – chegaram à mesma conclusão : existe uma elevada variação genética dentro das regiões geográficas e pouca variação distingue as regiões geográficas.

As variantes genéticas mais comuns, ou seja, transportadas por mais de 5% dos humanos, aparecem em todos os continentes. Apenas uma pequena parte destas variantes é encontrada exclusivamente num continente, e essas variantes específicas do continente tendem a ser raras entre os membros de uma população onde são encontradas.

INFORMAÇÕES GENÔMICAS

Além dos genomas de humanos vivos, o DNA extraído de humanos antigos nas últimas duas décadas revelou insights incríveis. Ao longo do tempo, os humanos do passado migraram frequentemente , acasalaram-se ou deslocaram pessoas que encontraram noutras regiões – resultando numa árvore emaranhada de ascendência humana. Os antigos resultados do DNA refutam qualquer noção de raízes profundas e separadas para humanos em diferentes regiões geográficas.

Além disso, os investigadores contemporâneos compreendem melhor como a variação do ADN contribui para as diferenças nas características humanas . Os cientistas sabem agora que a maioria dos nossos atributos biológicos são influenciados por muitas variantes genéticas e os seus efeitos variam em resposta a diversos fatores ambientais. Por exemplo, milhares de variantes genéticas influenciam a altura e o seu efeito é modificado pela nutrição infantil e pelas infecções.

Quanto à raça, os investigadores demonstraram conclusivamente que as categorias raciais históricas não se baseiam em nenhum aspecto inerente à nossa biologia. Mas isso não significa que estas categorias raciais e a biologia não afetem as experiências vividas pelas pessoas.

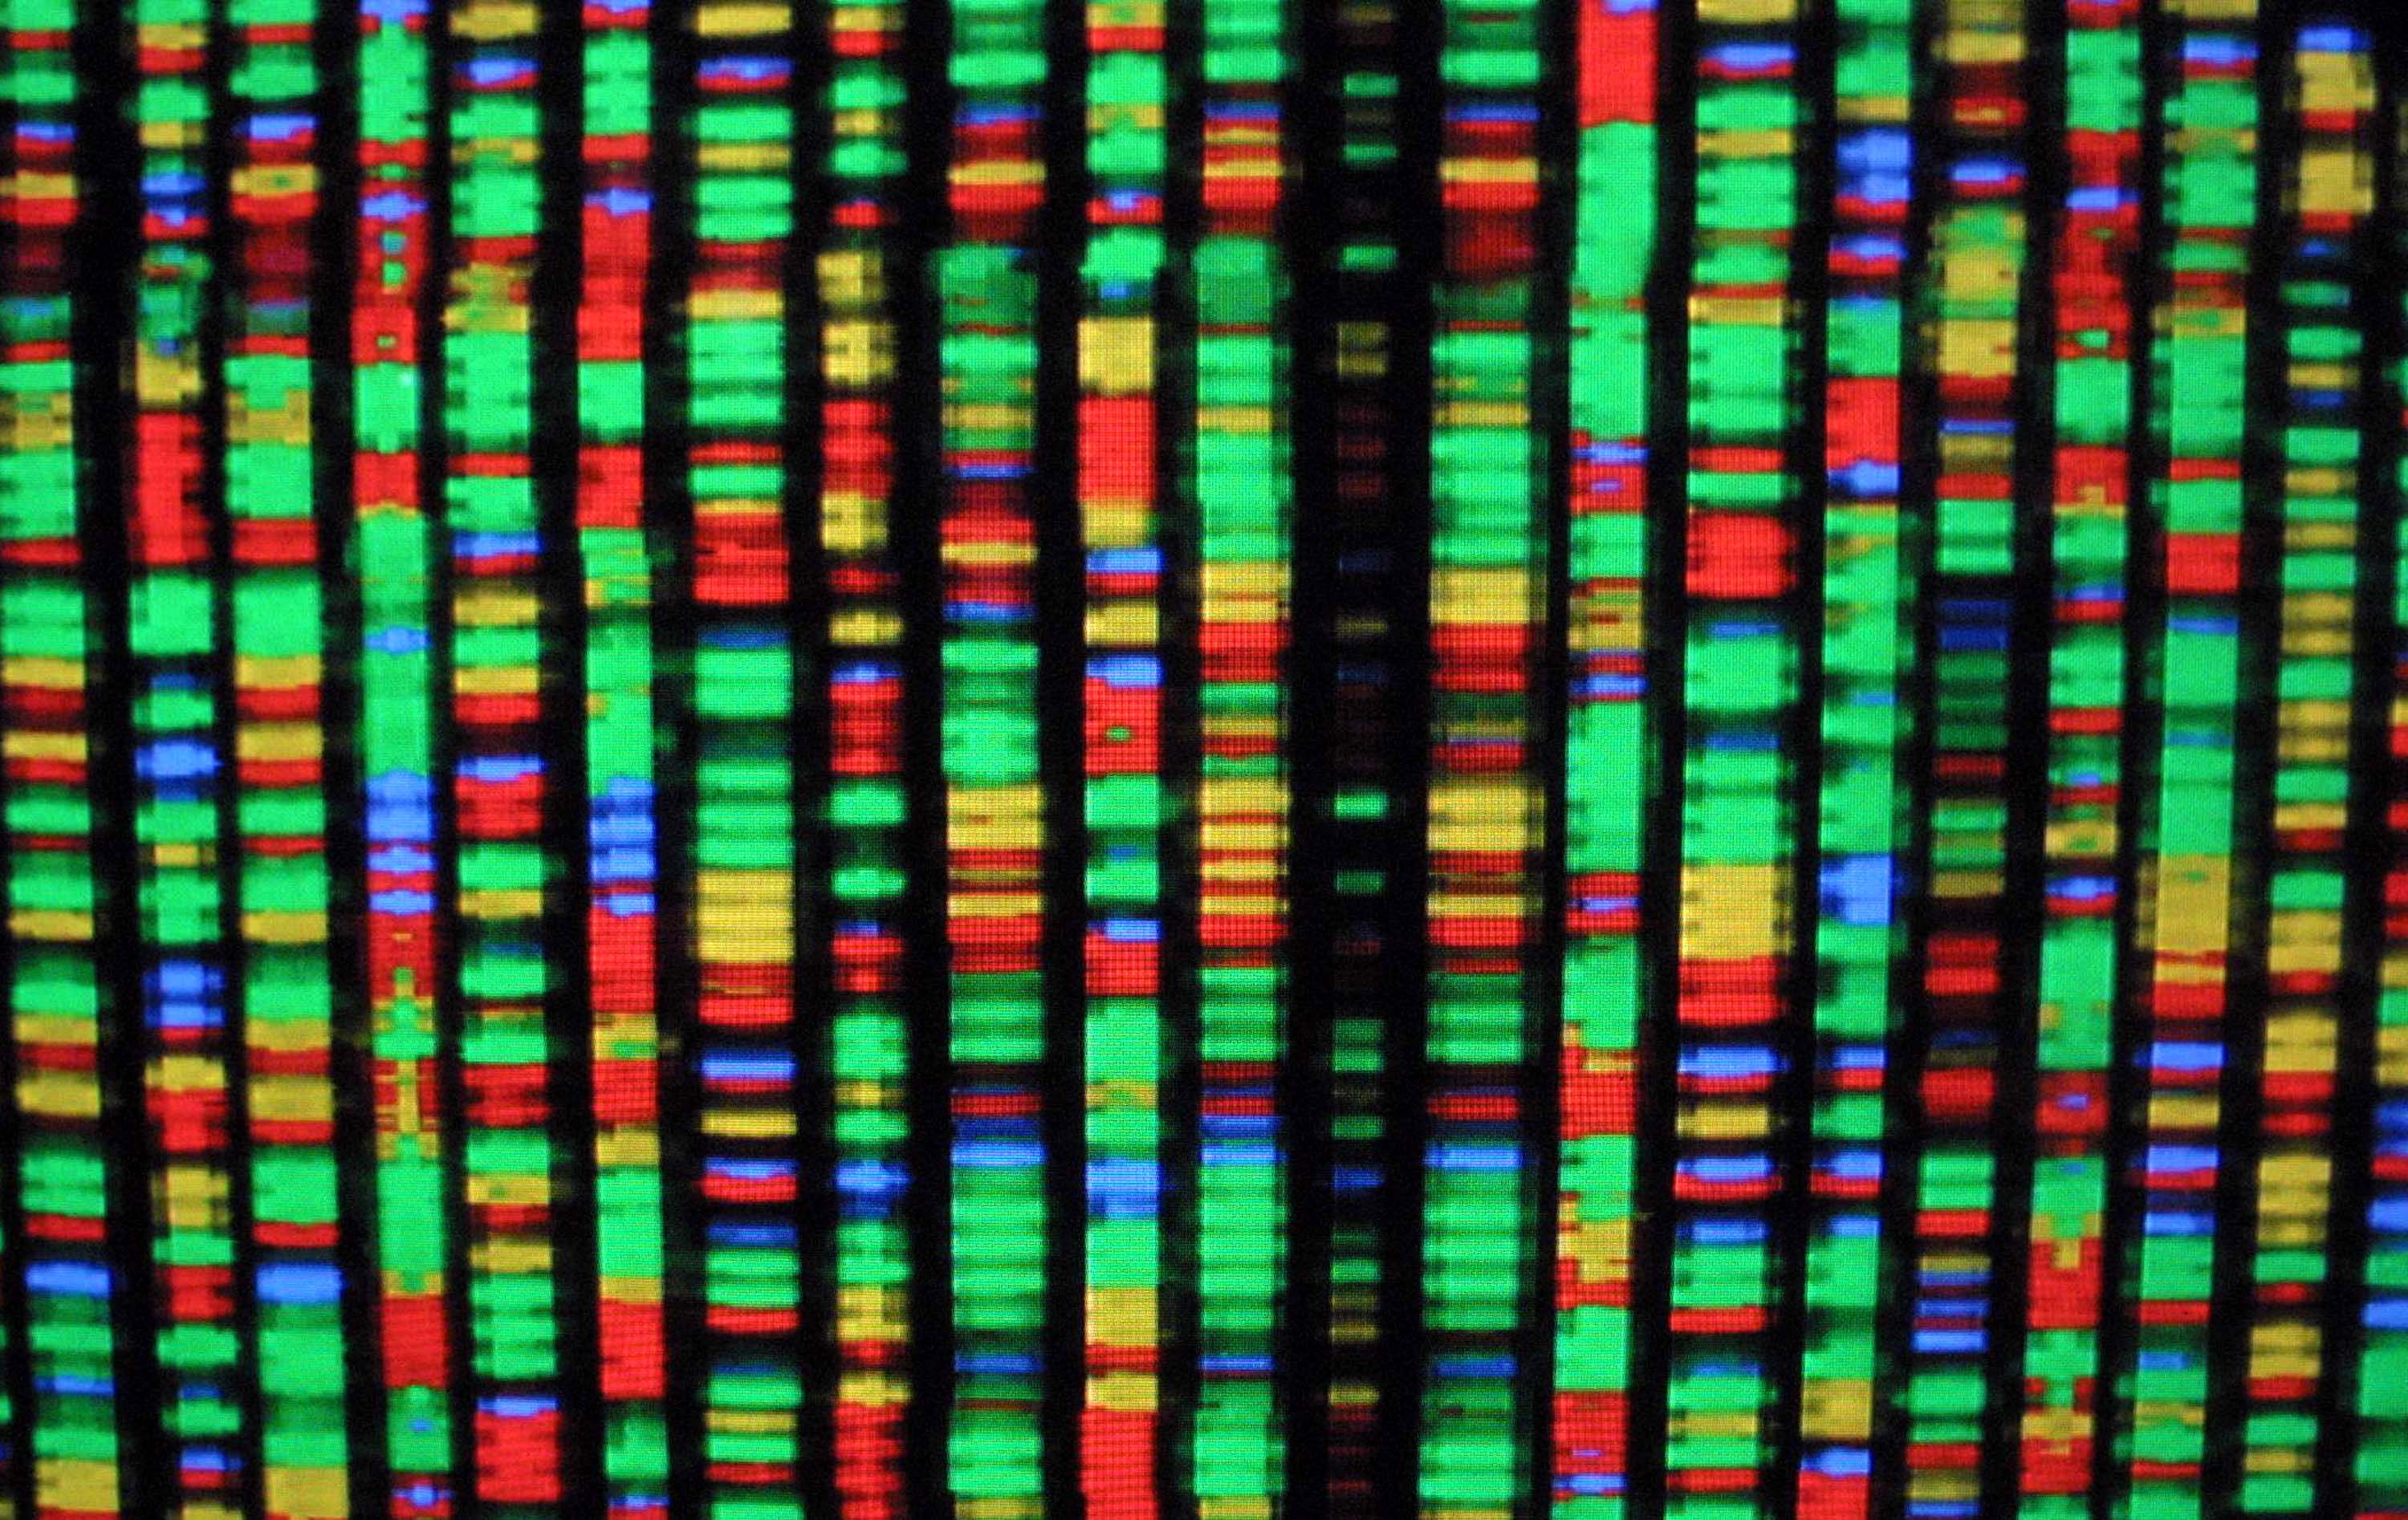
Uma tela preta exibe colunas estreitas compostas por pequenas listras vermelhas, verdes, azuis e amarelas.

No Museu Americano de História Natural, uma representação digital do genoma humano de 2001 apresenta codificação de cores para os quatro componentes químicos do DNA.

Mário Tama/Getty Images

Conforme estabelecido por uma importante associação profissional de antropólogos biológicos , a raça é uma social realidade que afeta a nossa biologia. Nas últimas centenas de anos, nos EUA e noutros países colonizados, o racismo influenciou o acesso das pessoas a alimentos nutritivos, educação, oportunidades econômicas, cuidados de saúde, segurança e muito mais. Como consequência, e precisamente devido à influência ambiental na maioria das características, a construção social da raça é um fator de risco para muitas condições e resultados de saúde, incluindo mortalidade materna e infantil , asma e gravidade da COVID-19 .

Médicos e pesquisadores estão reconhecendo cada vez mais que as disparidades raciais na saúde são resultado do racismo e não de diferenças raciais inatas.

LIÇÕES DE ATRASO

Quando comecei a lecionar na Duke University, há cinco anos, presumi que a maioria dos estudantes universitários teria recebido uma educação básica em genética – uma educação que refletisse actualizações fundamentais na investigação genética ao longo dos últimos 50 anos.

Não é assim. Rapidamente aprendi que a maioria dos alunos de graduação em minhas aulas ainda mantém a crença pré-Lewontin de que a variação genética humana se classifica predominantemente geograficamente. Muitos estudantes também pensavam que a raça se baseava em diferenças genéticas e que mutações únicas poderiam explicar características complexas nos seres humanos, como o risco para a maioria das doenças.

Duvido que os alunos das minhas aulas fossem únicos. Estudos mostraram que apresentações inconsistentes e a-históricas da genética provavelmente contribuem para a confusão dos estudantes sobre a natureza dos genes e seu papel em nossas vidas.

Os livros escolares padrão dos EUA dão pouca atenção à variação biológica humana. Em vez disso, a maioria dos livros concentra-se em tópicos como Gregor Mendel , o padre austríaco do século XIX que derivou “leis” de herança a partir do rastreamento de características observáveis ​​ao cruzar variedades de ervilhas. (Lembra daqueles quadrados de Punnett com ervilhas verdes e amarelas, ou enrugados e redondos?)

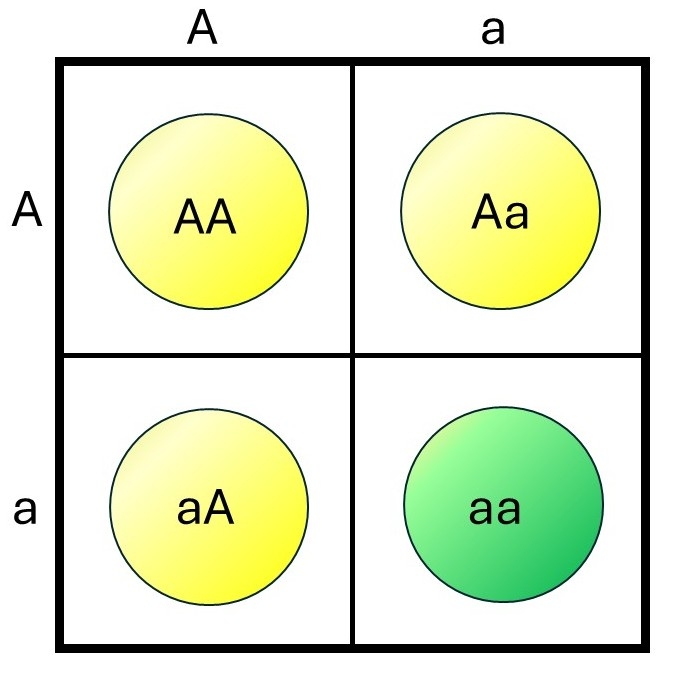
Um quadrado mostra quatro quadrados dentro dos quais há ilustrações de três ervilhas amarelas e uma ervilha verde.

O quadrado de Punnett mostra três possíveis genótipos que poderiam resultar do cruzamento de ervilhas verdes e amarelas: AA, Aa/aA, aa. Os genótipos AA e Aa/aA resultarão no fenótipo da ervilha amarela porque A é dominante. Somente aa produzirá o fenótipo da ervilha verde.

SAPIENS

Eu, juntamente com outros, estamos preocupados com o facto de este foco incutir e reforçar uma falsa visão pré-Lewontin de que os humanos, tal como as ervilhas de Mendel, vêm em tipos distintos. Na realidade, os primeiros estudos de ervilhas e outras espécies domesticadas e consanguíneas têm pouca relevância para a genética humana.

E quando as aulas do ensino secundário , superior e da faculdade de medicina nos EUA cobrem a diversidade humana, as lições centram-se principalmente na prevalência de doenças – e estão repletas de terminologia racializada. Por exemplo, os alunos aprendem frequentemente que a anemia falciforme afeta principalmente os afro-americanos. Mas a anemia falciforme não é exclusiva nem característica das pessoas com ascendência africana. Em vez disso, a variante genética que causa as células falciformes ocorre mais frequentemente em pessoas com ascendência recente em partes de África, Europa e Sul da Ásia – regiões onde a malária é ou foi recentemente endêmica.

Essa distinção pode parecer uma confusão. Mas acontece que tais distinções têm consequências.

Acadêmicos como o biólogo e educador Brian Donovan testaram como esses exemplos simplificados influenciam o pensamento dos alunos. Em vários estudos , ele comparou salas de aula que usavam livros didáticos padrão com aquelas que incorporavam conteúdo mais atualizado e preciso sobre a variação biológica humana. Os alunos que receberam a típica e desatualizada educação genética eram mais propensos a pensar que a raça é inerentemente biológica e que as diferenças genéticas entre as raças explicam as diferenças nos resultados da vida. O material desatualizado também diminuiu o apoio dos estudantes aos esforços destinados a corrigir a desigualdade racial.

Por outro lado, essa investigação também mostrou que estas medidas são revertidas por conteúdos que incluem a distribuição global da maior parte da variação genética e a base complexa e multifactorial da maioria das características humanas.

Os educadores podem perpetuar ou dissipar conceitos errados, dependendo de como ensinam genética.

DESTRUINDO UMA IDEIA ZOMBI

Considero a noção de que as categorias raciais históricas são baseadas na biologia uma “ ideia zumbi ”, uma ideia que reanima perpetuamente apesar das repetidas falsificações empíricas. As ideias zombies de raça biológica provavelmente persistem quando pontos de vista profundamente arraigados, particularmente aqueles importantes para as nossas identidades sociais, minam a avaliação racional das evidências. Como resultado, alguns argumentaram que é inútil combater o racismo com provas científicas.

Para ajudar o zumbi a persistir, os testes genéticos diretos ao consumidor , como os oferecidos pela 23andMe e pela AncestryDNA, podem reforçar conceitos errôneos sobre a variação humana. Esses serviços tornaram-se o principal ponto de referência de muitas pessoas para informações genéticas humanas. Para serem comercializáveis, as empresas devem comunicar os seus resultados de forma simples e familiar, que também pareçam significativas e fiáveis. Isso geralmente implica simplificar a ancestralidade genética para cores brilhantes e de alto contraste, fixadas definitivamente em regiões geográficas.

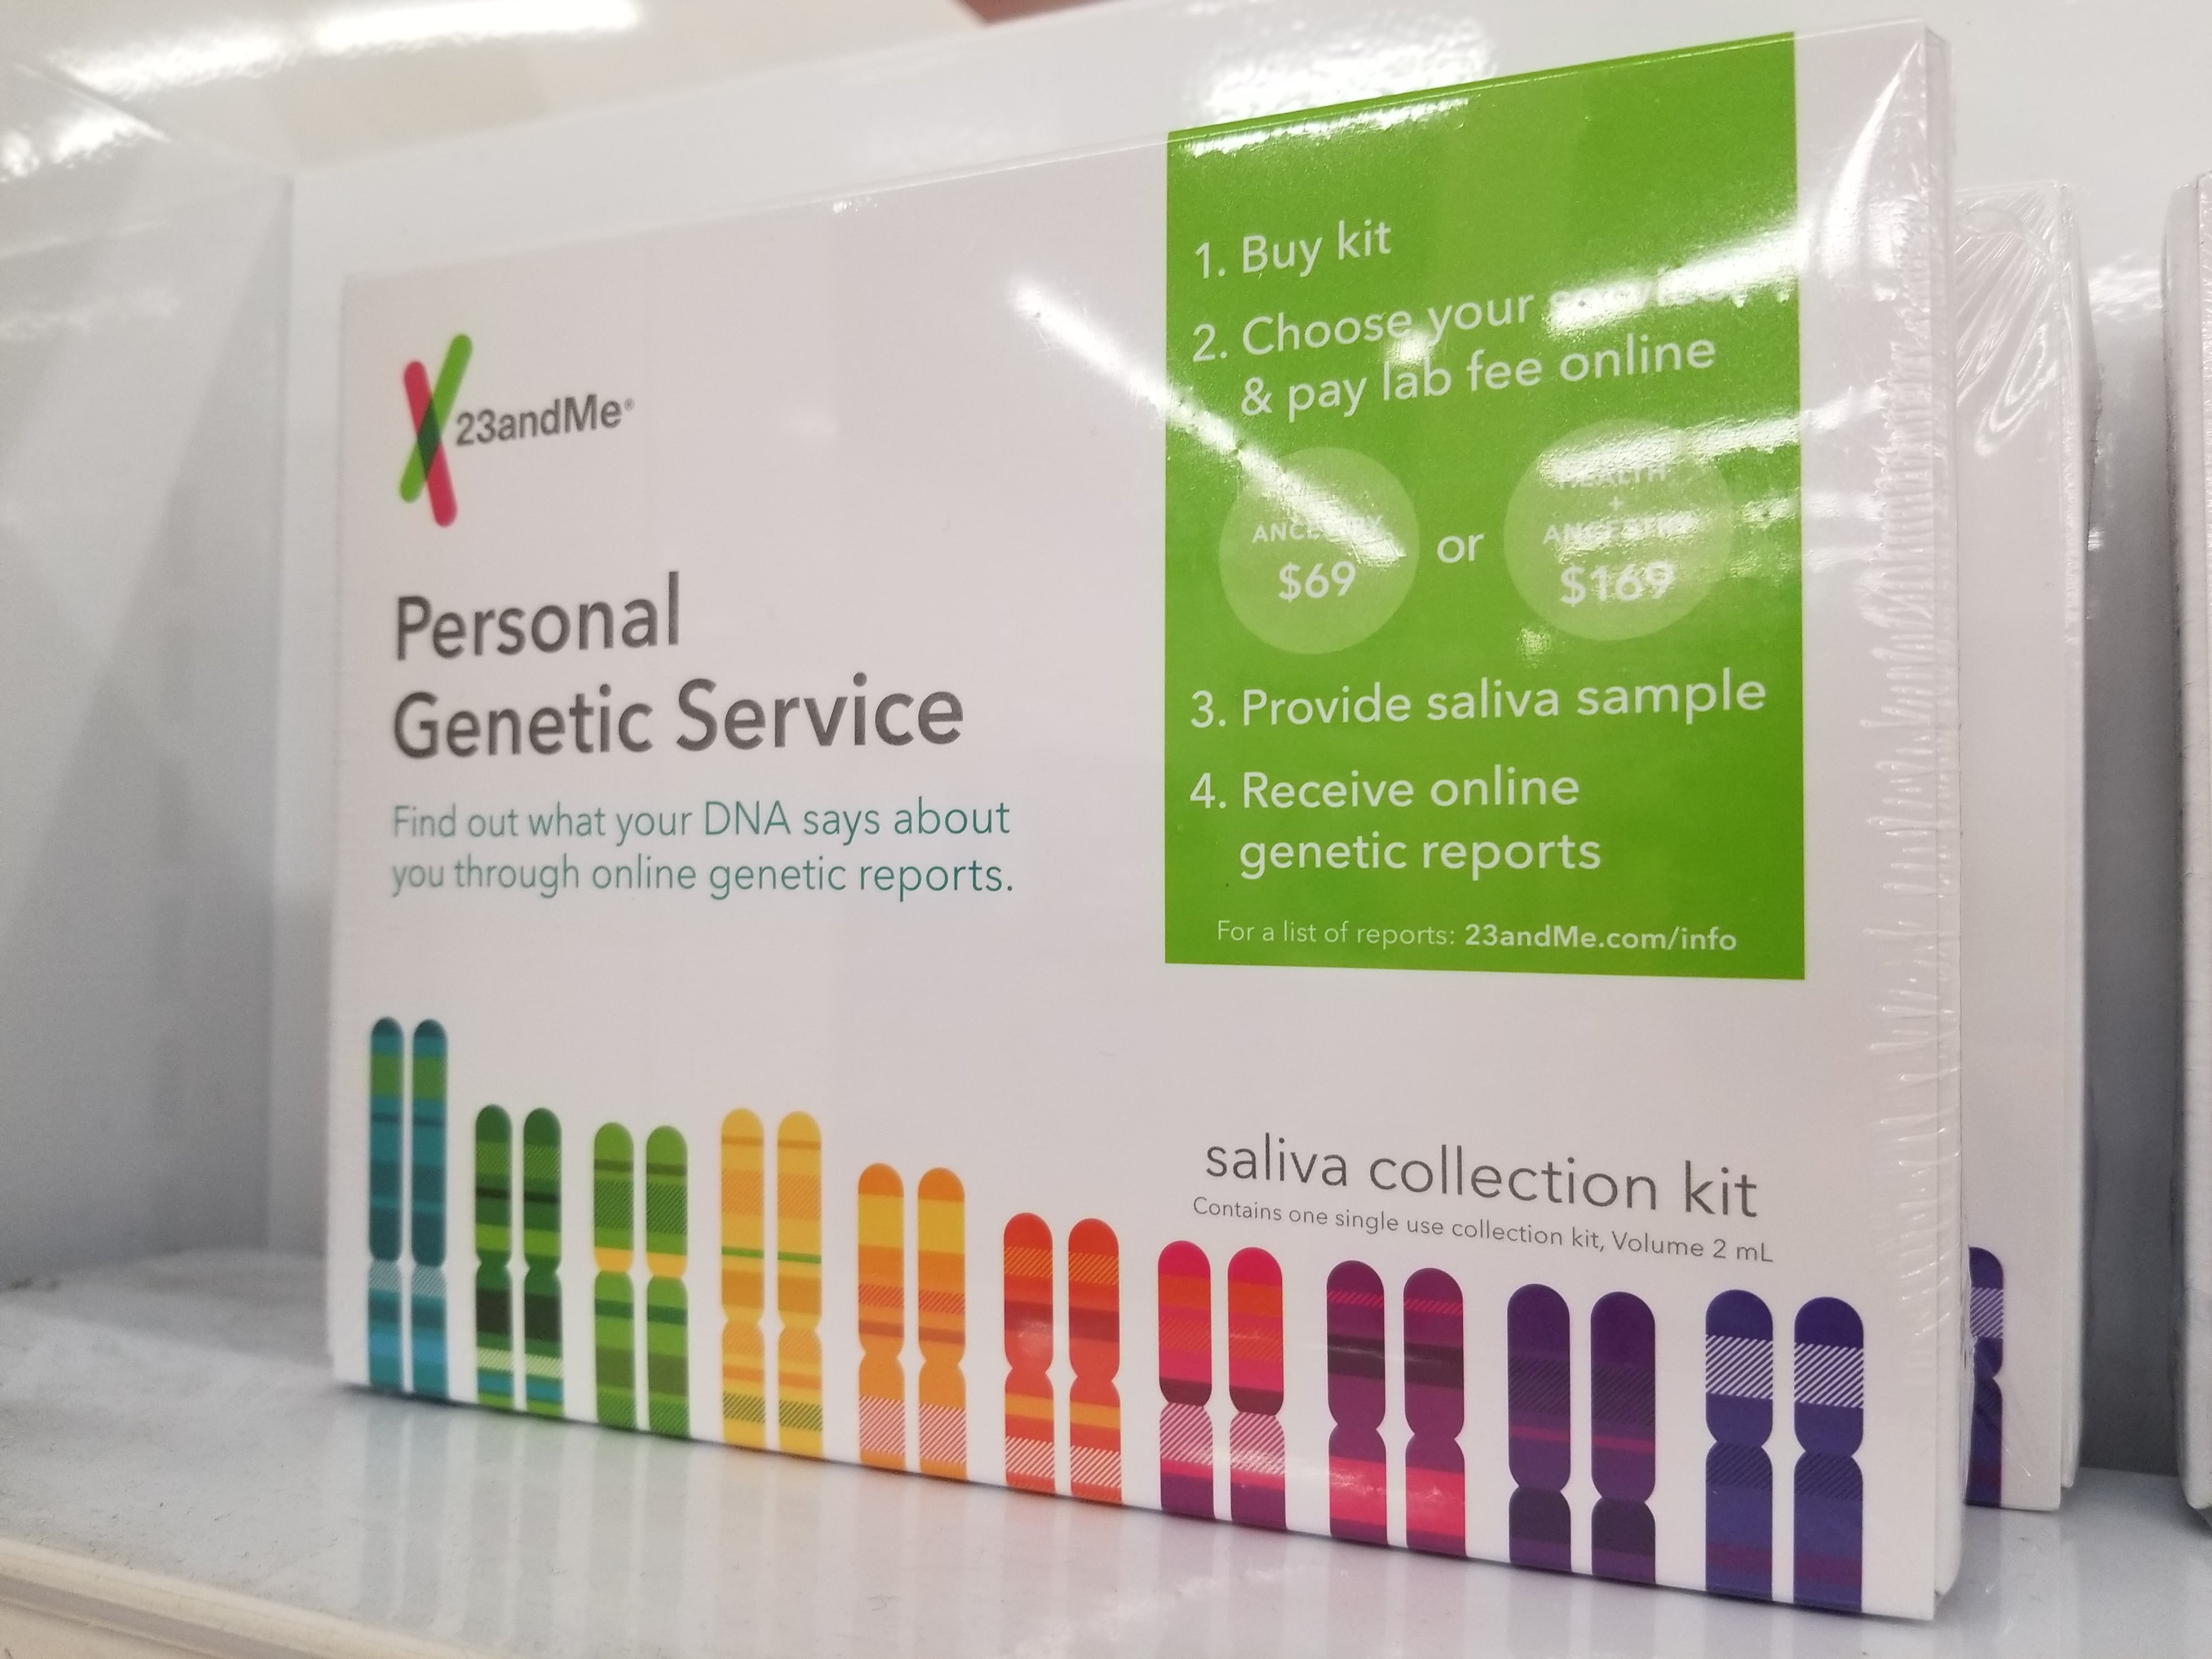
Uma caixa branca com as palavras “Serviço Genético Pessoal” e representações gráficas coloridas de genes está em uma prateleira.

Testes de genómica pessoal, como os do 23AndMe, dão a ilusão de precisão na identificação da linhagem genética de uma pessoa em regiões específicas do globo – mas a história real é muito mais complexa.

Smith Collection/Gado/Getty Images

Mesmo assim, a investigação de Donovan e outros sugere que é possível enfraquecer este zombie: chegar aos jovens através dos currículos de biologia pode alterar a sua visão sobre a raça e a variação humana.

No entanto, poucos livros didáticos de ensino médio e de graduação oferecem conteúdo atualizado. A genética da ervilha ainda ocupa as páginas. Adotar novos currículos, que complicam materiais que já são difíceis de ensinar, é assustador. A implementação de currículos de genética no ensino médio mais precisos exigirá o apoio de administradores escolares, pais e entidades como o College Board, que administra o exame de biologia Advanced Placement.

Entretanto, a integração generalizada da genética moderna nos cursos universitários é essencial. O ensino superior não tem o mesmo alcance do ensino fundamental e médio. Mas os instrutores universitários têm mais agilidade para ajustar o conteúdo do curso. Além disso, incutir conhecimentos atualizados em futuros professores secundários e médicos pode ter efeitos em cascata.

Essas mudanças não são fáceis, mas são possíveis e valem a pena. Além de impedir a propagação de visões de mundo racistas, a próxima geração estará mais bem informada sobre cuidados de saúde complicados e decisões reprodutivas. Currículos revisados ​​que não promovem implicitamente uma base biológica para categorias raciais históricas também têm menos probabilidade de alienar os estudantes de grupos sub-representados. Esta mudança poderia, por sua vez, aumentar a diversidade na força de trabalho científica, conduzindo a uma ciência melhor e mais saudável e a uma maior confiança entre os investigadores e o público.

Lewontin morreu aos 92 anos em 2021 . Seu trabalho foi fundamental para demonstrar que a raça não se baseia em diferenças genéticas. Muitos outros, como os geneticistas e comunicadores talentosos Joseph Graves Jr. , Charmaine Royal e Graham Coop , continuaram incansavelmente a carregar esta tocha.

Os educadores e as famílias podem ajudar exigindo que as suas escolas substituam os currículos centrados nas ervilhas do século XIX pela genética humana do século XXI.

Translator


Aprendendo com instantâneos de fósseis perdidos

Nem todas as descobertas de fósseis acontecem no campo. Nos arquivos do museu, os pesquisadores encontraram fotos de restos mortais de crianças do Paleolítico que pertenceram a um grupo dos primeiros Homo sapiens na Eurásia.
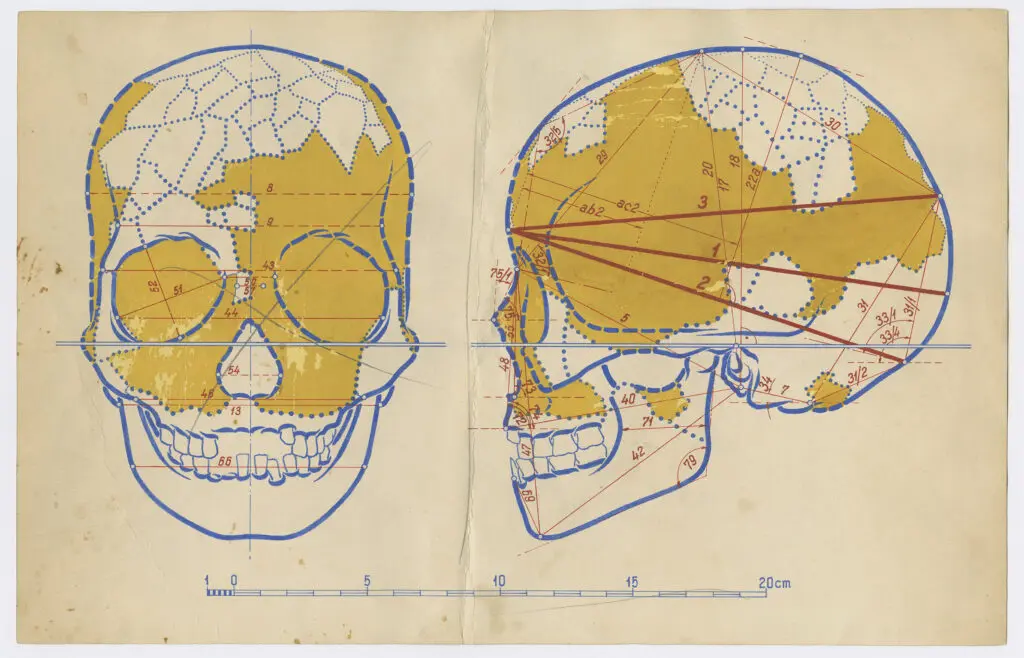
Dois gráficos lado a lado retratam caveiras, uma voltada para frente e outra de perfil. Ambas as imagens são contornadas em azul e possuem seções sombreadas em amarelo. A imagem do perfil tem três linhas vermelhas que se estendem em dois formatos de V.

Uma ilustração armazenada nos arquivos do museu indica peças de Ksâr 'Akil 1 (o crânio de criança mais completo) que foram encontradas (branco) ou reconstruídas com base em medições (amarelo).

Presente de Nancy Movius, 1998. Cortesia do Museu Peabody de Arqueologia e Etnologia, Universidade de Harvard, 998-27-40/14628.1.63

Observe que este artigo inclui imagens de restos mortais humanos.

OUTRO CONJUNTO DE DENTES

“Esses dentes não pertencem a Egbert!”

No porão de um museu, nos debruçamos sobre uma fotografia em preto e branco que mostrava pedaços de um maxilar inferior e seus dentes soltos. A foto capturou evidências de uma criança desaparecida – uma criança que havia sido enterrada há 40 mil anos, apenas para ser descoberta e depois perdida por arqueólogos.

Esta criança há muito perdida, representada apenas por um maxilar inferior, foi referida como Ksâr 'Akil 4 porque foi o quarto fóssil humano descoberto no local de Ksâr 'Akil, no Líbano, na costa oriental do Mediterrâneo.

Os arqueólogos encontraram os restos mortais ao lado de outro fóssil chamado Ksâr 'Akil 1, que incluía partes de um crânio. Talvez porque esse outro crânio fosse mais completo, esse indivíduo recebeu o apelido: “Egbert”. Assim como Ksâr 'Akil 4, Egbert também era uma criança fóssil agora desaparecida. As duas crianças pertenciam a uma população de primeiros Homo sapiens que se espalhou pela Eurásia na época em que os Neandertais foram extintos. Seus restos mortais e os artefatos encontrados com eles lançam luz sobre este importante ponto de viragem na evolução humana.

Antes do desaparecimento de Egbert, os cientistas criaram uma cópia do crânio da criança, permitindo que futuros pesquisadores o estudassem. Nenhum molde desse tipo foi feito de Ksâr 'Akil 4. Sua existência foi meramente anotada como “outra dentição” encontrada ao lado de Egbert nas primeiras publicações.

Ksâr 'Akil 4 permaneceu desconhecido dos pesquisadores até 2019, quando nós - um arqueólogo e um antropólogo biológico - encontramos uma fotografia desses dentes dentro de torres de caixas de papelão com documentos das escavações de Ksâr 'Akil. A partir da fotografia, aprendemos novos detalhes sobre esta população crucial – uma descoberta que destaca a importância da investigação em arquivo e do aparentemente mundano rasto de papel que deve acompanhar qualquer trabalho de campo antropológico.

ENCONTRADO E PERDIDO

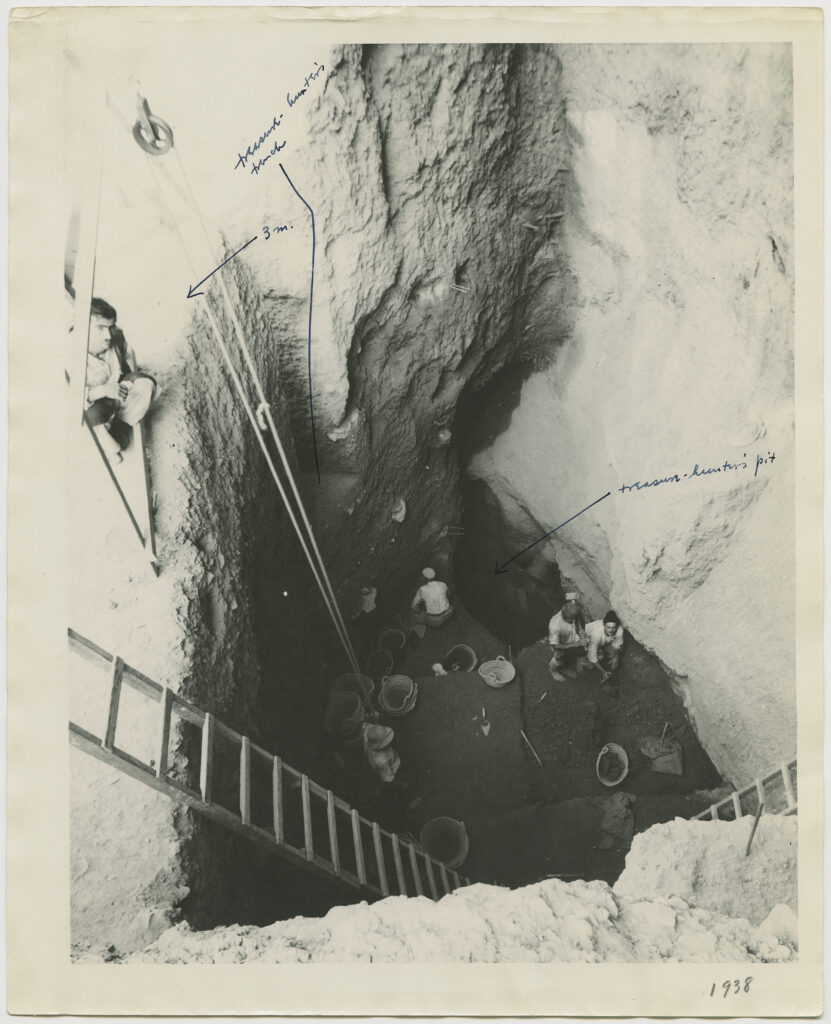
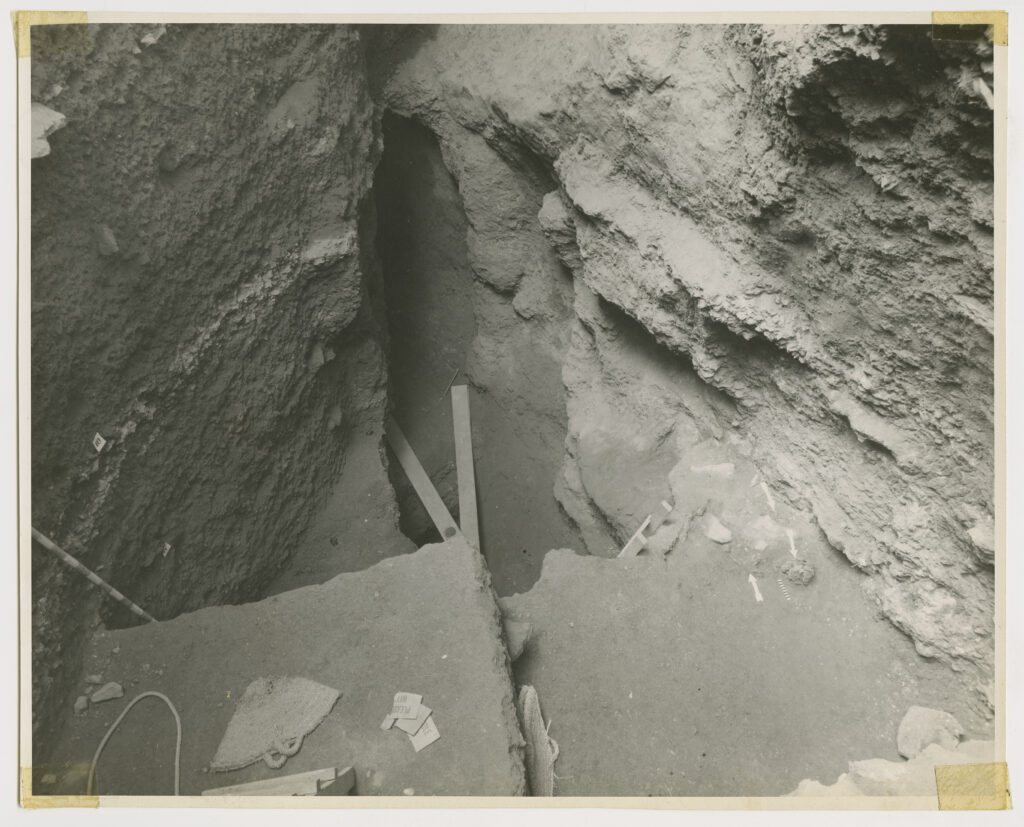
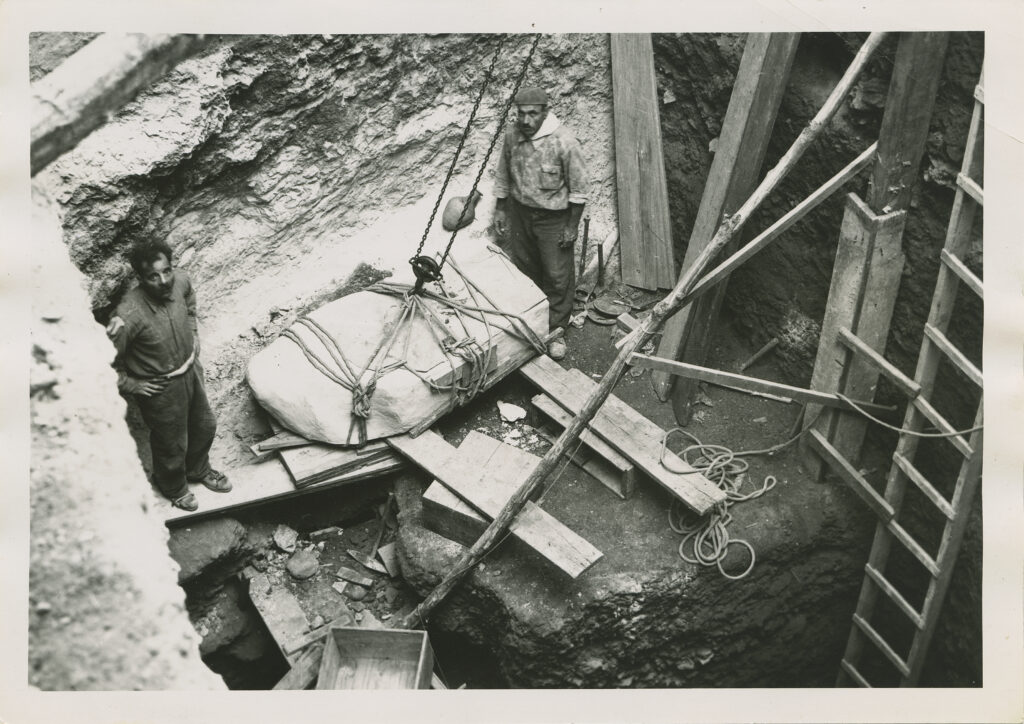
Em 1937, padres jesuítas americanos iniciaram escavações em Ksâr 'Akil. Eles cavaram uma trincheira tão profunda quanto dois ônibus urbanos empilhados de ponta a ponta, que rendeu milhões de artefatos e restos de comida. Em cartas pessoais escritas em novembro de 1938, o antropólogo biológico do projeto, Padre J. Franklin Ewing, discutiu dois sepultamentos de crianças que surgiram na metade da escavação.

Com a aproximação da Segunda Guerra Mundial, a equipe teve que selar os restos mortais de Egbert e Ksâr 'Akil 4 em concreto e partir. As forças japonesas interceptaram Ewing a caminho de casa, para os EUA, através das Filipinas. Ele se tornou prisioneiro de guerra, perdendo muitos registros das escavações iniciais em Ksâr 'Akil.

Após a guerra, Ewing recuperou do Líbano os túmulos humanos revestidos de concreto e os enviou para um museu na Universidade de Harvard para uma escavação cuidadosa. Aqui as evidências dos arquivos são obscuras, mas parece que apenas o crânio de Egbert e os dentes de Ksâr 'Akil 4 foram extraídos com sucesso. Tal como as notas e fotografias das primeiras escavações, os outros fósseis e artefactos que antes estavam encerrados no bloco de betão estão agora perdidos.

Parte de um crânio é visível dentro de um pedaço de terra abaixo de uma régua listrada.

Uma fotografia do Museu Peabody mostra fósseis à medida que emergiam do solo durante as escavações em Ksâr 'Akil.

Presente de Nancy Movius, 1998. Cortesia do Museu Peabody de Arqueologia e Etnologia, Universidade de Harvard, 998-27-40/14628.1.55.

Uma caveira fica em um pequeno pedestal em frente a uma parede branca.

A reconstrução de Ksâr 'Akil 1 por Ewing é mostrada nesta fotografia do Museu Peabody.

Presente de Nancy Movius, 1998. Cortesia do Museu Peabody de Arqueologia e Etnologia, Universidade de Harvard, 998-27-40/14628.1.59.

Ewing nunca publicou uma descrição detalhada dos restos mortais de Egbert. Mas foi ele quem fez a reconstrução do crânio de Egbert antes que o material fosse perdido. Ele usou grandes quantidades de massa de modelar para fazer “melhores suposições” sobre sua forma original. No final da década de 1980, outros pesquisadores descreveram formalmente o crânio de Egbert com base em um molde dessa reconstrução, mas nada foi feito em relação ao segundo filho.

No one knows where the physical remains of either Ksâr ‘Akil child ended up. Ewing claimed he shipped the fossils back to Lebanon in the 1950s or 1960s. It’s unclear if they ever arrived.

UPPER PALEOLITHIC CHILDREN

Embora sejam apenas crianças, e apenas fragmentos delas, os fósseis de Ksâr 'Akil são importantes. Os artefactos encontrados com eles atestam mudanças culturais e tecnológicas, conhecidas como Paleolítico Superior, que varreram a região do Mediterrâneo e outras partes da Eurásia há cerca de 40 mil anos, quase na altura em que os Neandertais desapareceram.

As inovações tecnológicas incluem armas de longo alcance, como o arco e a flecha, e dietas expandidas que poderiam ter alimentado populações maiores. As mudanças culturais em Ksâr 'Akil e em outros sítios do Paleolítico Superior mostram que esses humanos também usaram formas inovadoras de expressão visual. Eles pintaram com ocre vermelho e amarelo, confeccionaram contas com dentes de animais e conchas, e em Ksâr 'Akil acessaram pedras exóticas de até 700 quilômetros de distância, onde hoje é o centro da Turquia.

Embora sejam apenas crianças, e apenas fragmentos delas, os fósseis de Ksâr 'Akil são importantes.

Essas mudanças associadas às culturas do Paleolítico Superior provavelmente foram decorrentes de comportamentos gradualmente desenvolvidos na África ou na Arábia. O seu aparecimento aparentemente súbito como um pacote na Europa e no Mediterrâneo pode ser o resultado da migração de recém-chegados com as tecnologias para as regiões. Ou talvez estas novas ideias se tenham espalhado pelas sociedades já existentes.

Mas a maioria dos sítios paleolíticos contém apenas ferramentas de pedra e outros artefatos. Não há fósseis que indiquem quem fez os itens.

Excepcionalmente, Ksâr 'Akil é um dos poucos locais no Mediterrâneo onde foram encontrados artefatos do Paleolítico Superior com restos humanos. Esses locais são fundamentais para demonstrar que, qualquer que seja o mecanismo da sua propagação, as pessoas responsáveis ​​por estas tecnologias do Paleolítico Superior foram os H. sapiens — e não os Neandertais ou algum outro grupo extinto de hominídeos.

FOTOS DE PESSOAS DESAPARECIDAS

As descobertas de Ksâr 'Akil interessaram a nós dois. Bailey é um antropólogo dentário pioneiro em métodos de distinção entre os dentes do H. sapiens e dos neandertais. Tryon, um arqueólogo paleolítico, estuda artefatos e sedimentos de antigos sítios humanos.

Dezenas de milhares de ferramentas de pedra de Ksâr 'Akil estavam guardadas há décadas, em sua maioria sem serem estudadas, em caixas de madeira no Museu Peabody de Arqueologia e Etnografia da Universidade de Harvard. Tryon estava ansioso para começar a analisar as ferramentas de pedra com a colega Laure Metz (que corretamente suspeitava que algumas das menores eram usadas como pontas de flechas ). Mas primeiro decidiu inspecionar as notas, papéis, cartas e fotografias que documentavam o local.

Entre esses documentos, Tryon encontrou uma série de fotografias e imagens de raios X de restos mortais humanos e procurou Bailey para ajudar a entendê-los. Algumas das fotos mostravam pedaços de mandíbulas unidas com argila; outros mostraram vários fragmentos separados. Presumimos que as fotografias eram dos mesmos dentes – os dentes de Egbert – antes e depois da reconstrução com argila.

Olhando mais de perto, Bailey notou discrepâncias entre as cristas e vales sutis dos dentes isolados e aqueles nas mandíbulas fortificadas com argila.

“Esses dentes não pertencem a Egbert!” ela exclamou. Embora as mandíbulas com argila fossem de Egbert, os dentes isolados devem ter vindo de Ksâr 'Akil 4.

As imagens permitiram-nos fornecer a primeira descrição científica de Ksâr ‘Akil 4. Entre outras informações, determinamos que a criança tinha cerca de 8 anos de idade. Pelas fotos e radiografias, também aprendemos mais sobre Egbert. Confirmamos que o garoto também tinha cerca de 8 anos e fizemos um estudo detalhado do formato dos dentes de Egbert, o que era impossível apenas com os modelos.

Uma radiografia mostra quatro conjuntos de dentes dispostos em duas fileiras - porções da mandíbula inferior de perfil na parte superior e dois grupos menores abaixo.

As radiografias dos dentes da criança (Ksâr 'Akil 1) permitiram aos autores identificar características dentárias que podem ser exclusivas desta antiga população de H. sapiens .

Presente de Nancy Movius, 1998. Cortesia do Museu Peabody de Arqueologia e Etnologia, Universidade de Harvard, 998-27-40/14628.1.57

Nunca saberemos por que as duas crianças perdidas foram enterradas. Mas a partir dos detalhes dos seus dentes observados em fotografias tiradas há mais de 70 anos, podemos identificar ambos como pertencentes à nossa espécie, o H. sapiens .

Ao mesmo tempo, exibem alguns detalhes dentários incomuns. Quase todos os fósseis e a maioria das pessoas vivas têm cinco cúspides nos primeiros molares permanentes inferiores (também conhecidos como “dentes escolares” porque surgem por volta dos 6 anos de idade). Mas apenas quatro cúspides enfeitavam os molares das crianças perdidas de Ksâr 'Akil.

Esses tipos de diferenças dentárias podem ser marcadores de uma determinada população antiga. Os estudiosos traçam esses marcadores físicos nos corpos das pessoas ao longo do tempo e do espaço, como um rastro de migalhas deixado por grupos antigos em movimento. Conhecer este marcador de cúspide pode ajudar pesquisas futuras sobre pessoas há cerca de 40 mil anos – à medida que as populações migravam para fora de África, para África ou através da Eurásia.

ESCAVAÇÕES NOS ARQUIVOS

Além do que aprendemos sobre os jovens Ksâr 'Akil, a nossa experiência demonstra a importância da investigação arquivística. Destaca o valor de uma segunda análise cuidadosa de documentos, fotografias e materiais provenientes de escavações que ocorreram há décadas, e o importante papel que os museus e arquivistas desempenham na conservação destes registos.

Levantamentos em paisagens ensolaradas e escavações subterrâneas feitas à luz de lâmpadas podem ser emocionantes. Naturalmente, eles capturam nossa imaginação. Mas a investigação de campo infelizmente tende a favorecer pessoas com certos graus de riqueza, privilégios e capacidades. A pesquisa de arquivos pode ser mais acessível – e igualmente esclarecedora. Temos muito a aprender com os documentos deixados pelos estudiosos de ontem.

quinta-feira, 31 de outubro de 2024

Translator


As primeiras chegadas à Austrália povoaram o continente muito rapidamente

Cientistas franceses e australianos modelaram a paisagem em evolução do antigo supercontinente Sahul para descobrir a rapidez com que os humanos foram capazes de povoar a massa de terra que eventualmente se tornaria a Austrália.

Acontece que estas primeiras pessoas a chegar através de pontos de entrada na Papua Ocidental e no Mar de Timor, há mais de 65.000 anos, conseguiram ocupar grande parte do continente em 30.000 anos – a taxas mais rápidas do que outros grupos antigos em todo o mundo.

Durante o último máximo glacial, os níveis mais baixos do mar significaram que a atual Austrália e Nova Guiné foram unidas por uma ponte terrestre que permitiu o movimento humano a partir da Ásia para o sul.

Os primeiros registros da ocupação humana na Austrália foram datados por um grupo de pesquisa em 65 mil anos atrás, em um sítio na Terra de Arnhem. O local é uma das muitas “rotas migratórias” propostas ao longo das quais se pensava que a massa de terra australiana foi povoada ao longo de milhares de anos.

Mas o novo trabalho, liderado por modeladores climáticos de tempo profundo e arqueólogos, sobrepõe simulações do movimento humano sobre a paisagem em mudança do continente e sugere um processo relativamente rápido, e não apenas ao longo das rotas de migração de “ superestradas ” anteriormente descritas. Suas descobertas foram publicadas na revista Nature Communications.

“Pelo que vemos nos nossos modelos… não é realmente o caso”, diz Tristan Salles, pesquisador de processos terrestres da Universidade de Sydney que liderou o estudo.

“Existem obviamente alguns locais onde [a migração] parece seguir estas auto-estradas, mas também existem outros locais onde, basicamente, há uma grande probabilidade, de acordo com o nosso modelo, de encontrar algumas pessoas a deslocar-se por estes locais que não faziam parte das rotas da superestrada descritas anteriormente.”

Em vez de simplesmente longos corredores migratórios, a modelação realizada pela equipa de Salles sugere que ondas de migração também ocorreram ao longo de fontes de água como rios e costas, seguindo padrões de drenagem em vez de uma rota definida.

Tristan Salles from the School of Geosciences at the University of Sydney.
Dr Tristan Salles da Escola de Geociências da Universidade de Sydney. Crédito: Stefanie Zingsheim

Time usinando os primeiros pioneiros

Para compreender os padrões de movimento humano, o grupo simulou as mudanças na massa terrestre de Sahul ao longo de 40.000 anos durante o período do Pleistoceno Superior.

Considerando que as mudanças no nível do mar e nas precipitações foram consideradas os principais impulsionadores das mudanças geográficas ao longo deste período, eles simularam a transformação das florestas temperadas e tropicais do continente; regiões desérticas, de savana e alpinas; e pastagens.

Consideraram então como as mudanças na produtividade ambiental e na geografia da água teriam ajudado – ou dificultado – o antigo movimento humano.

Em média, prevêem que os humanos conseguiram povoar o sul do continente de forma relativamente rápida – entre 6-10 km por ano, dependendo dos pontos de entrada simulados na Papua Ocidental ou ao largo da costa do Mar de Timor.

Isto é mais rápido do que os grupos de caçadores-coletores na Europa e na América do Norte, embora observem que velocidades populacionais semelhantes foram descritas quando os continentes foram ocupados pela primeira vez.

“Quando você considera o número de quilômetros por ano, não parece muito rápido”, diz Salles. “Mas se você comparar com outras pessoas que imigram para diferentes lugares do mundo, é bastante rápido.

“Essa migração rápida também foi inferida por outras pessoas em estudos anteriores, seja com modelos ou observando a genética e o sequenciamento do genoma – as pessoas conseguiram ver que isso estava acontecendo, de forma relativamente rápida em comparação com outros lugares.”

A map of the Sahul supercontinent where Australia and New Guinea are connected
Probabilidade de locais de migração com base na modelagem realizada por (Fonte) Salles et al.

Traçando um mapa para uso arqueológico

Embora a pesquisa não se aprofunde na complexidade das culturas desenvolvidas pelos povos Sahul que podem ter influenciado o seu movimento através do continente predecessor da Austrália, a sua modelagem fornece um “mapa de calor” de onde a Austrália provavelmente seria povoada há 35.000 anos. .

Partes do centro vermelho da Austrália, a planície de Nullarbor, a atual Tasmânia e a parte sudeste do continente foram modeladas como tendo uma probabilidade mais baixa de ocupação no ponto de corte.

O benefício do estudo, diz a equipe de Salles, é que, com uma melhor compreensão dos caminhos prováveis ​​para os “caminhantes Sahul”, os arqueólogos podem agora estar em melhor posição para localizar futuros locais de estudo.

Em vez de tentar ligar sítios arqueológicos conhecidos para determinar o movimento humano através do tempo e do espaço, esta modelação começa a partir de dois “pontos de entrada” do norte e observa como os grupos se movem através do continente.

“Você pode usar seu mapa e ver onde nas regiões que definimos o modelo está prevendo alta probabilidade da presença de humanos, e essa poderia ser uma primeira maneira de atingir algum local específico”, diz Salles.

A partir daí, o modelo pode ser executado repetidamente para tentar refinar possíveis locais de estudo para ocupação humana. Não pousará exatamente onde restos humanos e artefatos podem estar enterrados, mas considerará a geografia da Austrália ao longo de milhares de anos, combinada com a chegada prevista de pessoas a vários lugares do continente, para determinar quando e onde o Sahul caminhantes podem chegar.

terça-feira, 22 de outubro de 2024


Genoma antigo revela como as pessoas imigraram para o Japão

O genoma extraído de um esqueleto de 2.300 anos ajudou a mapear a imigração antiga para o arquipélago japonês.

greyscale photos of ancient skeleton and skull
Restos humanos do período Yayoi. Crédito: Kim et al 2024.

O Japão é habitado por pessoas desde cerca de 35.000 anos atrás. Há cerca de 16.500 anos, um grupo de caçadores-coletores neolíticos, conhecido como cultura “Jomon”, desenvolveu uma sociedade complexa que incluía a produção de cerâmica e joias.

Cerca de 3.000 anos atrás, o cultivo de arroz em arrozais foi introduzido no Japão. Isto marcou o início do período Yayoi, que terminou por volta do ano 300 dC. Depois do Yayoi veio o período Kofun (300–538 dC).

A nova pesquisa, publicada no Journal of Human Genetics , procurou compreender a dinâmica populacional por trás desta mudança.

“Havia várias hipóteses para explicar a história dos japoneses ”, escrevem os autores.

“Por exemplo, o 'modelo de transformação' postula que apenas a cultura, e não as pessoas, veio do continente. O ‘modelo de substituição’ sugere uma substituição completa do povo indígena Jomon pelo povo Yayoi, enquanto o ‘modelo de hibridização’ propõe a mistura entre o povo indígena Jomon e os imigrantes continentais.”

Os autores observam que o consenso atual baseado em evidências de DNA do povo japonês moderno é que houve uma mistura de duas ou três vias entre o povo indígena Jomon e uma ou duas outras fontes de imigração para o arquipélago durante os períodos Yayoi e Kofun.

“Os ancestrais relacionados ao Leste Asiático e ao Nordeste Asiático representam mais de 80% dos genomas nucleares da população japonesa moderna”, explica o investigador principal do novo estudo, Jun Ohashi, da Universidade de Tóquio. “No entanto, como a população japonesa adquiriu estes ancestrais genéticos – isto é, as origens da imigração – não é totalmente compreendida.”

A equipe de Ohashi analisou o genoma nuclear completo de um indivíduo desenterrado em um cemitério do período Yayoi, no sítio arqueológico de Doigahama. O local fica no extremo sudoeste da ilha principal do Japão, Honshu, a cerca de 800 km de Tóquio.

O genoma foi comparado com o de populações modernas e antigas em outras partes do Leste e Nordeste da Ásia.

Os pesquisadores encontraram uma grande semelhança entre o indivíduo Yayoi e os indivíduos Kofun que têm ancestrais distintos de Jomon, do Leste Asiático e do Nordeste Asiático.

Entre as populações modernas, o genoma Yayoi mais se assemelhava – com exceção do povo japonês moderno – às populações coreanas.

“Os nossos resultados sugerem que entre os períodos Yayoi e Kofun, a maioria dos imigrantes no arquipélago japonês originou-se principalmente da Península Coreana”, diz Ohashi.

map of japan with populations and dna
As raízes da imigração para o arquipélago japonês. Crédito: Kim et al 2024.

“Os resultados também significam que o modelo de mistura de três vias, que postula que um grupo do Nordeste Asiático migrou para o arquipélago japonês durante o período Yayoi e um grupo do Leste Asiático durante o período Kofun, está incorreto.

“Uma vez que o nosso estudo identificou as origens primárias dos imigrantes, o nosso próximo objectivo é examinar os genomas de mais indivíduos Yayoi para esclarecer por que mais de 80% dos componentes genómicos da população japonesa moderna são derivados da imigração e como a mistura entre O povo asiático continental e o povo indígena Jomon progrediram dentro do arquipélago japonês.

Translator


Genomas antigos do Norte de África evidenciam migrações pré-históricas para o Magrebe, tanto do Levante como da Europa

Editado por Anne C. Stone, Arizona State University, Tempe, AZ, e aprovado em 2 de abril de 2018 (recebido para revisão em 20 de fevereiro de 2018)
12 de junho de 2018
115 ( 26 ) 6774 - 6779

Significado

A aquisição de técnicas agrícolas durante a chamada revolução neolítica foi um dos principais avanços na história da humanidade. Utilizando sequenciação de última geração e técnicas de ADN antigo, testamos diretamente se a neolitização no Norte de África ocorreu através da transmissão de ideias ou por difusão démica. Mostramos que os marroquinos do Neolítico Inferior são compostos por um elemento endémico do Magrebi ainda retido nas actuais populações do Norte de África, assemelhando-se ao componente genético observado nas comunidades posteriores da Idade da Pedra de Marrocos. No entanto, os indivíduos do Neolítico Superior do Norte de África são misturados, com uma componente norte-africana e uma componente europeia. Os nossos resultados apoiam a ideia de que a neolitização do Norte de África envolveu tanto o desenvolvimento de comunidades epipaleolíticas como a migração de pessoas da Europa.

Resumo

Até que ponto as migrações pré-históricas de agricultores influenciaram o património genético dos norte-africanos ocidentais permanece incerto. Evidências arqueológicas sugerem que o processo de neolitização pode ter acontecido através da adoção de inovações por comunidades epipaleolíticas locais ou por difusão démica a partir da costa do Mediterrâneo Oriental ou da Península Ibérica. Aqui, apresentamos uma análise de sequências genômicas de indivíduos de locais do Neolítico Inferior e Final em Marrocos e de indivíduos do Neolítico Inferior do sul da Península Ibérica. Mostramos que os marroquinos do Neolítico Inferior (∼5.000 aC) são semelhantes aos indivíduos da Idade da Pedra Posterior da mesma região e possuem um elemento endêmico retido nas populações magrebinas atuais, confirmando uma continuidade genética de longo prazo na região. Este cenário é consistente com as tradições do Neolítico Inferior no Norte de África, derivadas de comunidades epipaleolíticas que adoptaram certas técnicas agrícolas de populações vizinhas. Entre as populações antigas da Eurásia, os marroquinos do Neolítico Inferior são parentes distantes dos caçadores-coletores natufianos levantinos (∼9.000 aC) e dos agricultores do Neolítico Pré-Cerâmica (∼6.500 aC). Os marroquinos do Neolítico Superior (~3.000 a.C.), em contraste, partilham uma componente ibérica, apoiando teorias do fluxo genético trans-Gibraltar e indicando que a neolitização do Norte de África envolveu tanto o movimento de ideias como de pessoas. Por último, as amostras do Neolítico Inferior do sul da Península Ibérica partilham a mesma composição genética da cultura do Neolítico Cardial Mediterrâneo que atingiu a Península Ibérica por volta de 5.500 aC. As semelhanças culturais e genéticas entre as tradições neolíticas ibéricas e norte-africanas reforçam ainda mais o modelo de migração ibérica para o Magrebe.
Uma das maiores transições na história da humanidade foi a transição do estilo de vida de caçador-coletor para a agricultura. A forma como as tradições agrícolas se expandiram a partir do seu local de nascimento no Crescente Fértil tem sido uma questão controversa. Foram propostos dois modelos: um envolvendo a circulação de pessoas; o outro baseado na transmissão de ideias. Ao longo da última década, a paleogenómica tem sido fundamental na resolução de questões arqueológicas há muito controversas ( 1 ), incluindo aquelas que rodeiam a revolução neolítica ( 2 ). Em comparação com o extenso trabalho genético realizado na Europa e no Próximo Oriente, a transição Neolítica no Norte de África, incluindo o Magrebe, permanece em grande parte descaracterizada. Evidências arqueológicas sugerem que algumas das principais inovações associadas ao Neolítico, como a agricultura e a produção de cerâmica, poderiam ter sido introduzidas no norte de Marrocos através de viagens marítimas por pessoas da Península Ibérica ou do Mediterrâneo central já por volta de 5.400 aC ( 3 , 4 ) . Na verdade, algumas das cerâmicas neolíticas registadas no Norte de África assemelham-se fortemente às culturas europeias, como o Neolítico Cardial Inferior (a cultura agrícola mediterrânica inicial localizada na Península Ibérica; ref. 5 ). No entanto, outras inovações, como algumas tradições de cerâmica e costumes técnicos ósseos e líticos, podem ser o resultado do desenvolvimento in situ de comunidades epipaleolíticas, indicando uma forte continuidade na população local desde o Pleistoceno Superior ) ( 6-10 .
Os dados genéticos das populações actuais ( 11 – 13 ) sugerem que a ascendência norte-africana tem contribuições de quatro fontes principais: ( i ) uma componente autóctone magrebina relacionada com uma migração de retorno para África, há cerca de 12.000 anos, vinda da Eurásia; ( ii ) uma componente do Médio Oriente provavelmente associada à conquista árabe; ( iii ) uma componente subsariana derivada das migrações transsaarianas; e ( iv ) uma componente europeia que tem estado ligada a movimentos históricos recentes. estudos paleogenómicos começaram a fornecer informações sobre a pré-história do Norte de África ( ) 14-16 Os , incluindo a análise de amostras posteriores da Idade da Pedra de Marrocos ( 17 ); no entanto, nenhuma investigação até à data testou se a transição neolítica no Magrebe foi impulsionada pelas populações locais que adoptaram inovações culturais e tecnológicas ou pela migração de pessoas. Aqui, realizamos análises genômicas de restos do sítio do Neolítico Inferior de Ifri n'Amr ou Moussa (IAM) (∼5.000 aC; n = 7) e do sítio do Neolítico Superior de Kelif el Boroud (KEB) (∼3.000 aC ; n = 8) ( Apêndice SI , Nota Complementar 1 ). Para testar possíveis migrações através do Estreito de Gibraltar, também analisamos restos humanos do sítio do Neolítico Inferior do sul da Península Ibérica de El Toro (TOR) (∼5.000 aC; n = 12) ( Fig. 1 ). Esta cultura ibérica do Neolítico Inferior assemelha-se a certas tradições magrebinas primitivas (por exemplo, decoração de cerâmica semelhante e produções semelhantes de ossos e ferramentas líticas), sugerindo uma influência norte-africana ( 18 ) ( Apêndice SI , Nota Suplementar 1 ). A inclusão destas amostras do sul da Península Ibérica na nossa análise permitiu um teste direto desta hipótese.
Figura 1.
Localização geográfica ( esquerda ) e data calibrada por radiocarbono ( direita ) das amostras incluídas neste estudo, bem como outras amostras de DNA antigas da literatura.

Resultados e Discussão

Sequenciamos 38 bibliotecas de pares Illumina de 27 indivíduos e selecionamos as bibliotecas mais bem conservadas para análises subsequentes. O conteúdo de DNA endógeno foi geralmente baixo (2,88% em média) ( Apêndice SI , Nota Complementar 2 ). A profundidade da cobertura foi consistentemente melhorada quando as amostras foram enriquecidas usando iscas visando locais específicos para o Multiethnic Genotyping Array (MEGA) (∼100×), em comparação com a captura do genoma completo (∼15×) ( Apêndice SI , Nota Complementar 2 ). Após o enriquecimento, geramos 13 genomas de baixa cobertura (cinco do IAM, quatro do KEB e quatro do TOR), com cobertura MEGA variando de 0,04× a 1,72× de profundidade e cobertura genômica variando de 0,01× a 0,74× de profundidade ( Apêndice SI , Tabela S1 ). Todas as amostras consideradas neste estudo atenderam aos critérios padrão de autenticação de DNA antigo (aDNA), incluindo observação de fragmentação de DNA (comprimento médio de leitura de ~ 46 pb) e padrões de danos devido à desaminação de citosina em direção às extremidades 5 'das moléculas ( Apêndice SI , Nota Suplementar 3 ).
DNA mitocondrial (mtDNA) e haplogrupos do cromossomo Y obtidos para IAM (Neolítico inicial marroquino) e KEB (Neolítico tardio marroquino) sugerem uma substituição populacional ou um importante influxo genético em Marrocos entre 5.000 e 3.000 aC. As amostras IAM pertencem aos haplogrupos de mtDNA U6a e M1 - ambos associados à migração de volta da Eurásia para a África nos tempos do Paleolítico Superior ( 19 , 20 ) e observados em indivíduos marroquinos da Idade da Pedra Posterior ( 17 ) - enquanto as amostras KEB pertencem a haplogrupos K1, T2 e X2, que são encontrados com destaque em amostras do Neolítico da Anatólia e da Europa ( 2 , 21 ) ( Apêndice SI , Nota Complementar 4 ). Em relação às linhagens paternas, os indivíduos IAM carregam cromossomos Y distantemente relacionados ao haplogrupo E-M81, tipicamente norte-africano, enquanto o cromossomo Y de KEB pertence ao haplogrupo T-M184; embora hoje escasso e amplamente distribuído, este haplogrupo também foi observado em indivíduos neolíticos europeus ( 16 ) ( Apêndice SI , Nota Complementar 5 ). Ambas as linhagens do mtDNA e do cromossomo Y (haplogrupos K1, J2 e T2 e haplogrupo G-M201, respectivamente) para amostras do TOR (Neolítico Inferior Ibérico) são semelhantes àquelas observadas na Europa durante o Neolítico ( 21 ).
Amostras antigas foram projetadas em um espaço de análise de componentes principais (PCA), que foi construído usando populações da África Subsaariana, do Norte da África, da Europa e do Oriente Médio do conjunto de dados do Projeto de Diversidade do Genoma Humano (HGDP) genotipado com MEGA. No PCA, as amostras do IAM são colocadas perto dos mozabitas (grupo berbere que habita os oásis Mʾzab do sul da Argélia), enquanto as amostras do Neolítico Ibérico caem perto das populações do sul da Europa ( Apêndice SI , Nota Suplementar 6 ). Como se suspeita a partir dos dados do mtDNA e do cromossomo Y, as amostras KEB não se agrupam com o IAM e são colocadas em uma posição intermediária entre o IAM e o TOR. Exploramos ainda mais a estrutura genética dessas amostras usando o programa ADMIXTURE ( 22 ) ( Apêndice SI , Nota Complementar 7 ). Em K = 5, o TOR é composto pela componente associada ao Neolítico Inferior Europeu e o IAM é composto pela componente Norte Africana observada nos Mozabitas. KEB é colocado em uma posição intermediária, com aproximadamente 50% de cada ancestral europeu do Neolítico Inferior e do Norte da África. Vale a pena mencionar que, em comparação com as amostras actuais do Norte de África, o IAM e o KEB não mostram qualquer ascendência da África Subsariana na análise MEGA-HGDP ADMIXTURE, sugerindo que as migrações transsaarianas ocorreram após o Neolítico. Isto pode estar de acordo com a análise dos dados atuais do genoma de Marrocos, que estimou uma migração de origem da África Ocidental para Marrocos apenas há cerca de 1.200 anos ( 11 ).
As populações da Eurásia Ocidental podem ser modeladas como a mistura de quatro componentes ancestrais diferentes ( 2 ): caçadores-coletores da Europa Oriental e Ocidental e Neolítico iraniano e levantino. Exploramos a colocação de amostras do Neolítico Marroquino e do Sul da Península Ibérica neste contexto e comparamos suas afinidades genéticas com as populações antigas e atuais da Eurásia Ocidental e do Levante no painel Origens Humanas, bem como com outros dados populacionais de aDNA disponíveis. Curiosamente, o PCA revelou que os indivíduos IAM são semelhantes às amostras da Idade da Pedra Posterior da África do Norte do sítio Taforalt em Marrocos, datadas de 15.000 anos atrás ( Fig. 2 e Apêndice SI , Nota Complementar 6 ). Quando projetadas, as amostras do IAM estão a meio caminho entre Taforalt e os modernos norte-africanos, no canto levantino do espaço PCA ( Fig. 2 ). Indivíduos do Neolítico do Sul da Península Ibérica do agrupamento TOR com os Sardenhas e com outras amostras do Neolítico da Anatólia e da Europa. Além disso, as amostras KEB são colocadas a meio caminho entre os agrupamentos de agricultores do IAM e da Anatólia/Europa, em estreita proximidade com as amostras de aDNA do Levante e também com as amostras de Guanche ( 16 ) (da população indígena das Ilhas Canárias conhecida por ter origem berbere; ref. 23 ). Quando comparadas usando ADMIXTURE ( Apêndice SI , Nota Complementar 7 ), as amostras IAM possuem ∼100% de um componente parcialmente compartilhado por amostras de aDNA do Levante ( Fig. 2 ). Este componente semelhante ao IAM é observado principalmente em indivíduos modernos do Norte da África, seguindo um cline oeste-leste, e nos Guanches. Curiosamente, os indivíduos do Neolítico Inferior da Península Ibérica formam um aglomerado diferente das amostras do Neolítico Inferior da Anatólia, do Egeu e da Europa, partilhando a sua componente principal com amostras do Neolítico Médio/Calcolítico. Por último, o KEB pode ser explicado como tendo componentes do tipo IAM e do Neolítico Ibérico ( Fig. 2 ). O mesmo perfil de mistura é observado nas amostras de Guanche, mas a quantidade de ancestralidade IAM é consistentemente maior em todas as amostras. Dado que os Guanches poderiam ter tido origem numa área diferente do Magrebe, este resultado pode sugerir que o impacto neolítico europeu no Norte de África foi heterogéneo.
Figura 2.
Inferência de ancestralidade em amostras antigas do Norte de África e da Península Ibérica (os códigos populacionais antigos são como na Fig. 1 ). ( A ) Análise PCA usando o painel Human Origins (populações europeias, do Oriente Médio e do Norte da África) e projeção LASER de amostras de aDNA. ( B ) Análise ADMIXTURE usando o conjunto de dados Human Origins (populações europeias, do Oriente Médio e do Norte da África) para amostras modernas e antigas (K = 8). ( C ) Gráfico detalhado de ADMIXTURE para amostras neolíticas europeias de análises anteriores (K = 8). ( D ) Detalhe da análise ADMIXTURE usando o conjunto de dados Human Origins (populações europeias, do Oriente Médio, do Norte da África e da África Subsaariana) para amostras modernas e antigas, incluindo Taforalt.
A análise recente de aDNA de amostras marroquinas da Idade da Pedra Posterior do local de Taforalt indica que pelo menos um terço da ancestralidade de Taforalt deriva de populações da África Subsaariana. Quando as amostras de Taforalt e da África Subsaariana são incluídas na análise de agrupamento não supervisionada ( Apêndice SI , Nota Complementar 7 ), observamos que IAM e Taforalt se agrupam em K = 7, conforme observado para a análise MEGA-HGDP ADMIXTURE. No entanto, conforme relatado por van de Loosdrecht et al. ( 17 ) para Taforalt, podemos detectar componentes da África Ocidental (maximizada em Gambianos e Yoruba) e da África Oriental (maximizada em Hazda) no IAM com valores K mais baixos. Em contraste, o TOR não mostra qualquer ascendência da África Subsariana e o KEB está novamente numa posição intermédia, com ascendência da África Subsariana inferior à do IAM. 
 
Para comparar nossas amostras diretamente com os genomas de populações antigas e modernas, calculamos as distâncias do índice de fixação de pares (F ST ), que, diferentemente do PCA e das análises de ancestralidade global, são insensíveis à inclusão de um grande número de indivíduos de populações modernas. Os valores de F ST (indicados entre parênteses) indicam que as amostras do IAM são tão diferenciadas de todas as outras populações quanto os iorubás são dos não-africanos ( Apêndice SI , Nota Suplementar 9 ), com exceção de Taforalt (0,049) e, em menor grau , KEB (0,090; semelhante à distância entre Yoruba e Mbuti), os Guanches (0,125; semelhante à distância entre Somali e Mbuti) e as populações modernas do Norte de África (0,115 a 0,138). O mesmo padrão é observado para amostras de Taforalt, que mostra sua menor distância F ST com IAM, seguido novamente por KEB (0,129), os Guanches (0,150) e os modernos norte-africanos (0,130 a 0,149). Dada a heterozigosidade relativamente baixa e as altas proporções de identidade por descendência observadas no IAM ( Apêndice SI , Nota Complementar 8 ), esta diferenciação pode ser impulsionada pelo isolamento e deriva genética. O IAM é divergente das outras populações, com exceção de populações que poderiam ter compartilhado a deriva genética com eles ou recebido influxo genético deles. Isto levanta a possibilidade de que as pessoas Taforalt/IAM estivessem isoladas no Norte de África desde os tempos paleolíticos, quando uma migração de regresso da Eurásia trouxe os haplogrupos M1 e U6 do mtDNA para o Magrebe ( 19 ). Embora o IAM seja claramente mais semelhante ao KEB do que a maioria das populações, o inverso não é verdadeiro. KEB tem distâncias F ST mais baixas com populações antigas da Anatólia (0,032), armênia (0,025 a 0,053), europeia (0,036 a 0,041, excluindo caçadores-coletores europeus), levantina (0,020 a 0,079) e iraniana (0,081 a 0,081), como em comparação com o IAM. No painel de referência de DNA moderno, o KEB é semelhante às populações do Norte de África, da Europa e do Médio Oriente. Entre as populações antigas, o TOR é mais semelhante aos europeus do Neolítico Médio/Calcolítico (0,029 a 0,031) e, entre as populações modernas, o TOR é mais semelhante aos da Espanha, norte da Itália e Sardenha.
Para investigar melhor as afinidades genéticas das amostras IAM, KEB e TOR, conduzimos análises estatísticas f3 de grupo externo ( 24 ). Ao usar uma população externa que não experimentou nenhum fluxo gênico pós-divergência com nenhuma das populações comparadas, a estatística f3 calculada na forma f3(PopA, PopB; grupo externo) nos permite determinar a quantidade de deriva compartilhada entre duas populações, PopA e PopB. Selecionamos a população Ju'hoan como grupo externo e comparamos nossas três populações antigas (IAM, KEB e TOR) com todas as populações antigas no painel Origens Humanas, bem como as amostras de Taforalt e Guanche. Os maiores valores de f3 para IAM são observados para Taforalt (0,3060) e KEB (0,2296). Consistente com resultados anteriores, quando Taforalt, KEB e Guanches (f3 = 0,2196) são excluídos, o IAM compartilha mais deriva com populações levantinas antigas, como comunidades epipaleolíticas (natufianos; f3 = 0,2296) e indivíduos neolíticos pré-cerâmicos (f3 = 0,2167). ) ( Fig. 3 e Apêndice SI , Nota Complementar 10 ), do que com qualquer outra população antiga. Isto confirma resultados anteriores para Taforalt ( 17 ) indicando uma intrusão levantina no Norte de África em tempos paleolíticos. Para explorar ainda mais a conexão entre as populações do IAM e do Levante, realizamos uma análise estatística f4 para testar se o IAM compartilha mais alelos com qualquer outra população no painel Origens Humanas ( 2 , 25 ) do que com populações antigas do Levante ( SI Apêndice , Nota Complementar 10 ). Quando calculado na forma f4 (IAM, chimpanzé; população levantina, população africana), um valor estatístico f4 positivo indicaria que a população de teste compartilha mais alelos com o levantino do que com as populações africanas. Consistentemente, todas as comparações produziram valores positivos significativos e indicaram uma maior similaridade do IAM com os agricultores natufianos e levantinos. Isto sugere que a maior parte da ancestralidade do IAM se origina de uma fonte fora da África, já que o IAM compartilha mais alelos com os levantinos do que com qualquer africano subsaariano, incluindo o genoma de 4.500 anos da Etiópia ( 14 ). Para testar ainda mais a hipótese de que o IAM está mais intimamente relacionado com populações fora de África, determinamos se poderíamos detectar a ascendência neandertal no IAM, o que é típico de populações não africanas. Um sinal de ascendência Neandertal foi detectado nas populações modernas do Norte de África ( 26 ). A falta de ascendência neandertal no IAM implicaria que o sinal observado hoje é um produto da migração mais recente do Médio Oriente e da Europa para o Norte de África em tempos históricos. Comparado com a sequência do genoma de alta cobertura do Neandertal de Altai ( 27 ) e a sequência de baixa cobertura da Caverna Vindija ( 28 ), e usando a estatística S ( 24 ), detectamos um sinal de introgressão do Neandertal no IAM, sugerindo derivação do mesmo evento partilhada por populações não africanas ( Apêndice SI , Nota Suplementar 10 ).
Figura 3.
Estatística f3 do grupo externo para IAM ( A ), KEB ( B ) e TOR ( C ); estatística f4 de mistura para IAM ( D ) e estatística f3 de mistura para KEB ( E ).
As distâncias F ST e outgroup-f3 indicam uma alta similaridade entre IAM e Taforalt. Conforme observado para o IAM, a maior parte da ancestralidade da amostra de Taforalt deriva de populações epipaleolíticas do Levante. No entanto, van de Loosdrecht et al. ( 17 ) também relataram que um terço da ascendência Taforalt era de origem da África Subsaariana. Para confirmar se os indivíduos do IAM apresentam um componente da África Subsaariana, calculamos f4 (chimpanzé, população africana; Natufian, IAM) de tal forma que um resultado positivo para f4 indicaria que o IAM é composto por ancestrais levantinos e africanos. Consistente com os resultados observados para Taforalt, os valores de f4 são significativamente positivos para as populações da África Ocidental, com o valor mais elevado observado para Gâmbia e Mandenka ( Fig. 3 e Apêndice SI , Nota Complementar 10 ). Juntos, esses resultados indicam a presença dos mesmos componentes ancestrais em populações de Marrocos com aproximadamente 15.000 e 7.000 anos de idade, sugerindo fortemente uma continuidade temporal entre as populações da Idade da Pedra Posterior e do Neolítico Inferior no Magrebe. No entanto, é importante ter em conta que o número de genomas antigos disponíveis para comparação ainda é baixo e a amostragem futura pode fornecer um refinamento adicional na história evolutiva do Norte de África.
As análises estatísticas F ST e outgroup-f3 indicam que KEB compartilha ancestralidade com IAM, bem como mais deriva genética com populações do Neolítico e Calcolítico da Anatólia e da Europa, com a maior deriva genética compartilhada aparecendo em amostras do Neolítico Inferior Ibérico ( Fig. 3 e Apêndice SI , Nota Complementar 10 ). Este padrão e o resultado do ADMIXTURE poderiam ser explicados se a população KEB fosse uma mistura entre grupos relacionados com o IAM e grupos neolíticos europeus. Para testar formalmente esta hipótese, utilizamos um teste de mistura f3 ( 24 ). Quando calculado na forma f3(PopA, PopB; alvo), um valor negativo da estatística f3 é indicativo de que a população alvo é uma mistura das populações PopA e PopB. Para a nossa análise, utilizamos KEB como população de teste, IAM como população de referência e uma das populações Neolítica e Calcolítica da Anatólia e da Europa como segunda população de referência. Todas as comparações produziram valores negativos da estatística f3, o que sugere que a população KEB pode ser modelada como uma mistura de IAM e Neolítico Anatólio/Europeu.
TOR tem ascendência mais compartilhada com amostras ibéricas do Neolítico Inferior e outras populações do Neolítico e Calcolítico da Europa. Estudos arqueológicos sugeriram que existia uma cultura andaluza do Neolítico Inferior com influências do Norte de África antes da expansão Cardial na bacia do Mediterrâneo Ocidental ( 29 ). No entanto, observamos que as amostras TOR têm uma composição genética semelhante à dos indivíduos Cardial da Península Ibérica, evidenciando uma origem comum e descartando um Neolítico Inferior Andaluz distinto da cultura Cardial.
Por último, embora limitadas pela baixa cobertura, as previsões fenotípicas baseadas em variantes genéticas de efeitos conhecidos concordam com as nossas estimativas de ancestralidade global. As pessoas do IAM não possuíam nenhum dos SNPs europeus associados à pigmentação clara e provavelmente tinham pele e olhos escuros. As amostras IAM contêm alelos ancestrais para variantes associadas à pigmentação presentes nos SLC24A5 (rs1426654), SLC45A2 (rs16891982) e OCA2 genes (rs1800401 e 12913832). Por outro lado, os indivíduos KEB exibem alguns alelos de origem europeia que predispõem os indivíduos a ter pele e olhos mais claros, incluindo aqueles nos genes SLC24A5 (rs1426654) e OCA2 (rs1800401) ( SI Apêndice , Nota Complementar 11 ).

Conclusão

As análises genéticas revelaram que a história populacional dos modernos norte-africanos é bastante complexa ( 11 ). Com base na nossa análise de aDNA, identificamos um componente marroquino do Neolítico Inferior que é ( i ) restrito ao Norte da África nas populações atuais ( 11 ); ( ii ) a única ancestralidade nas amostras do IAM; e ( iii ) semelhante ao observado em amostras posteriores da Idade da Pedra em Marrocos ( 17 ). Concluímos que esta componente, distantemente relacionada com a das comunidades epipaleolíticas do Levante, representa a ancestralidade autóctone magrebina associada às populações berberes. Nossos dados sugerem que as populações humanas foram isoladas no Magreb desde os tempos do Paleolítico Superior. A nossa hipótese está de acordo com pesquisas arqueológicas que apontam para a primeira fase da expansão neolítica em Marrocos como resultado de uma população local que adotou algumas inovações tecnológicas, como a produção de cerâmica ou a agricultura, de áreas vizinhas. 
 
Por volta de 3.000 aC, uma continuidade na propagação do Neolítico trouxe ancestrais do tipo mediterrâneo para o Magrebe, provavelmente da Península Ibérica. Outros vestígios arqueológicos, como o marfim de elefante africano e os ovos de avestruz encontrados em sítios ibéricos, confirmam a existência de contactos e redes de intercâmbio através de ambos os lados do estreito de Gibraltar nesta altura. 
 
As nossas análises apoiam fortemente que pelo menos parte da ancestralidade europeia observada hoje no Norte de África está relacionada com migrações pré-históricas, e as populações berberes locais já estavam misturadas com europeus antes da conquista romana. Além disso, ancestrais europeus/ibéricos adicionais poderiam ter alcançado o Magrebe depois do povo KEB; este cenário é apoiado pela presença de cerâmica Bell-Beaker de tipo ibérico em camadas estratigráficas mais recentes das cavernas IAM e KEB. Os futuros esforços paleogenómicos no Norte de África irão desvendar ainda mais a complexa história das migrações que forjaram a ancestralidade das populações misturadas que observamos hoje.

Materiais e métodos

Medidas para evitar e monitorar a contaminação do DNA moderno foram aplicadas, em todos os momentos, durante a manipulação das amostras. O aDNA foi extraído de dentes ou ossos, construído em bibliotecas indexadas de fita dupla e sequenciado em um Illumina NextSeq 500 ( Apêndice SI , Nota Complementar 2 ). Devido às condições ambientais dos cemitérios, esperávamos recuperar baixas proporções de DNA endógeno desses vestígios antigos. Para superar as limitações devido à degradação do DNA, aplicamos dois métodos de captura diferentes para enriquecer leituras humanas ( Apêndice SI , Nota Complementar 2 ), com um visando todo o genoma ( 30 ) e outro visando as variantes do array MEGA (Illumina).
As leituras foram aparadas e os adaptadores removidos usando AdapterRemoval ( 31 ) e depois mapeados para o genoma de referência humano (hg19) usando Burrows-Wheeler Aligner ( 32 ). Leituras de baixa qualidade (valor de qualidade de mapeamento <30) e duplicadas foram removidas usando SAMtools ( 33 ). MapDamage ( 34 ) foi usado para visualizar padrões de incorporação incorreta e fragmentação e para redimensionar a qualidade das bases provavelmente afetadas por danos post-mortem. Os intervalos de confiança para determinação do sexo foram calculados seguindo Skoglund et al. ( 35 ). Os haplogrupos de mtDNA foram determinados usando HaploGrep ( 36 ). A inferência de haplogrupos do cromossomo Y foi realizada como em Schroeder et al. ( 37 ). Como painel de referência, utilizamos o painel Human Origins ( 2 ) e o conjunto de dados HGDP genotipado com MEGA-ex (Illumina). Para PCA, projetamos as amostras de aDNA no espaço PCA construído com o conjunto de dados moderno, usando LASER ( 38 ) e a opção lsqproject do smartpca ( 39 ). Para projeção PCA utilizando LASER, a análise foi realizada sem chamada de SNP. Resumidamente, os dados de sequência para cada população de referência foram simulados para corresponder à cobertura do arquivo aDNA bam, e o espaço PCA foi construído com base no conjunto de dados de referência simulado juntamente com a amostra de aDNA. Em seguida, o clustering de baixa cobertura foi projetado no espaço PCA de referência de cobertura total usando a análise de Procrustes. Para projeção de PCA usando smartpca e análises subsequentes, a chamada de SNP foi realizada com empilhamento SAMtools para obter a lista de variantes presentes no HGDP ou no painel Human Origins, filtrando bases com BASEQ >30, aparando 4 pb em ambas as extremidades e mantendo um alelo ao acaso. As estimativas de mistura foram realizadas usando o software ADMIXTURE ( 22 ). As distâncias F ST foram calculadas usando smartpca ( 39 ). As proporções de identidade por descendência foram estimadas usando PLINK ( 40 ), e estimativas de heterozigosidade foram produzidas usando um método recentemente desenvolvido para genomas de baixa cobertura ( SI Apêndice , Nota Complementar 8 ). As estimativas das estatísticas f foram calculadas usando o software admixtools ( 24 ). Todas as parcelas foram preparadas usando o software R ( 41 ). Informações detalhadas sobre os métodos estão incluídas no Apêndice SI .

Disponibilidade de dados

Deposição de dados: Os dados de sequência estão disponíveis através do European Nucleotide Archive ( PRJEB22699 ). Sequências de consenso de mtDNA estão disponíveis no Centro Nacional de Informações sobre Biotecnologia (números de acesso MF991431 – MF991448 ).

Agradecimentos

O CDB e a RF foram financiados por uma doação da National Science Foundation (1201234); RF foi financiado por uma bolsa da Fundación Canaria Dr. Manuel Morales; MDC-M. e DM-S. foram financiados pela bolsa HAR2016-78197-P do Ministério da Economia e Competitividade da Espanha; A AERS foi financiada por uma bolsa Ciência sem Fronteiras da Agência Federal Brasileira de Apoio e Avaliação da Pós-Graduação; e BS e JK foram financiados por uma doação da Fundação Gordon e Betty Moore (GBMF-3804).

Informações de apoio

Apêndice (PDF)

Referências

1
R Nielsen, et al., Rastreando o povoamento do mundo através da genômica. Natureza 541 , 302–310 (2017).
2
I Lazaridis, et al., Informações genômicas sobre a origem da agricultura no antigo Oriente Próximo. Natureza 536 , 419–424 (2016).
3
J Linstädter, I Medved, M Solich, GC Weniger, Processo de neolitização no território alboriano: modelos e possível impacto africano. Quat Int 274 , 219–232 (2012).
4
J Zilhão, Navegação pré-histórica no Mediterrâneo Ocidental: Implicações para a transição neolítica na Península Ibérica e no Magrebe. Pré-história da Eurásia 11 , 185–200 (2014).
5
RM Martinez-Sanchez, JC Vera-Rodriguez, G Perez-Jordà, L Peña-Chocarro, Y Bokbot, O início do Neolítico no noroeste de Marrocos. Quat Int 470 , 485–496 (2018).
6
S Mulazzani, et al., O surgimento do Neolítico no Norte da África: Um novo modelo para o Magrebe oriental. Quat Int 410 , 123–143 (2016).
7
N Barton, et al., Evidências de sepultamento humano da Caverna Hattab II e a questão da continuidade nas práticas mortuárias do final do Pleistoceno-Holoceno no Noroeste da África. Camb Archaeol J. 18 , 195–214 (2008).
8
D Lubell, P Sheppard, M Jackes, Continuidade no Epipalaeolítico do norte da África com ênfase no Magrebe. Avanços na Arqueologia Mundial , eds F Wendorf, A Close (Academic, Nova York), pp.
9
J Linstädter, transição Epipalaeolítica-Neolítica na região mediterrânea do noroeste da África. Quarto 55 , 41–62 (2008).
10
I de Groote, LT Humphrey, Caracterizando a evulsão no Magreb da Idade da Pedra Posterior: Idade, sexo e efeitos na mastigação. Quat Int 413 , 50–61 (2016).
11
BM Henn, et al., Ancestralidade genómica dos norte-africanos apoia as migrações de regresso a África. PLoS Genet 8 , e1002397 (2012).
12
LR Arauna, et al., As migrações históricas recentes moldaram o património genético dos árabes e berberes no Norte de África. Mol Biol Evol 34 , 318–329 (2017).
13
K Fadhlaoui-Zid, et al., A diversidade genômica e paterna revela uma origem recente das populações humanas no Norte da África. PLoS One 8 , e80293 (2013).
14
M Gallego Llorente, et al., Antigo genoma etíope revela extensa mistura eurasiana em todo o continente africano. Ciência 350 , 820–822 (2015).
15
VJ Schuenemann, et al., Genomas de múmias egípcias antigas sugerem um aumento da ancestralidade da África Subsaariana em períodos pós-romanos. Nat Commun 8 , 15694 (2017).
16
R Rodriguez-Varela, et al., Análises genômicas de restos humanos pré-conquista europeus das Ilhas Canárias revelam grande afinidade com os modernos norte-africanos. Curr Biol 27 , 3396–3402.e3395 (2017).
17
M van de Loosdrecht, et al., Os genomas do Pleistoceno do Norte da África ligam as populações humanas do Oriente Próximo e da África Subsaariana. Ciência 360 , 548–552 (2018).
18
P Garcia-Borja, JE Aura-Tortosa, J Bernabeu-Auban, JF Jorda-Pardo, Novas perspectivas sobre a neolitização na caverna de Nerja (Málaga-Espanha): A cerâmica do vestíbulo. Zéfiro LXVI , 109–132 (2010).
19
E Pennarun, et al., Divorciando as histórias demográficas do Paleolítico Superior Superior dos haplogrupos M1 e U6 do mtDNA na África. BMC Evol Biol 12 , 234 (2012).
20
B Secher, et al., A história do fluxo gênico do haplogrupo U6 do DNA mitocondrial do norte da África para os continentes africano, euro-asiático e americano. BMC Evol Biol 14 , 109 (2014).
21
W Haak, et al., Ancient DNA from European Early Neolithic farmers revela suas afinidades com o Oriente Próximo. PLoS Biol ; Membros do Consórcio Genográfico 8 , e1000536 (2010).
22
DH Alexander, J Novembre, K Lange, Estimativa rápida de ancestralidade baseada em modelo em indivíduos não aparentados. Genoma Res 19 , 1655–1664 (2009).
23
N Maca-Meyer, et al., Análise de mtDNA antigo e a origem dos Guanches. Eur J Hum Genet 12 , 155–162 (2004).
24
N Patterson, et al., Mistura antiga na história humana. Genética 192 , 1065 (2012).
25
I Lazaridis, et al., Genomas humanos antigos sugerem três populações ancestrais para os europeus atuais. Natureza 513 , 409–413 (2014).
26
F Sánchez-Quinto, et al., as populações norte-africanas carregam a assinatura da mistura com os neandertais. PLoS One 7 , e47765 (2012).
27
K Prufer, et al., A sequência completa do genoma de um Neandertal das montanhas Altai. Natureza 505 , 43–49 (2014).
28
RE Green, et al., Um rascunho de sequência do genoma do Neandertal. Ciência 328 , 710–722 (2010).
29
M Cortes Sanchez, et al., A transição Mesolítico-Neolítico no sul da Península Ibérica. Quat Res 77 , 221–234 (2012).
30
ML Carpenter, et al., Retirando 1%: Captura do genoma completo para o enriquecimento direcionado de antigas bibliotecas de sequenciamento de DNA. Am J Hum Genet 93 , 852–864 (2013).
31
S Lindgreen, AdapterRemoval: Fácil limpeza de leituras de sequenciamento de próxima geração. BMC Res Notas 5 , 337 (2012).
32
H Li, R Durbin, Alinhamento de leitura curta rápido e preciso com transformação de Burrows-Wheeler. Bioinformática 25 , 1754–1760 (2009).
33
H Li, et al., O alinhamento de sequência/formato de mapa e SAMtools. Bioinformática ; de processamento de dados do Projeto Genoma 1000 Subgrupo 25 , 2078–2079 (2009).
34
A Ginolhac, M Rasmussen, MT Gilbert, E Willerslev, L Orlando, mapDamage: Teste de padrões de danos em sequências de DNA antigas. Bioinformática 27 , 2153–2155 (2011).
35
P Skoglund, J Stora, A Gotherstrom, M Jakobsson, Identificação sexual precisa de restos humanos antigos usando sequenciamento de espingarda de DNA. J Archaeol Sci 40 , 4477–4482 (2013).
36
A Kloss-Brandstätter, et al., HaploGrep: Um algoritmo rápido e confiável para classificação automática de haplogrupos de DNA mitocondrial. Hum Mutat 32 , 25–32 (2011).
37
H Schroeder, et al., Ancestralidade em todo o genoma dos africanos escravizados do Caribe no século XVII. Proc Natl Acad Sci EUA 112 , 3669–3673 (2015).
38
C Wang, et al., Estimativa de ancestralidade e controle de estratificação populacional para estudos de associação baseados em sequência. Nat Genet ; Estudo FUSION 46 , 409–415 (2014).
39
AL Price, et al., A análise de componentes principais corrige a estratificação em estudos de associação genômica ampla. Nat Genet 38 , 904–909 (2006).
40
S Purcell, et al., PLINK: Um conjunto de ferramentas para associação de genoma completo e análises de ligação baseadas em população. Am J Hum Genet 81 , 559–575 (2007).
41
; R Development Core Team, R: Uma linguagem e ambiente para computação estatística, ISBN 3-900051-07-0 (R Foundation for Statistical Computing, Viena)., Disponível em www.R-project.org . Acessado em 6 de março de 2017. (2008).