Mostrando postagens com marcador Sivapithecus. Mostrar todas as postagens

sexta-feira, 1 de janeiro de 2021


Sivapithecus, o primata também conhecido como Ramapithecus 

Sivapithecus ramapithecus 

Sivapithecus, também conhecido como Ramapithecus (Getty Images).  

Sivapithecus ocupa um lugar importante no fluxograma evolutivo dos primatas pré - históricos : este macaco esguio, com um metro e meio de comprimento, marcou a época em que os primeiros primatas desceram do abrigo reconfortante de árvores e começaram a explorar as pastagens abertas. O Sivapithecus do final do Mioceno possuía pés semelhantes aos de chimpanzés com tornozelos flexíveis, mas, fora isso, lembrava um orangotango, ao qual pode ter sido diretamente ancestral. (Também é possível que as características semelhantes a orangotangos do Sivapithecus surgiram por meio do processo de evolução convergente, a tendência dos animais em ecossistemas semelhantes de desenvolver características semelhantes). Mais importante, da perspectiva dos paleontólogos, eram a forma dos dentes de Sivapithecus. Os grandes caninos e molares fortemente esmaltados desse primata apontam para uma dieta de tubérculos e caules duros (como os encontrados nas planícies abertas), em vez de frutos tenros (como os encontrados nas árvores).

Sivapithecus está intimamente associado ao Ramapithecus, um gênero hoje rebaixado de primata da Ásia Central, descoberto no Nepal, que já foi considerado um ancestral direto dos humanos modernos. Acontece que a análise dos fósseis originais do Ramapithecus era falha e que esse primata era menos semelhante ao humano e mais semelhante ao orangotango do que se pensava inicialmente, para não mencionar perturbadoramente semelhante ao Sivapithecus anteriormente chamado. Hoje, a maioria dos paleontólogos acredita que os fósseis atribuídos a Ramapithecus na verdade representam as fêmeas ligeiramente menores do gênero Sivapithecus (a diferenciação sexual não é uma característica incomum de macacos e hominídeos ancestrais) e que nenhum dos gêneros foi um ancestral direto do Homo sapiens .

Espécies de Sivapithecus / Ramapithecus

Existem três espécies nomeadas de Sivapithecus, cada uma datando de períodos de tempo ligeiramente diferentes. A espécie-tipo, S. indicus , descoberta na Índia no final do século 19, viveu de cerca de 12 milhões a 10 milhões de anos atrás; uma segunda espécie. S. sivalensis , descoberto no norte da Índia e no Paquistão no início dos anos 1930, viveu de cerca de nove a oito milhões de anos atrás; e uma terceira espécie, S. parvada , descoberta no subcontinente indiano na década de 1970, era significativamente maior do que as outras duas e ajudou a estabelecer as afinidades de Sivapithecus com orangotangos modernos.

Você deve estar se perguntando como um hominídeo como Sivapithecus (ou Ramapithecus) foi parar na Ásia, entre todos os lugares, visto que o ramo humano da árvore evolutiva dos mamíferos se originou na África? Bem, esses dois fatos não são inconsistentes: pode ser que o último ancestral comum do Sivapithecus e do Homo sapiens tenha de fato vivido na África e seus descendentes tenham migrado para fora do continente durante a Era Cenozóica. Isso tem muito pouca relação com um debate acalorado que está acontecendo agora sobre se os hominídeos, de fato, surgiram na África; infelizmente, essa disputa científica foi maculada por algumas acusações bem fundadas de racismo ("é claro" não viemos da África, dizem alguns "especialistas", já que a África é um continente tão atrasado).

Nome:

Sivapithecus (grego para "macaco Siva"); pronunciado SEE-vah-pith-ECK-us

Habitat:

Bosques da Ásia Central

Época Histórica:

Mioceno médio tardio (12-7 milhões de anos atrás)

Tamanho e peso:

Cerca de cinco metros de comprimento e 50-75 libras

Dieta:

Plantas

Características diferenciadoras:

Pés de chimpanzé; pulsos flexíveis; caninos grandes


quarta-feira, 15 de abril de 2020

Gigantopithecus, orangutanes y paleoproteómica

Este artículo resume nuestro conocimiento sobre el mayor primate que ha existido. El estudio de su morfología tradicionalmente relacionaba a este ser con los ponginos, cuyos únicos representantes actuales son los orangutanes (existen tres especies de ellos) y, gracias a la paleoproteómica, en 2019 se ha confirmado ese vínculo filogenético de Gigantopithecus con Pongo. Comencemos un pequeño viaje por el este asiático…

Este artigo resume o novo conhecimento sobre o prefeito primata que existe. O estúdio de morfologia tradicionalmente relaciona-se a este com os ponginos, cukos únicos identificados reais nos orangotangos (existem espécies especiais de ellos) e, gracias à paleoproteómica, em 2019, se você confirmar o vínculo filogenético de Gigantopithecus com Pongo. Comece um passeio por este asiático…
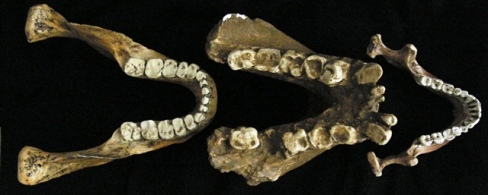
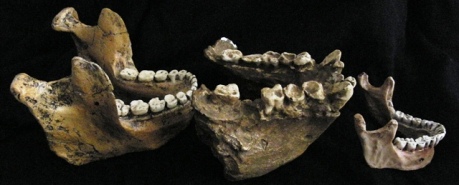
Comparación Nutcracker Man (Paranthropus boisei, izda) vs. Gigantophitecus blacki (centro) vs. Humano moderno (dcha). Foto: Roberto Sáez

Um pouco de história

  • El primer hallazgo fue en 1935, cuando el paleoantropólogo alemán Ralph von Koenigswald se topó con un molar fósil de gran tamaño en una farmacia de Hong Kong, que identificó como perteneciente a una especie primate desconocida. En los siguientes cuatro años encontró tres molares más en Hong Kong y Guangzhou. Con ellos, definió una nueva especie Gigantopithecus blacki.
A primeira descoberta foi em 1935, quando o paleoantropólogo alemão Ralph von Koenigswald encontrou um grande molar fóssil em uma farmácia de Hong Kong, que ele identificou como pertencente a uma espécie desconhecida de primatas. Nos quatro anos seguintes, ele encontrou mais três molares em Hong Kong e Guangzhou. Com eles, ele definiu uma nova espécie Gigantopithecus blacki.
  • Liucheng
    Liucheng
    Tras la II Guerra Mundial en los años 50 se abordó la búsqueda del lugar de origen de los fósiles. Dos de los investigadores de Peking Man (1929, Zhoukoudian) encontraron a partir de 1957 en Liucheng (China) cientos de dientes y tres fragmentos de mandíbula inferior, además de varios fósiles de mamíferos enanos. Este yacimiento se estima en 1 Ma de antigüedad.
  • En los 60 se descubrieron dientes aún mayores pero en un yacimiento (Wuming) que es 300-400 Ka. más joven que Liucheng. Esto sugiere que Gigantopithecus siguió una tendencia similar a otros mamíferos que incrementaron su tamaño según evolucionaron durante el Pleistoceno.
  • Además en 1968 se descubrieron dientes y fragmentos de mandíbula mucho más antiguos (6,3 Ma) y de la mitad de tamaño, por lo que se asignaron a una especie distinta, Gigantopithecus giganteus.

¿Cómo era?

Solo se conservan dientes y fragmentos de mandíbulas.
Mandíbula
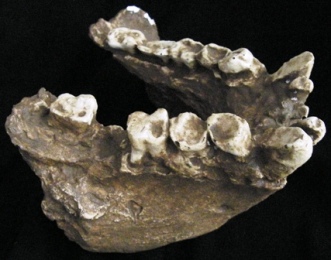
Mandíbula de Gigantophitecus blacki. Foto: Roberto Sáez
  • Las mandíbulas son muy profundas verticalmente y gruesas.
  • Los molares son planos y de coronas bajas, con esmalte muy grueso para moler.
  • Los premolares son anchos y planos, semejantes a los molares.
  • Los caninos no tienen forma de punta sino que recuerdan a premolares, y los incisivos son pequeños y muy juntos. En conjunto, conforman una herramienta de corte parecida a la de algunas especies de perezosos actuales.
  • Todo indica la adaptación al corte, masticación y molienda de alimentos duros y fibrosos. Se han encontrado incrustaciones de fitolitos que sugieren el bambú como alimento básico, pero no exclusivo.
  • As mandíbulas são muito profundas verticalmente e grossas.
        Os molares são planos e têm coroas baixas, com esmalte muito grosso para retificação.
        Os pré-molares são largos e planos, semelhantes aos molares.
        Os caninos não são pontudos, mas lembram pré-molares, e os incisivos são pequenos e próximos. Juntos, eles formam uma ferramenta de corte semelhante à de algumas espécies de preguiças atuais.
        Tudo indica a adaptação ao corte, mastigação e moagem de alimentos duros e fibrosos. Inlays de fitólitos foram encontrados sugerindo bambu como alimento básico, mas não exclusivo
    .
Reproducción
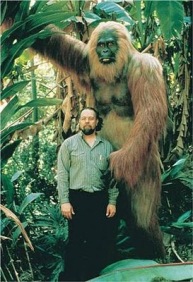
Recreación de Gigantopithecus blacki. Foto: Bill Munns, paleoartista
A partir del análisis de 735 dientes se sugiere una gran diferencia entre machos y hembras, mayor que la observada actualmente en gorilas y orangutanes, indicando una posible competición fuerte entre los machos.
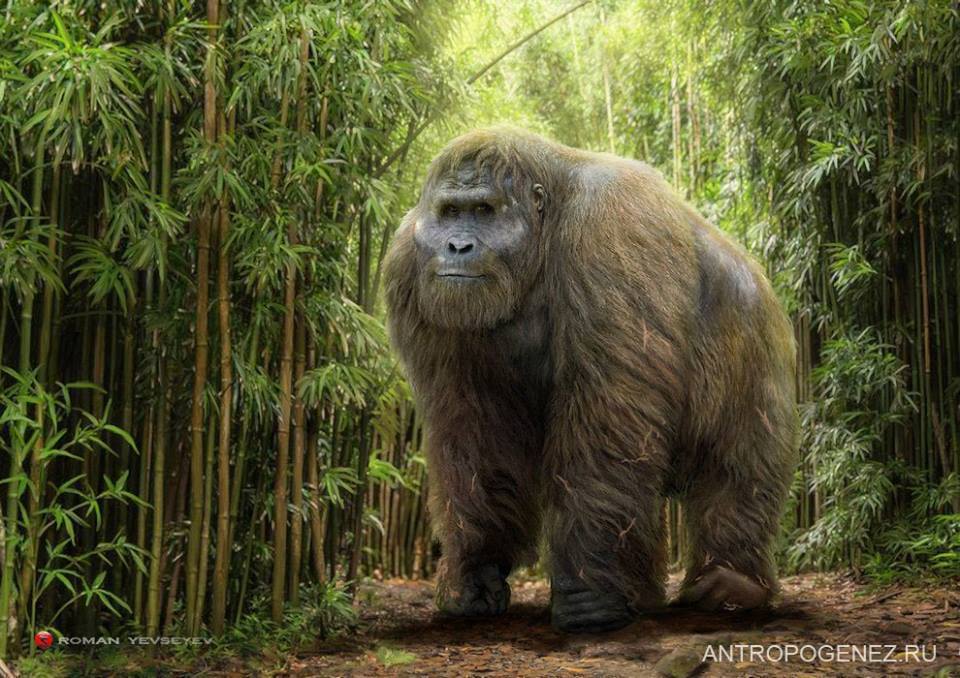
Se han tratado de realizar reproducciones de Gigantopithecus blacki, tomando como referencias primates vivos (gorila) y extintos (babuino gigante). Se estima para “Giganto” una altura de 3 metros y un peso de 540 kg. Aunque se le representa en posición erguida, se considera que su esqueleto y musculatura corresponderían a un ser cuadrúpedo con algún desplazamiento erguido ocasional.
Interpretación de Gigantophitecus. Foto: Antropogenez.ru

El lugar de Gigantopithecus entre los primates

Se han encontrado fósiles en China, India y Vietman. La estructura de la mandíbula inferior es muy similar a la de los orangutanes  por lo que, junto con ellos, se considera dentro de Ponginae y descendientes de Sivapithecus (8 Ma, descubierto en Pakistán).

La relación de Gigantopithecus con los ponginos no solo se establece a partir de su morfología, sino que se ha confirmado en 2019 gracias al estudio de 6 proteínas preservadas en el esmalte y la dentina de un molar de G. blacki de 1,9 Ma encontrado en la cueva china de Chuifeng. La paleoproteómica es una disciplina que permite trazar relaciones evolutivas a partir de la secuenciación de las proteínas, moléculas que son más estables que el ADN y no se degradan tan rápidamente. Esta técnica permite confirmar que el pariente actual más cercano a Gigantopithecus es el orangután, y ambos linajes se separaron hace unos 10 Ma. Ese molar ha proporcionado los restos moleculares más antiguos que se han podido secuenciar de un fósil, superando al estudio de un hueso de rinoceronte de 1,7 Ma procedente de Dmanisi (Georgia), estudio también de 2019.

Dado que Homo erectus llegó a Asia oriental hace 800 Ka. probablemente coexistió con Gigantopithecus durante medio millón de años. Se han encontrado especímenes de ambas criaturas prácticamente juntas en el mismo yacimiento, en Vietman (1965) y en China (1970 y 1987).

La extinción de Gigantopithecus se estima alrededor de hace 100 Ka. Por tanto, como género sobrevivió unos 6 millones de años, considerando el conjunto de formas y especies por las que evolucionó. Como en otras especies de primates, su desaparición se asocia a una combinación de factores y no a un solo evento, si bien se considera que uno de ellos sería la competición por los recursos naturales con la llegada de Homo erectus.

Otro factor determinante habría sido la falta de alimentos al convertirse en sabana el hábitat forestal donde solían vivir, y no adaptar su alimentación al nuevo entorno donde se iban encontrando, además agravado por las enormes cantidades que necesitaban.
Comparación Nutcracker Man (Australopithecus boisei, izda) vs. Gigantophitecus blacki (centro) vs. Humano moderno (dcha)
Comparación Nutcracker Man (Paranthropus boisei, izda) vs. Gigantophitecus blacki (centro) vs. Humano moderno (dcha). Foto: Roberto Sáez

quinta-feira, 7 de novembro de 2019

Macaco fóssil sugere como evoluiu o andar com dois pés

Fósseis de aproximadamente 11,6 milhões de anos revelam um macaco com braços adequados para pendurar em árvores, mas com pernas semelhantes a humanos, sugerindo uma forma de locomoção que pode atrasar a linha do tempo, pois ao andar com dois pés evoluiu.
 
Desde que o trabalho de Charles Darwin forneceu a base para a compreensão da evolução humana, há questões de longa data sobre quando, por que e como nossos primeiros ancestrais humanos começaram a andar com dois pés. O compromisso com o bipedalismo terrestre, caracterizado por adaptações esqueléticas para caminhar regularmente com dois pés, é uma característica definidora que permite a atribuição de fósseis à linhagem hominina - que compreende todas as espécies mais intimamente relacionadas aos seres humanos do que aos chimpanzés ( Pan troglodytes ) ou bonobos. ( Pan paniscus ), nossos dois parentes vivos mais próximos. Com base em descobertas fósseis, algumas das quais são mais controversas do que outras 1 , 2 , a resposta à pergunta "quando" está entre 7 milhões e 5 milhões de anos atrás, no final da época do Mioceno (que durou de cerca de 23 a 5 milhões de anos atrás). Responder às perguntas sobre por que e como o bipedalismo dos homininos evoluiu depende muito de que tipo de locomoção estava sendo usada antes do bipedalismo terrestre evoluir. Ele evoluiu de um ancestral que vivia principalmente em árvores, ou esses ancestrais já estavam andando de quatro no chão e posteriormente evoluíram para se levantar e andar com dois pés? Escrevendo na natureza , Böhme et al. 3 relatam a descoberta de uma espécie de macaco chamada Danuvius guggenmosi do meio do mioceno. Essa espécie se moveu de uma maneira anteriormente desconhecida, o que os autores sugerem poderia fornecer um modelo para o tipo de locomoção a partir da qual o bipedalismo da hominina evoluiu.
 
Perguntas sobre a origem do bipedalismo hominíneo e como o último ancestral comum dos humanos, chimpanzés e bonobos podem ter se movido são convencionalmente abordadas usando uma abordagem de cima para baixo ou de baixo para cima (Fig. 1).

 Darwin 4 e muitos paleoantropólogos favoreceram a abordagem de cima para baixo, examinando os primatas vivos, particularmente os grandes símios, em busca de pistas sobre como o bipedalismo evoluiu 5 , 6 . Macacos africanos - chimpanzés, bonobos e gorilas (do gênero Gorilla ) - entram nas árvores para comer, dormir e quando precisam de proteção, mas passam a maior parte do tempo no chão, usando as juntas dos dedos para caminhar.  

Dada a nossa estreita relação genética com esses macacos, e porque também compartilhamos certas características de nossas mãos e pés com eles, alguns argumentaram que o bipedalismo do hominin evoluiu de um ancestral que anda por nós 5 ou de um quadrúpede mais generalizado sem especializações em caminhar por nós 7 , que dividia seu tempo entre o chão e as árvores. Por outro lado, outros observaram que a maneira como os orangotangos (do gênero Pongo ) se movem bipedalmente nas árvores e as semelhanças mecânicas entre como os macacos usam suas pernas para escalar e como os humanos usam para caminhar, sugerem que o bipedalismo evoluiu de um ancestral dos macacos. anteriormente comprometido com a vida nas árvores 6 , 8 .
Figura 1 A evolução do bipedalismo. No ramo da árvore evolucionária que se separa de nosso último ancestral comum com chimpanzés ( Pan troglodytes ) e bonobos ( Pan paniscus ), os seres humanos e nossos parentes hominíneos extintos têm um esqueleto adaptado para caminhar regularmente no chão usando dois pés. Uma abordagem de cima para baixo para avaliar como nossos ancestrais podem ter evoluído o bipedalismo concentra-se em possíveis modos de locomoção ancestral, considerando como os grandes macacos vivos se movem. Por exemplo, os macacos africanos - chimpanzés, bonobos e gorilas (do gênero Gorilla ) - andam com mais força no chão do que nas árvores, e esses macacos e orangotangos (do gênero Pongo ) também escalam e usam locomoção suspensa nas árvores. . No entanto, fósseis do potencial antigo hominin Ardipithecus ramidus sugerem que os macacos vivos podem ter evoluído locomoção bastante especializada em comparação com seus ancestrais anteriores. Uma abordagem de baixo para cima concentra-se em fósseis de macacos antigos que datam de nosso último ancestral comum, como os do gênero Nacholapithecus ou Sivapithecus . No entanto, as pistas descobertas desses fósseis podem ser difíceis de interpretar. Böhme et al. 3 apresentam fósseis de um macaco previamente desconhecido chamado Danuvius guggenmosi , que os autores sugerem fornece um bom modelo para o tipo de locomoção a partir da qual o bipedalismo pode ter evoluído. Os tempos dos pontos de ramificação mostrados são aproximados.
Embora lógica, essa abordagem de cima para baixo é restrita, como Darwin reconheceu 4 , a examinar evidências das poucas espécies de macacos vivos remanescentes. No entanto, um dos primeiros homininos em potencial para os quais temos evidências mais fósseis - o Ardipithecus ramidus, de aproximadamente 4,4 milhões de anos - é considerado distintamente diferente dos grandes macacos vivos em sua anatomia, o que sugere que os macacos africanos e asiáticos os orangotangos que conhecemos hoje são, na verdade, bastante especializados em seus comportamentos locomotores, em comparação com seus ancestrais anteriores 7 .  

Cada espécie de macaco vivo é resultado de sua própria história evolutiva e longa, e no caso dos macacos africanos, que esquecemos com frequência porque há muito pouca evidência fóssil disso. Essa ausência de informações fósseis para revelar como os macacos africanos evoluíram torna ainda mais difícil responder a perguntas sobre a natureza de nosso ancestral comum.
 
Outros paleoantropólogos abordam a questão das origens bípedes a partir de uma abordagem de baixo para cima, olhando para os aproximadamente 30 gêneros de macacos fósseis que foram identificados no Mioceno da África, Ásia e Europa como modelos potenciais para o que nosso último ancestral comum poderia parecer como 2 , 7 , 9 . No entanto, esses macacos mostram um monte de adaptações esqueléticas, com características encontradas em combinações que são diferentes de tudo o que vemos em primatas vivos, e que muitas vezes nos deixam adivinhando sobre como esses animais se moviam e quanto tempo passavam nas árvores ou no chão .
Por exemplo, um gênero de macaco fóssil chamado Nacholapithecus tinha um corpo parecido com um macaco, mas membros anteriores e dedos longos incomumente grandes, enquanto outro gênero de macaco, Sivapithecus , tinha uma cara semelhante a um orangotango, um ombro semelhante a um macaco e um cotovelo semelhante a um macaco. e pelve 10 , 11 . Tais características sugerem combinações ímpares de suspensão arbórea (pendurada nos galhos das árvores), movimentos quadrúpedes e posturas corporais que hoje são difíceis de imaginar e dificultam a interpretação dos prováveis ​​padrões de locomoção dessas criaturas 10 .
 
Böhme e colegas aumentam essa incrível diversidade do Mioceno ao apresentar fósseis de D. guggenmosi com aproximadamente 11,6 milhões de anos. Os autores interpretam a forma dos fósseis de D. guggenmosi como indicando um tipo de movimento anteriormente desconhecido que eles denominam escalada estendida de membros, que combina adaptações de suspensão tanto nas árvores quanto na locomoção bípede. Isso o torna um bom modelo possível de locomoção para o último ancestral comum.
 
Os dentes de D. guggenmosi o identificam como pertencendo a um grupo de espécies de macacos fósseis chamados dryopithecins, encontradas desde o mioceno no meio até o final da Europa e que alguns consideram ser ancestral dos macacos africanos 9 . As espécies de macacos africanos vivos habitam a região equatorial da África, mas, durante certos tempos do Mioceno, muitos grandes macacos ancestrais estavam vivendo por toda a Europa e Ásia e migrando para a África e para fora da África. Alguns pesquisadores sugerem que as dryopitecinas mostram características encontradas hoje em chimpanzés e gorilas e, portanto, são boas candidatas aos ancestrais dos macacos africanos vivos 9 . O esqueleto de D. guggenmosi é único em comparação com outros espécimes de dryopitecina, tanto na preservação de dois ossos quase completos quanto nos membros - uma ulna (osso do antebraço) e uma tíbia (osso da perna) - e na combinação de características que exibe . Böhme et al. concentre sua atenção em um esqueleto parcial do tamanho de um babuíno e provavelmente masculino. Assim como a ulna e a tíbia, o esqueleto inclui algumas vértebras, um osso parcial da coxa (fêmur) e ossos de mãos e pés.
 
O comprimento da ulna em relação à tíbia mostra que o antebraço de D. guggenmosi era longo em relação à perna, semelhante à forma de um bonobo. Combinado com um cotovelo flexível e ossos da mão, indicando um polegar poderoso e agarrador e dedos curvados, o membro anterior apresenta sinais reveladores de suspensão arbórea encontrada em todos os grandes símios vivos.
Figura 2 Danuvius guggenmosi . Böhme e colegas instruíram o artista Velizar Simeonovski a fazer uma ilustração de como essa espécie poderia ser. Crédito: Velizar Simeonovski
No entanto, o membro inferior de D. guggenmosi conta uma história diferente, que lembra mais os membros inferiores humanos do que os de outros grandes símios. A forma das articulações do fêmur e da tíbia sugere o uso de posturas estendidas (eretas) do quadril e joelho que diferem dos quadris e joelhos dobrados que os macacos africanos vivos usam quando ocasionalmente andam bipedalmente no chão ou nas árvores. A parte superior da tíbia é reforçada e a articulação do tornozelo é estável, propriedades que são adaptações para resistir à maior carga colocada na parte inferior da perna ao mover dois membros em vez de quatro. Mas o pé tem um dedão longo e robusto que seria bom para agarrar, sugerindo que D. guggenmosi poderia ter andado com os pés no chão nos galhos (Fig. 2). Se ele anda ou não bipedalmente regularmente no chão é menos claro.
 
Juntos, os recursos de mosaico de D. guggenmosi provavelmente fornecem o melhor modelo de como poderia ser um ancestral comum de humanos e macacos africanos. Oferece algo para todos: os membros anteriores adequados à vida nas árvores que todos os macacos vivos, incluindo os humanos, ainda possuem; membros inferiores adequados para posturas estendidas como as usadas pelos orangotangos durante o bipedalismo nas árvores 8 ; e especialização adicional de tais características dos membros inferiores em humanos para permitir o bipedalismo habitual terrestre.
 
Se for aceito que os comportamentos locomotores observados em grandes macacos e humanos vivos evoluíram a partir de um ancestral que usava escalada prolongada de membros, isso responderia à pergunta de que tipo de locomoção precoce está por trás de nossas origens bípedes. E isso nos aproximaria de responder por que e como nossos ancestrais humanos se tornaram menos dependentes da vida nas árvores e abraçaram completamente a locomoção terrestre de dois pés. Até que sejam encontradas mais evidências fósseis de como os macacos africanos evoluíram, uma abordagem de baixo para cima do Mioceno é provavelmente o melhor meio de decifrar a evolução de uma de nossas características humanas mais importantes.
doi: 10.1038 / d41586-019-03347-0

Referências

  1. 1
    Madeira. B. & Harrison, T. Nature 470 , 347-352 (2011).
  2. 2)
    Almécija, S. et al. Nature Commun. 4 , 2888 (2013).
  3. 3)
    Böhme, M. et al. Nature https://doi.org/10.1038/s41586-019-1731-0 (2019).
  4. 4)
    Darwin, C. A Descida do Homem (Murray, 1871).
  5. 5)
    Richmond, BG, Iniciado, DR e Estreito, DS Am. J. Phys. Anthropol. 116 , 70-105 (2001).
  6. 6
    Crompton, RH, Vendedor, WI & Thorpe, SKS Phil. Trans. R. Soc. B 265 , 3301-3314 (2010).
  7. 7)
    Lovejoy, CO Science 326 , 74 (2009).
  8. 8)
    Thorpe, SKS, Holder, RL e Crompton, RH Science 316 , 1328–1331 (2007).
  9. 9
    Begun, DR, Nargolwalla, MC e Kordos, L. Evol. Anthropol. 21 , 10–23 (2012).
  10. 10)
    Ward, CV no Handbook of Paleoanthropology (eds Henke, W. & Tattersall, I.) 1363–1386 (Springer, 2015).
  11. 11)
    Morgan, ME et al. Proc. Natl Acad. Sci. USA 112 , 82-87 (2015).