Mostrando postagens com marcador cariótipo. Mostrar todas as postagens

quarta-feira, 22 de janeiro de 2025

Translator

 Atendendo aos pedidos, segue o glossário de evolução:


Radiação adaptativa:
a evolução da diversidade ecológica e fenotípica dentro de uma linhagem que se multiplica rapidamente.
Especiação alopátrica:
a origem de duas ou mais espécies resultantes de evolução divergente de populações geograficamente isoladas umas das outras.
Alopatria:
separação geográfica, tal que membros de duas ou mais populações não conseguem se encontrar.
Anagênese:
evolução dentro de uma linhagem, geralmente expressa por mudança morfológica, mas não associada a um evento de divisão.
Acasalamento sortido:
Escolha não aleatória de um parceiro, seja diretamente através da avaliação de algum atributo, ou indiretamente através da escolha do habitat (para táxons que acasalam dentro do seu habitat)
Efeito Beavis:
superestimação sistemática dos verdadeiros efeitos de locus de características quantitativas. O efeito Beavis é mais severo quando os tamanhos das amostras F2 ou retrocruzamento são pequenos.
Biométrico (estimativa do número do gene):
uma abordagem para estimar o número mínimo de genes subjacentes a uma diferença de característica que se baseia apenas em dados fenotípicos.
Gargalo:
uma redução drástica de curto prazo no tamanho da população, que pode ocorrer através de uma sobrevivência muito reduzida dentro de uma população ou da colonização concomitante de um novo habitat.
Mecanismo de subproduto:
um mecanismo de especiação no qual o isolamento reprodutivo pré-acasalamento e/ou pós-acasalamento evolui incidentalmente como consequência da evolução de outras características. O isolamento reprodutivo não é diretamente favorecido pela seleção, ao contrário do reforço.
Centrômero:
a região contraída de um cromossomo à qual as fibras do fuso se fixam durante a divisão.
Fissão cromossômica:
quebra de segmentos cromossômicos.
Fusão cromossômica:
reunião de segmentos cromossômicos anteriormente independentes.
Cronoespécie:
uma espécie que faz parte do continuum de uma linhagem documentada no registro fóssil, distinguida das cronoespécies abaixo e acima pelo acúmulo de mudanças morfológicas suficientes ao longo do tempo.
Clado:
um grupo monofilético de organismos.
Cladística:
método de desenhar árvores de relações orgânicas baseadas em caracteres derivados compartilhados.
Cladogênese:
a divisão de uma linhagem de espécie.
Seleção disruptiva:
seleção natural dentro de uma única população em direção a dois fenótipos diferentes (geralmente extremos), por exemplo, quando indivíduos grandes ou pequenos têm vantagem sobre aqueles de tamanho intermediário.
Seleção divergente:
seleção natural em diferentes direções dentro de cada uma das diversas populações, por exemplo, quando o tamanho grande é favorecido em uma população, enquanto o tamanho pequeno é favorecido em outra. Os intermediários nunca são favorecidos.
Taxa de diversificação:
a taxa líquida de aumento no número de espécies dentro de um grupo, igual à taxa de especiação menos a taxa de extinção durante um determinado período.
Incompatibilidades Dobzhansky-Muller:
incompatibilidades epistáticas que aparecem em híbridos como resultado da interação entre alelos que não diminuíram a aptidão quando foram substituídos nas linhagens divergentes.
Mecanismo ecológico de aptidão híbrida reduzida:
a aptidão híbrida reduzida resultante da seleção natural direta contra fenótipos intermediários, e cuja presença depende das características de nicho do ambiente em que os híbridos são testados.
Especiação ecológica:
a evolução do isolamento reprodutivo causado, em última análise, pela selecção natural divergente nas características entre populações (ou selecção disruptiva entre fenótipos de uma única população) em diferentes ambientes (incluindo a utilização de diferentes recursos).
Mudança ecofenotípica:
mudança não evolutiva na morfologia, ou outras características, de um organismo, geralmente induzida por pressões ambientais.
Ecótipo:
um grupo de indivíduos ecologicamente e fenotipicamente distinto. Os membros de um ecótipo podem pertencer à mesma espécie ou a espécies diferentes.
Incompatibilidades extrínsecas:
formas de isolamento reprodutivo (geralmente esterilidade ou inviabilidade dos híbridos) cuja presença ou intensidade depende do ambiente particular em que os híbridos são testados.
Genealógico:
relativo à história da descendência de genes, muitas vezes dentro de uma única espécie.
Deriva genética:
flutuações estocásticas produzidas por amostragem em populações finitas.
Regra de Haldane:
a observação de que, se híbridos de apenas um sexo são estéreis ou inviáveis ​​num cruzamento de espécies, esse sexo é quase sempre aquele que possui cromossomos sexuais heterogaméticos.
Heterochromatin:
densely staining condensed chromosomal regions, believed for the most part to be genetically inert.
Incipient species:
two or more diverged populations that are substantially, but not completely, reproductively isolated.
Internal nodes:
pontos de ramificação em uma árvore filogenética que refletem eventos de especiação passados ​​que levaram a espécies vivas.
Incompatibilidades intrínsecas:
formas de isolamento reprodutivo que são relativamente independentes do ambiente em que os híbridos são testados. Tais incompatibilidades geralmente refletem anormalidades de desenvolvimento produzidas por interações epistáticas deletérias entre alelos de espécies diferentes.
Inversão:
uma mutação cromossômica que envolve a remoção de um segmento cromossômico, sua rotação de 180° e sua reinserção no mesmo local.
Cariótipo:
o complemento cromossômico de um organismo.
Efeito X grande:
a observação de que, em análises genéticas de esterilidade e incompatibilidade híbrida, o cromossomo X tende a ter o maior efeito entre todos os cromossomos, especialmente quando examinado em híbridos com cromossomos sexuais heterogaméticos.
Linhagem:
uma sequência cronológica de populações com relações ancestral-descendentes.
Desequilíbrio de ligação:
associações não aleatórias entre alelos em diferentes loci.
Ligação:
proximidade física de genes no mesmo cromossomo que reduz a frequência de recombinação entre eles.
Impulso meiótico:
uma distorção na taxa de transmissão de um determinado gene ou rearranjo cromossômico na meiose.
Mendelize:
diz-se que uma diferença de característica entre duas espécies ou populações é mendelizada se a base genética da diferença for suficientemente simples para que a característica seja segregada em proporções mendelianas simples em híbridos F2 ou retrocruzados.
Sistema de acasalamento monândrico:
uma fêmea acasala com apenas um macho durante a época de reprodução.
Monofilético:
contendo todos os descendentes de um hipotético ancestral comum.
Conceito morfológico de espécie:
uma espécie é definida por ser suficientemente distinta morfologicamente de todas as outras. A definição pode incluir testes multivariados da distância estatística entre centróides de espécies em relação à variação intraespecífica sobre os centróides.
Zona híbrida de mosaico:
uma região com uma distribuição irregular de genótipos parentais e híbridos, em oposição a uma transição geográfica suave e contínua de uma espécie parental para outra através de uma área de hibridização.
Neoespécie:
uma espécie recém-derivada.
Rede:
diagrama de relacionamentos permitindo conexões laterais entre grupos.
Alelos neutros:
variantes alélicas em um locus que não afetam a aptidão do portador.
Escolha do companheiro de um alelo:
substituição de um único alelo de 'acasalamento seletivo' que faz com que todos os indivíduos, em qualquer ambiente, acasalem de forma seletiva. Um exemplo biologicamente plausível seria se todos os indivíduos acasalassem no local onde foram criados. Isso causa o acasalamento seletivo porque os indivíduos submetidos às mesmas forças de seleção tornam-se parceiros.
Especiação paralela:
evolução paralela de características subjacentes ao isolamento reprodutivo em populações independentes evoluindo ao longo de gradientes ambientais semelhantes.
Especiação parapátrica:
a evolução do isolamento reprodutivo substancial entre populações espacialmente adjacentes que têm troca genética limitada.
Parapátrico:
a proximidade de áreas geográficas de populações, de modo que apenas os membros das populações nas bordas de contato das áreas geográficas se encontrem.
Parafilético:
contendo os descendentes de um ancestral comum que retêm caracteres primitivos compartilhados, mas omitindo os descendentes que perderam esses caracteres.
Inversão pericêntrica:
a inversão do material cromossômico que inclui o centrômero.
Divergência fenotípica:
divergência de médias de características entre duas ou mais populações (ou subpopulações).
gradualismo filético:
a visão de que as espécies evoluem por evolução gradual da linhagem (anagênese) e divisão (especiação) como um processo subsidiário.
Árvore filogenética:
uma estimativa da verdadeira filogenia, por exemplo, como pode ser reconstruída a partir de caracteres de espécies, como dados moleculares. Freqüentemente abreviado para árvore.
Filogenética:
relativo às relações evolutivas entre organismos, geralmente no nível das espécies ou acima dele.
Filogenia:
as relações evolutivas entre um grupo de organismos.
Filogeografia:
análise de padrões biogeográficos à luz da filogenia, muitas vezes ao nível de populações dentro de espécies nomeadas.
Pleiotropia:
múltiplos efeitos de alelos em mais de um personagem. A pleiotropia leva a respostas correlacionadas à seleção porque a mudança na frequência alélica causada pela seleção altera o valor de todas as características afetadas por um alelo pleiotrópico.
Sistema de acasalamento poliândrico:
uma fêmea acasala com vários machos durante a época de reprodução.
Isolamento pós-zigótico:
isolamento reprodutivo que ocorre após a fertilização, como esterilidade híbrida e inviabilidade híbrida.
Isolamento pré-zigótico:
isolamento reprodutivo que ocorre antes da fertilização. Inclui diferenças de espécies em características como comportamento sexual, preferência de habitat, reprodução sazonal (todos pré-acasalamento) e compatibilidade gamética (pós-acasalamento, mas pré-zigótico).
Punctuated equilibria:
a visão de que a especiação ocorre de forma relativamente rápida e que virtualmente toda a evolução acontece na especiação (cladogênese), com longas fases intermediárias de estase das linhagens.
Pontuação:
um evento de especiação rápida, fazendo parte do modelo de evolução por equilíbrios pontuados.
Locus de característica quantitativa (QTL):
uma região cromossômica que tem um efeito estatisticamente significativo em uma diferença fenotípica entre duas linhagens, populações ou espécies.
Mapeamento de locus de características quantitativas:
uso de um mapa de ligação genética para localizar segmentos cromossômicos que influenciam características fenotípicas de interesse.
Corrida:
usado aqui como sinônimo de espécie incipiente, sem a exigência de que duas raças sejam separadas geograficamente.
Reforço:
o fortalecimento adaptativo dos mecanismos de isolamento pré-zigóticos em uma zona de contato secundário entre dois táxons distintos que já desenvolveram algum isolamento pós-zigótico. Neste processo, a seleção natural reduz o fluxo gênico entre os táxons porque a hibridização é deletéria.
Deslocamento de caráter reprodutivo:
a evolução de diferenças crescentes entre duas espécies estabelecidas em simpatria, o que pode resultar da produção de híbridos menos aptos ou de esforços desperdiçados em interações de acasalamento interespecíficas malsucedidas.
Isolamento reprodutivo:
ausência (ou restrição severa) de fluxo gênico entre populações cujos membros estão em contato uns com os outros.
Contato secundário:
a coocorrência em uma área de dois táxons que antes estavam geograficamente isolados e acumularam alguma divergência genética.
Traços sexuais secundários:
características específicas do sexo usadas na competição de acasalamento que não estão diretamente envolvidas na reprodução. Alguns exemplos incluem as penas coloridas de muitas espécies de pássaros, chifres de vários ungulados e cantos de muitos insetos, sapos e pássaros.
Seleção sexual:
sucesso reprodutivo diferencial resultante da competição pela fertilização. A competição pela fertilização ocorre através da competição direta entre membros do mesmo sexo ou através da atração de um sexo pelo outro.
Especiação:
o estabelecimento de isolamento reprodutivo entre duas ou mais populações previamente cruzadas.
Seleção de espécies:
o processo hipotético de classificação de espécies, que pode envolver a seleção para a sobrevivência daquelas que possuem características particulares irredutíveis e emergentes em nível de espécie.
Estase:
longos episódios sem nenhuma mudança morfológica líquida na linhagem de uma espécie.
Passo Cline:
um declive com um degrau grande ou íngreme.
Especiação simpátrica:
especiação ocorrendo dentro de uma única área geográfica, de modo que surge o isolamento reprodutivo entre indivíduos que sempre têm a oportunidade de cruzar.
Simpatria:
ausência de separação geográfica, de modo que todos os indivíduos tenham a mesma chance de se encontrarem.
Taxonômico:
relativo à classificação dos organismos, não necessariamente com base em suas relações evolutivas.
Zona de tensão:
uma zona híbrida mantida principalmente pela seleção contra híbridos ou genótipos raros, e não pela adaptação de alelos alternativos a ambientes alternativos.
Translocação:
a troca de segmentos cromossômicos entre cromossomos não homólogos.
Escolha do companheiro de dois alelos:
alelos diferentes causam o acasalamento em cada um dos dois ambientes. Isso só pode levar ao acasalamento seletivo quando os alelos de acasalamento estão em desequilíbrio de ligação com os alelos sob seleção disruptiva.
Gametas desequilibrados:
gametas que carregam duplicações ou deficiências cromossômicas.
Subdominante (seleção):
Seleção contra heterozigotos, como pode ocorrer com rearranjos cromossômicos.
Mutação subdominante:
uma mutação que causa redução da aptidão quando heterozigoto.

sexta-feira, 7 de junho de 2019

A Origem das Espécies Humanas: uma Fusão Cromossômica?

Tempo 4 para ler
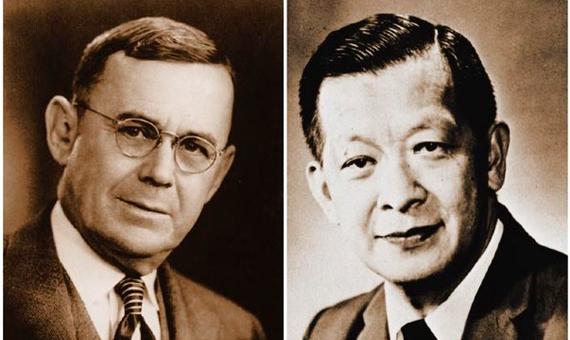
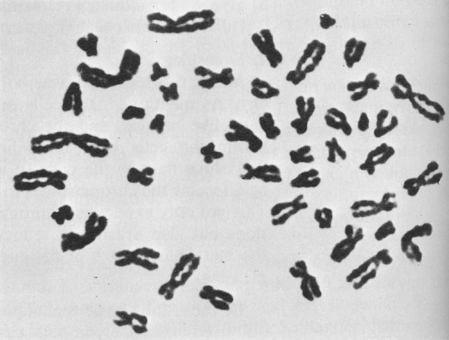
Há cerca de 60 anos, dois pesquisadores, Joe Hin Tjio e Albert Levan , descobriram que o número de cromossomos (cariótipo) em humanos era de 46 cromossomos, ou seja, 23 pares e não 48 como se pensava anteriormente (1). A chave para essa descoberta foi a introdução de uma série de melhorias nas técnicas de cultura aplicadas aos fibroplastos humanos , especialmente no que diz respeito ao tratamento com colchicina, que interrompe a divisão celular em um estágio apropriado para a observação dos cromossomos. Isso é conhecido como a metáfase, durante a qual os cromossomos são contraídos para que possam ser vistos adequadamente através de um microscópio. Curiosamente, essas mesmas melhorias foram usadas nos anos seguintes para determinar que nossos ancestrais mais próximos (grandes símios, como chimpanzés, bonobos, gorilas ou orangotangos) possuíam 48 cromossomos. Como e quando essa mudança no número de cromossomos aconteceu? Acima de tudo, que papel essa diferença teve na origem de nossa espécie? As últimas descobertas em técnicas de análise genética estão fazendo um grande progresso na solução dessas duas questões.
1.Levan y H.J. Tjio
Imagem: Levan y HJ Tjio / Fonte: Nature Reviews Genetics

Fusão cromossômica: o motivo da diferença

No início da década de 1960, as técnicas citogenéticas ainda não estavam preparadas para estudos comparativos de cromossomos em geral e em primatas, especificamente. As técnicas que foram aperfeiçoadas em uma data posterior para obter padrões de bandas coloridas e inter-bandas nos cromossomos revelaram que o nosso segundo maior cromossomo é o resultado de uma fusão de dois cromossomos pertencentes aos nossos ancestrais evolutivos mais próximos.
2.La primera células humanas that displayon Tjio y Levan y que demostraba que nuestro cariotipo está constituído por 46 cromosomas y no 48.
Imagem: A primeira célula humana mostrada por Tijo e Levan, que demonstrou que o nosso cariótipo é composto por 46 cromossomos e não por 48 / Fonte: Nature Reviews Genetics
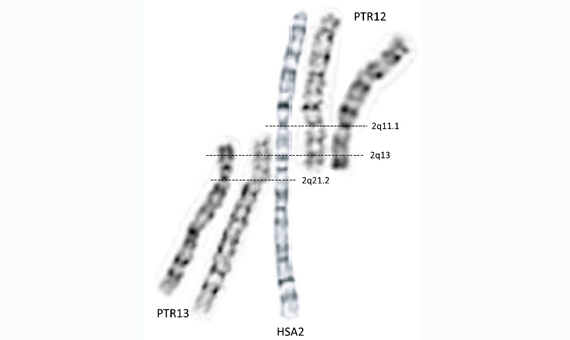
No entanto, não foi até depois da década de 1970 que as técnicas moleculares que permitem a análise direta do DNA nos cromossomos chegaram, antes do que a caracterização em profundidade do rearranjo cromossômico que nos distingue dos grandes símios não foi possível. Assim, foi visto que mais ou menos no centro de nosso cromossomo 2 havia sequências de DNA telomeric e subtelomeric (normalmente presente em apenas uma extremidade dos cromossomos, mas não em áreas internas) (2). Isso deixou claro que a fusão dos dois cromossomos estava completa, isto é, de uma ponta à outra. Hoje em dia, a disponibilidade do genoma humano e do genoma de grandes símios revelou como o conteúdo genético de nosso cromossomo 2 corresponde à soma dos dois cromossomos de nossos ancestrais símios.
3. Comparação do jogo de bandas do cromossoma 2 (HSA2) com os cromosomas 12 e 13 do chimpanzé (PTR12 e PTR13, respectivamente). 2q21; 2q13; 2q11.1 filho as distintas regiões do novo cromossoma 2 que, na zona da fusão, corresponde a um cromosoma 12 y 13 del chimpancé. HSA-Homo Sapiens; PTR-Pan TRoglodites, es decir chimpancé.
Imagem: comparação do padrão de bandas no cromossomo humano 2 (HSA2) e cromossomos 12 e 13 do chimpanzé (PTR12 e PTR13, respectivamente). 2q21; 2q13; 2q11.1 são as regiões do nosso cromossomo 2 que, na área de fusão, correspondem aos cromossomos 12 e 13 do chimpanzé. HSA-Homo Sapiens; Trogloditas PTR-Pan, por exemplo; chimpanzé. / Fonte: Citogenética Molecular.
No entanto, também foi descoberto que a área de fusão que originou nosso cromossomo 2 carece de algumas regiões e sequências que correspondem a áreas subteloméricas presentes nos dois cromossomos fundidos em nossa espécie. Em outras palavras, a fusão deve ter envolvido perda e rearranjo de parte do material genético dos dois cromossomos originalmente separados nos ancestrais que temos em comum com os grandes primatas.

Denisovans, neandertais e grandes símios: quando nos separamos?

Análises atualmente realizadas em genomas de espécies extintas que são diretamente relacionadas a nós, como os Denisovans e os Neandertais, revelam que essas espécies já apresentavam a fusão cromossômica que originou o longo cromossomo 2 que é característico do homem (3). Portanto, esse rearranjo dos cromossomos retrocede muito no tempo : estimativas usando vários métodos datam de 0,75 a 4,5 milhões de anos atrás.
 
O fato de os denisovanos e os neandertais terem o mesmo número de cromossomos que nós podemos explicar por que os descendentes de cruzamento inter-específico com nossa espécie eram viáveis ​​e possivelmente férteis. Isso também explicaria por que traços de suas características genéticas permanecem em nosso genoma , como mostrado pela análise genômica comparativa das três espécies. No entanto, os descendentes hipotéticos de reprodução entre as três espécies de hominídeos mencionados (46 cromossomos) e seus grandes ancestrais símios (48 cromossomos) teriam tido problemas de incompatibilidade cromossômica e provavelmente não seriam viáveis. De fato, nenhum vestígio de características genéticas específicas dos grandes macacos foi encontrado em nosso genoma. Portanto, a fusão cromossômica pode ter funcionado como um mecanismo eficiente para o isolamento reprodutivo que nos isolou dos ancestrais dos grandes símios.
 
Por último, existe a possibilidade de que a fusão cromossômica que originou nosso cromossomo 2 possa ter sido associada ao aparecimento de nossas características distintivas. Assim, vários genes em nosso cromossomo 2 que são encontrados perto da área da fusão cromossômica são expressos mais intensamente em nossa espécie do que nos grandes símios. Esses genes são expressos, sobretudo, em tecidos e órgãos altamente significativos, como o cérebro e as gônadas (4). Em segundo lugar, a perda de certas sequências de DNA que ocorreram como resultado da fusão pode ter tido efeitos “positivos” em nossos ancestrais.
 
Para finalmente esclarecer o que ocorreu no rearranjo cromossômico tão característico de nossa espécie, nos próximos anos teremos que tentar obter o DNA de espécies extintas que são mais velhas que o Homo Erectus ou o Homo Heidelbergensis , determinando assim se a fusão está associada a todas as linhagens "humanas"; ou realizar uma análise comparativa aprofundada da área de fusão do nosso cromossomo 2 e das áreas subteloméricas dos dois grandes cromossomos de macaco envolvidos na fusão, o que ainda não foi possível.

Manuel Ruiz Rejón

Universidade de Granada, Universidade Autônoma de Madri

Referências:

  1. J. Tjio e A. Levan. 1956. O número cromossômico do homem. Hereditas, 42 (1-2): 1-6.
  2. W. Ijdo et al.1991. Origem do cromossomo humano 2: uma fusão ancestral telômero-telômero. PNAS, 88: 9051-9056.
  3. Meyer et al. 2012 Sequência do genoma de alta cobertura de um indivíduo denisovano arcaico. Science 338: 222-226; KH Miga. 2016. Sequências Centroméricas Específicas dos Cromossomos fornecem um estímate do evento Ancestral Chromosome 2 Fusion no Hominin Genome.Journ. da hereditariedade. 1-8. Doi: 10.1093 / jhered / esw039.
  4. Portal GTEx, http://www.gtexportal.org/home.

terça-feira, 5 de fevereiro de 2019

Mistérios de ser macho ou fêmea

Rã amazônica é o vertebrado com o maior número registrado de cromossomos sexuais
Entrevista: Thiago Gazoni
stalled;stalled;stalled;stalled;stalled;stalled;
00:00 / 05:08
 
Quando o biólogo Thiago Gazoni examinou pela primeira vez os cromossomos da rã conhecida como jia-da-floresta (Leptodactylus pentadactylus), durante o mestrado, que concluiu em 2011 na Universidade Estadual Paulista (Unesp) em Rio Claro, não contava registrar o vertebrado com o maior número de cromossomos sexuais já encontrado, conforme descreveu em artigo publicado no final de janeiro no site da revista Chromosoma: são 12 desses pacotes de DNA que, nessa espécie, se organizam em forma de anel durante a divisão celular, como se dançassem uma ciranda. 
 
É um sistema muito distante do X e do Y que determinam se uma pessoa é homem ou mulher. O recordista anterior era o ornitorrinco, com 10 cromossomos sexuais.
 
“Menos de 5% dos anfíbios cujos cromossomos foram descritos até o momento têm cromossomos sexuais prontamente identificáveis”, diz Gazoni, que aprofundou o estudo durante o doutorado encerrado em 2015. Isso significa que quando se monta o cariótipo – uma forma de organizar e estudar o conjunto de cromossomos de um indivíduo –, na maioria das vezes é impossível distinguir visualmente aqueles relacionados à determinação do sexo. Na verdade, pouco se sabe sobre os genes específicos que tornam os anfíbios machos ou fêmeas, função desempenhada em mamíferos pelo gene SRY.

Mais curioso ainda, as 13 rãs estudadas (seis fêmeas e sete machos) têm mais cromossomos sexuais do que não sexuais (os autossomos). São 12 sexuais em um conjunto total de 22 cromossomos. 


“O que define, visualmente, serem cromossomos sexuais é haver diferenças entre os cariótipos de machos e de fêmeas”, explica Gazoni. Os cromossomos exclusivos de um sexo seriam responsáveis por defini-lo. Durante a evolução, o que acontece é que os autossomos vão sofrendo alterações que podem dar origem a cromossomos com genes específicos para um dos sexos. Aos poucos, outros genes próximos ao determinador do sexo vão sendo inativados, dando origem a cromossomos especializados. As partes inativadas ficam mais condensadas e podem ser reconhecidas com métodos adequados de coloração.

 
Em 2014, Gazoni passou três meses na Universidade de Cambridge, Reino Unido, no laboratório do geneticista Malcolm Ferguson-Smith, para desenvolver uma sonda que conseguisse marcar os cromossomos das rãs e mapear o trânsito de pedaços trocados entre cromossomos distintos. No futuro, um dos objetivos é identificar e localizar os genes relacionados à determinação do sexo nesses anfíbios.

“Ainda não se sabe o significado dos cromossomos sexuais múltiplos”, diz a bióloga Patricia Parise-Maltempi, da Unesp de Rio Claro, orientadora de Gazoni durante o doutorado – que teve como coorientador o zoólogo Célio Haddad, da mesma instituição. Há 10 anos ela fez um estágio de pós-doutorado com Ferguson-Smith para aprender técnicas como a pintura cromossômica, que permite distinguir partes específicas dos cromossomos e comparar cariótipos. Ela se especializou sobretudo em peixes, que também apresentam cromossomos sexuais múltiplos, mas conta que o conhecimento sobre a determinação sexual é ainda bem restrito. Aparentemente, no caso de peixes e da rã L. pentadactylus, os excedentes não são inativados – como é o caso nas fêmeas de mamíferos, que empacotam um dos cromossomos X de maneira a manter a atividade genética equiparada à dos machos, portadores de apenas um deles (ver Pesquisa FAPESP nº 260).

Enigma evolutivo
 
Também não há cromossomos inativados no recordista anterior: o ornitorrinco, estranho animal australiano que, apesar de exibir patas com membranas entre os dedos, bico achatado e pôr ovos, não é pato e sim mamífero. Um mamífero à parte – junto com a espinhuda equidna pertence à ordem dos monotremados –, mas mesmo assim alimenta seus filhotes com leite, embora não tenha propriamente mamas. Desde os anos 1970 sabe-se que esses curiosos caçadores subaquáticos têm 52 cromossomos, dos quais 10 sexuais que aparecem enfileirados durante a divisão celular. 

Demorou cerca de 30 anos para que existissem ferramentas adequadas para estudar esse sistema, segundo explica o geneticista alemão Frank Grützner, da Universidade de Adelaide, na Austrália, que desde 2002 se dedica ao enigma. “Eu tinha aprendido uma técnica chamada hibridização in situ por fluorescência, na qual é possível marcar cromossomos em cores diferentes”, conta. “Era claro que ela permitiria solucionar esse complexo sistema, mas foram necessários vários anos de trabalho duro para mostrar que se tratava de cinco pares de cromossomos XX ou XY, que se alternam em fileira durante a meiose, na divisão celular” (ver infográfico).


Especialmente relevante para entender a evolução dos sistemas de determinação sexual foi a descoberta de que essa cadeia de cromossomos dos ornitorrincos tem genes típicos dos cromossomos X de mamíferos e Z de aves, de acordo com artigo publicado por Grützner em 2004 na revista Nature. É um indício de origem comum entre esses sistemas que até então se acreditava terem surgido de forma independente. Mesmo assim, até agora não está claro qual gene determina os sexos nesse animal. Esforços de sequenciamento do genoma completo estão em curso, com mais dificuldades no que diz respeito ao cromossomo Y. “Recentemente, em colaboração com Henrik Kaessmann [da Universidade de Heidelberg, na Alemanha], descobrimos um candidato potencial – um gene AMH ligado ao Y”, detalha. “É um gene tradicionalmente ligado ao desenvolvimento dos órgãos reprodutivos, será interessante ver como ele pode atuar na determinação sexual nessa espécie.”

Impressão digital
 
Além das profundas implicações evolutivas do sistema genético de determinação sexual, a configuração dos cromossomos é muito usada como parte da caracterização de espécies, algo como uma impressão digital. Esse era um dos objetivos de Gazoni durante o mestrado orientado pela citogeneticista Sanae Kasahara, da Unesp de Rio Claro, falecida em janeiro deste ano. “Havia questões taxonômicas mal resolvidas no gênero, e por isso pesquisadores à época no laboratório de Haddad – Olívia Araújo e Felipe Toledo – nos trouxeram um L. pentadactylus macho coletado em Paranaíta, em Mato Grosso”, conta ele. “Logo vimos que havia vários rearranjos cromossômicos.”
O trabalho se desdobrou por outros caminhos, mas a busca pela classificação continua. “Mostramos no trabalho recente que há duas espécies atualmente sendo chamadas de L. pentadactylus, precisamos saber qual delas é a verdadeira”, diz Gazoni. O plano é batizar a nova espécie em homenagem à primeira orientadora, que dedicou a carreira à pesquisa em citogenética de vertebrados.

Projetos
 
1. Contribuições para o entendimento da origem e evolução dos cromossomos sexuais de vertebrados, baseado no estudo de DNAs repetitivos (nº 17/00195-7); Modalidade Auxílio à Pesquisa – Regular; Pesquisadora responsável Patricia Pasquali Parise-Maltempi (Unesp); Investimento R$ 106.795,21.

2. Diversidade e conservação dos anfíbios brasileiros (nº 13/50741-7); Modalidade Projeto Temático; Programa Biota; Pesquisador responsável Célio Fernando Baptista Haddad (Unesp); Investimento R$ 4.386.814,61.

Artigos científicos

GRÜTZNER, F. et al. In the platypus a meiotic chain of ten sex chromosomes shares genes with the bird Z and mammal X chromosomes. Nature. v. 432, n. 7019, p. 913-7. 24 out. 2004.

quarta-feira, 12 de outubro de 2016

Fish Karyotypes


Fish Karyotypes: A Check List by Ryoichi Arai
English | 18 Apr. 2011 | ISBN: 4431538763 | 340 Pages | PDF | 2 MB

As the largest group of extant vertebrates, fish offer an almost limitless number of striking examples of evolutionary adaptation to environmental and biotic selection pressure. The most diverse of all vertebrate groups, the higher taxa of fish traditionally have been classified by morphology and paleontology, with a much smaller input of cytogenetic information. DNA sequence data are exerting an increasingly strong influence on modern fish systematics, challenging the classification of numerous higher taxa ranging from genera to orders. 

Clique no link abaixo para baixar o livro