terça-feira, 17 de maio de 2022


A ORIGEM E EVOLUÇÃO DAS TARTARUGAS: PROTO-QUELÔNIOS.

Os primeiros proto-quelônios surgiram no final do período Triássico, a cerca de 250 milhões de anos atrás. Seu casco permaneceu estável no plano corporal e evoluiu a partir de extensões ósseas de sua coluna e expandiram-se para formar um escudo completo que ofereceu proteção em todas as fases de sua evolução, mesmo quando o componente ósseo do casco não era completo. Isto é suportado por fósseis de quelônios como a Odontochelys semitestacea ou “tartaruga de meio-casco”, que foi encontrada perto de Guangling, no sudoeste da China.

Sinosaurosphargis é um gênero extinto de réptil marinho basal conhecido da Formação Guanling do Médio Triássico de Guizhou, uma cidade na China. Foi datada em 243 milhões de anos.

Muitos estudos de genética e paleontologia tem sido produzidos com a finalidade de elucidar um pouco mais sobre a origem e evolução das tartarugas, favorecendo então a implementação de projetos de conservação destes répteis.

Tartarugas são animais muito bem modelados por processos evolutivos, com um único plano corporal e um escudo que é considerado uma das estruturas biológicas mais intrigantes do reino animal.

Os membros deste grupo oferecem um caso excepcional para compreender as grandes mudanças evolucionárias que ocorreram na história dos vertebrados. Um estudo realizado por pesquisadores de 9 instituições internacionais decodificou o genoma da tartaruga verde da China (Pelodiscus sinensis) e estudaram a expressão da informação genética no desenvolvimento do animal.

Os resultados foram publicados na revista Nature Genetics e mostram que as tartarugas não são répteis primitivos como se pensava anteriormente, mas estão relacionados com o grupo composto por aves e crocodilianos, que também inclui os dinossauros extintos. Com base nas informações do genoma, os pesquisadores previram que as tartarugas devem ter dividido a linhagem a partir deste grupo cerca de 250 milhões de anos atrás.

Um estudo revelou também que, apesar de sua anatomia única, tartarugas seguem o padrão básico durante o desenvolvimento embrionário. Ao invés de se desenvolver diretamente em uma forma específica do corpo com o casco, ela primeiro estabelece o plano básico do corpo dos vertebrados e em seguida entra em uma fase de desenvolvimento específica. Durante esta fase de especialização tardia os pesquisadores encontraram vestígios de que a expressão de genes relacionados á formação dos membros esta ligado também á formação do casco. Isso indica que o casco da tartaruga evoluiu a partir de um recrutamento de parte do programa genético utilizado para a formação dos membros. Isto não é novidade para os geneticistas: a evolução de borboletas direcionou o uso do gene Distal-less não somente a produção de pernas e asas (como comum em artrópodes), mas a manchas ocelares. Portanto, já se sabe que genes podem ser recrutados a novas funções.

Outra constatação inesperada foi que tartarugas possuem um grande número de receptores olfativos e, portanto, tem a capacidade para sentir odor de uma grande variedade de substâncias. Os pesquisadores identificaram mais de 1.000 receptores olfativos na tartaruga da China que é um dos maiores números encontrados em um vertebrado não-mamíferos.

Tipos de crânios e suas respectivas fenestras e ossos.

A questão é; como um casco surgiu e foi selecionado? ou ainda: quais exemplares podem explicitar a origem de tal grupo com tal característica?

Existe uma série de fósseis que marcam a origem e evolução do casco. Mas a origem das tartarugas começa muito tempo antes do primeiro casco surgir. Para compreender a origem das tartarugas é preciso entender a origem do grupo na qual o animal pertence, os répteis.

Os primeiros répteis surgiram a cerca de 320 milhões de anos atrás, durante o período Carbonífero a partir de tetrápodes reptilimorphos. Répteis, no sentido tradicional da palavra vem do verbo latim reptare, que significa rastejar. São definidos como os animais vertebrados que têm escamas (ou cascos), põem ovos com cascas rígidas como forma de adaptação a desidratação e possuem metabolismos ectotérmicos (sangue frio).

Os taxonomistas ainda debatem a relação exata entre estes répteis basais (com mais de 300 milhões de anos) que apareceram no Carbonífero, com os répteis do Permiano, ou, os crânios anápsidos (sem aberturas, ou fenestras) e o grupo das tartarugas e cágados (Testudinata).

Muitos paleontólogos defendem que os testudíneos descendem de répteis diápsidos (com duas aberturas) que perderam as fenestras temporais. De fato, os únicos répteis vivos anápsideos são os testudíneos.

Na filogenia abaixo, não foi possível fazer a representação de todos os principais grupos répteis, mas apenas os grupos que permite-nos explicitar a trajetória evolutiva dos últimos 280 milhões de anos e localizar temporal e filogeneticamente onde estão as tartarugas.

A porção inferior em negrito representa os principais grupos fósseis de tartarugas, cujo representante mais antigo data 240 milhões de anos (Pappochelys), e o parente mais próximo do grupo é o Eunotosaurus, datado em aproximadamente 260 milhões de anos.

Relações filogenéticas entre os répteis. As setas em vermelho indicam grupos mais conhecidos e destacados no texto. O ponto azul indica a linhagem que mais nos interessa: proto-quelônios e os ancestrais das atuais tartarugas. Rainer & Hans, 2015

O primeiro réptil que aparece na filogenia (porção superior), é o Seymouria, que data aproximadamente 280 milhões de anos. Estas datas são importantes porque mostram que os grupos das tartarugas se diversificaram precocemente da linhagem que deu origem aos crocodilianos e aos dinossauros, ou seja, cerca de 260 milhões de anos. Os primeiros crocodilianos datam aproximadamente 235 milhões de anos e os primeiros dinossauros cerca de 231 milhões de anos (todos contidos em Archosauromorpha).

Obviamente, entre o Seymouria (Permiano de 280 milhões de anos na América do Norte e Europa) até as tartarugas 260 milhões de anos, a radiação adaptativa de répteis foi tão intensa que gerou várias das linhagens conhecidas atualmente; muitas delas ainda vivas. Obviamente, todas as outras foram extintas: como os Millerretidae de 252 milhões de anos, parte dos já citados Archossauros (onde estão os crocodilianos, dinossauros e aves), Squamata e Rynchocephalia (que juntos compreendem o grupo Lepidopsauria) datado em cerca de 220 milhões de anos.

Devidamente localizados, temos então um ponto crucial na filogenia (marcado pelo ponto azul na imagem): a origem de um grupo chamado Sauropterygia (traduzido á risca como “lagarto de nadadeira”). É um táxon extinto representado por diversificados répteis aquáticos que se desenvolveram a partir de ancestrais terrestres – logo após a extinção do fim do Permiano. Eles floresceram durante o Mesozóico e deram origem a animais presentes no Pliossauro (Cheng et al, 2013).

Neste ponto, a origem das tartarugas começa a ficar mais clara. Isto ocorre porque os sauropterigios tinham diversas divisões. As duas que nos interessam era a linhagem dos Eosauropterygia e Placodontiformes.

Eosauropterygia é um grupo de difícil classificação. Várias análises deste grupo e sua relação evolutiva com sauropterygia são feitas desde o início da década de 2010 e sugeriram que eles estão mais estreitamente relacionados com arcossauros (aves e crocodilianos) do que para Lepidosauros (lagartos e serpentes)( Lee, 2013).

Nele, há o grupo (clado) dos Sinosaurosphargis, um gênero extinto de réptil marinho basal do Triássico Médio (encontrado na China). O grupo tinha as narinas externas retraídas e fenestras temporais superiores. A região do tronco do corpo era curta e arredondada, coberta por um escudo composto por pequenas placas dérmicas (osteoderme), assim como o pescoço e as porções proximais dos quatro membros. As vértebras eram alongadas distalmente e expandiam projeções transversais. As costelas torácicas eram ampliadas e planas, contactavam entre si ao longo de seu comprimento formando uma corbelha (um cesto) de costelas torácicas fechadas (Li et al, 2011). Li et al (2014) descobriu que alguns destes traços são compartilhados enquanto outros são exclusivos do grupo.

O outro grupo bastante importante é o do Placodontiformes, descoberto em 2013, considerado um clado basal e irmão do Eosauropterygia (Neenan et al, 2013).

Este grupo já apresentava “cascos”, mas não são considerados tartarugas. Eram répteis aquáticos, mas diferente das tartarugas em sua anatomia. As espécies mais conhecidas podem ser divididas em dois grupos: os Placodontoides não-blindados que eram grandes, escamosos e cheio de dentes. De fato, há 247 milhões de anos a espécie representante deste grupo é o Paraplacodus broilli. Como todos os placodontes conhecidos, o Paraplacodus era um réptil aquáticos que alimentava-se quase exclusivamente de mariscos. Os fósseis foram descobertos no norte da Itália e a espécie foi nomeada em 1931 por Bernhard Peyer. Paraplacodus significa “quase com placas” (Dixon, 2006)

O outro grupo é chamado de Cyamodontides e eram “blindados”. O representante mais comum era Placodus, uma espécie irmã (derivada) de Paraplacodus que vai desenvolver uma placa semelhante a um casco.

Cyamodus (Cyamodontides)

O Placodus nadou nos mares rasos do período Triássico Médio a cerca de 240 milhões de anos atrás. Seus fósseis foram encontrados na Europa Central (Alemanha, França, Polônia) e China (Palmer, 1999).

Cyamodontides é classificado hoje em um grupo maior (a superfamília extinta Cyamodontoidea) e apresentava cascos grandes, formados a partir de placas ósseas fundidas, a osteoderme que era superficialmente semelhante ao casco de tartarugas. Os ciamodontoideos também têm crânios distintos com mandíbulas, muitas vezes desdentados estreitos e largas regiões temporais atrás dos olhos. Há duas grandes aberturas temporais que são posicionadas na parte superior da parte posterior do crânio, um arranjo que é conhecido como euryapsida e visto ao longo dos Sauropterygia. Os Cyamodontoideos são distintos das tartarugas nos seus grandes dentes que crescem a partir dos ossos do palatino – ou seja, sobre o céu da boca (Rieppel, 2002).

O casco de Cyamodontoideo difere das tartarugas de várias maneiras. Os cascos de tartaruga são fundidos a seus esqueletos em várias regiões, incluindo as vértebras, costelas, e a gastrália, ou seja, as costelas abdominais e cintura escapular. Os cascos de Cyamodontoideos não têm os ossos fundidos. Os cascos de tartarugas também são compostos de duas camadas da osteoderme, enquanto em Cyamodontoideos só há uma camada que é maior e configura seu casco e plastrão (parte superior e inferior) das tartarugas. A osteoderme têm formas mais bem definidas do que as formas geométricas das tartarugas (Rieppel, 2002).

Há algumas espécies representantes deste grupo. No grupo Cyamodus, fósseis datados do Período Triássico (Diedrich, 2011), são considerado como um possível ancestral das tartarugas devido ao seu torso amplo e achatado coberto de ossículos dérmicos. É um grupo derivado de Paraplacodus e filogeneticamente precedida por Placochelys (Naish, 2004). Inicialmente foi considerada como uma tartaruga ancestral devido à sua cabeça semelhante a dos testudines (atuais tartarugas) e grande carapaça bifurcada. Com uma investigação mais aprofundada resultou na sua reclassificação como um Placodontia, e está intimamente relacionada com outros répteis semelhantes a tartaruga do período Triássico, como Henodus e Psephoderma.

Psephoderma (significa “pele de cascalho”) tinha um crânio achatado e um estreito. Dentro do crânio estava incorporada as mandíbulas com dentes especializados para esmagar moluscos. Ao contrário da maioria dos placodontes, o Psephoderma tinha uma carapaça que foi dividida em duas partes, uma sobre os ombros e costas e outra na extremidade traseira. Psephoderma chegava até 1,80 m e viveu a cerca de 210 milhões de anos atrás. Foi um dos últimos placodontes a ser extinto.

Portanto, nem todo réptil observado no registro fóssil que detém um casco deve ser considerado uma tartaruga. Ambos os grupos são relacionados evolutivamente, mas detém características distintas que garante ser agrupados de modo distinto.

Victor Rossetti

Palavras chave: NetNature, Rossetti, Tetrápodes reptilimorphos, Carbonifero, Seymouria, Archosauromorpha, Squamata, Rynchocephalia, Lepidopsauria, Sinosaurosphargis, Placodontiformes, Cyamodontides, Triássico.

 .

Referências

Cheng, J. et al. 2013. “Highly diversified Chaohu fauna (Olenekian, Early Triassic) and sequence of Triassic marine reptile faunas from South China”, in Reitner, Joachim et al., eds. Palaeobiology and Geobiology of Fossil Lagerstätten through Earth History p. 80
Dixon, Dougal (2006). The Complete Book of Dinosaurs. Hermes House.
Diedrich, Cajus G. (2011). “The shallow marine placodont Cyamodus of the central European Germanic Basin: its evolution, paleobiogeography and paleoecology”. Historical Biology: An International Journal of Paleobiology. 24.3: 1–19.
Lee, M. S. Y. (2013). “Turtle origins: Insights from phylogenetic retrofitting and molecular scaffolds”. Journal of Evolutionary Biology. 26 (12): 2729–2738.
Li, Chun; Olivier Rieppel; Xiao-Chun Wu; Li-Jun Zhao; Li-Ting Wang (2011). “A new Triassic marine reptile from southwestern China”. Journal of Vertebrate Paleontology. 31 (2): 303–312
Li, Da-Yong Jiang, Long Cheng, Xiao-Chun Wu and Olivier Rieppel (2014). “A new species of Largocephalosaurus (Diapsida: Saurosphargidae), with implications for the morphological diversity and phylogeny of the group”. Geological Magazine. 151 (1): 100–120.
Naish, D. (2004). “Fossils Explained 48 – Placodonts”. Geology Today. 20: 153–158.
Neenan, J. M.; Klein, N.; Scheyer, T. M. (2013). “European origin of placodont marine reptiles and the evolution of crushing dentition in Placodontia”. Nature Communications. 4: 1621.
Palmer, D., ed. (1999). The Marshall Illustrated Encyclopedia of Dinosaurs and Prehistoric Animals. London: Marshall Editions. p. 70
Rainer R. Schoch & Hans-Dieter Sues. A Middle Triassic stem – turtle and the evolution of the turtle body plan. 00 Month 2015. Vol 000. Nature
Rieppel, O. (2002). “The dermal armor of the cyamodontoid placodonts (Reptilia, Sauropterygia): morphology and systematic value” (PDF). Fieldiana. 46: 1–41.

sexta-feira, 6 de maio de 2022

Este são os 9 felinos mais raros do mundo

Descubra quais são as espécies de gatos selvagens menos avistadas por humanos


  • Por Marcus Cabral
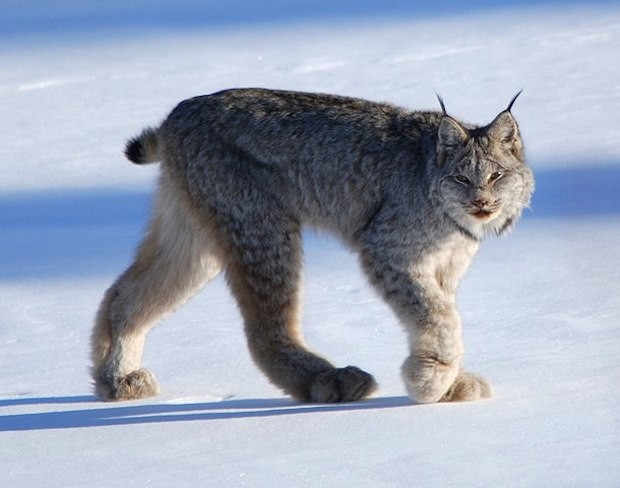
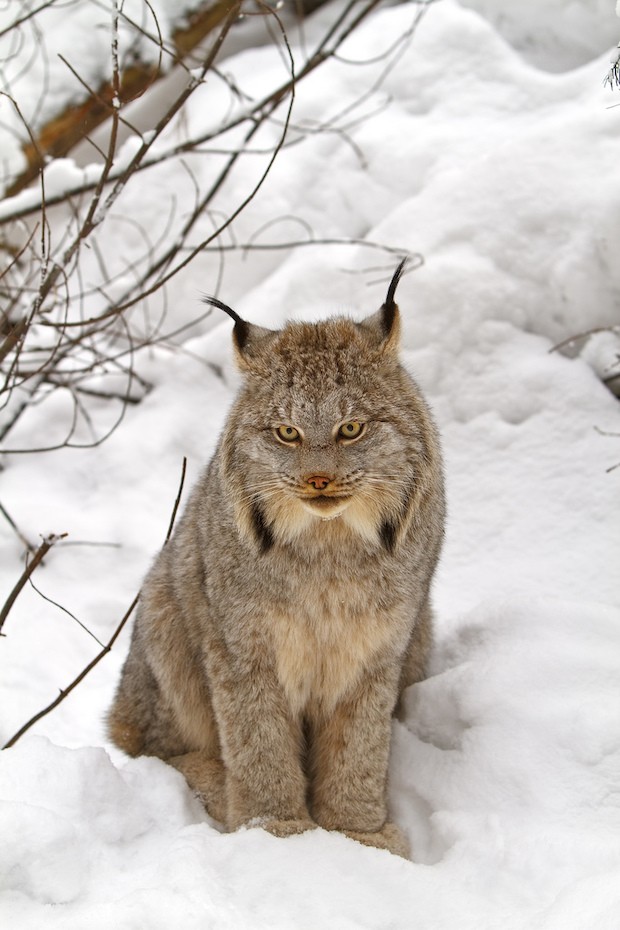
O lince-do-canadá está entre os felinos mais raros do mundo (Foto: Keith Williams / Wikimedia Commons / CreativeCommons)

O lince-do-canadá está entre os felinos mais raros do mundo (Foto: Keith Williams/ Wikimedia Commons/ CreativeCommons)

Todos nós conhecemos os grandes felinos selvagens, como leões, tigres, pumas, leopardos e até onças, mas há um universo inteiro de outros gatos e uma porção de subespécies que provavelmente você nunca ouviu falar.

Conheça alguns dos gatos selvagens mais raros do planeta!

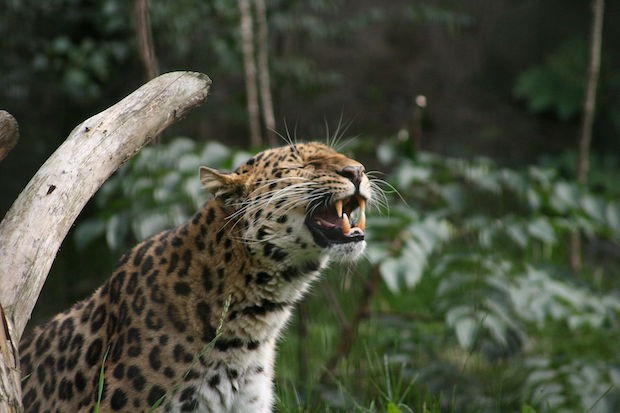
1. Leopardo-de-amur

Considerada como o gato selvagem mais raro do mundo, estima-se que existam apenas 80 animais dessa subespécie vivendo livremente na Rússia e na China. A ameaça de extinção desses felinos vem principalmente da caça ilegal e da perda de habitat pela construção de estradas e incêndios florestais.

Panthera pardus orientalis vive nos montes Sikhote-Alin (Foto: Madhusudhan Nanjappa / Wikimedia Commons / CreativeCommons)

Panthera pardus orientalis vive nos montes Sikhote-Alin, sudeste da Rússia (Foto: Madhusudhan Nanjappa/ Wikimedia Commons/ CreativeCommons)

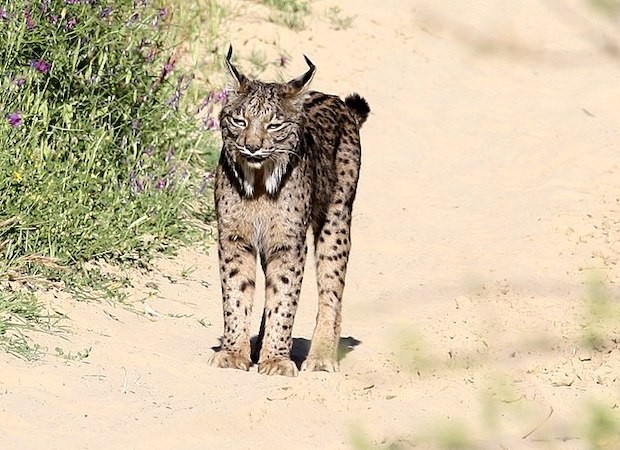
2. Lince-ibérico

Os linces-ibéricos estão criticamente ameaçados de extinção. Eles vivem em áreas isoladas no sul da Espanha e se alimentam principalmente de coelhos.

 O Lynx pardinus não se adaptou a outras presas e, pela escassez de coelho, corre risco de extinção (Foto: Fernando Diz-lois / Wikimedia Commons / CreativeCommons)

O Lynx pardinus não se adaptou a outras presas e, pela escassez de coelhos, corre risco de extinção (Foto: Fernando Diz-lois/ Wikimedia Commons/ CreativeCommons)

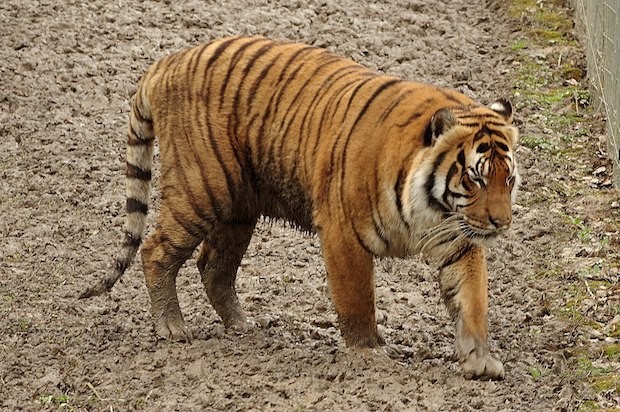
 3. Tigre-malaio

Esta subespécie é encontrada apenas em algumas áreas da península de Málaca, na Malásia, e é o símbolo do país. Estima-se que existam menos de 200 desses animais livres na natureza.

O Panthera tigris tigris aparece nas moedas da Malásia (Foto: Abujoy / Wikimedia Commons / CreativeCommons)

O Panthera tigris jacksoni aparece nas moedas da Malásia (Foto: Abujoy / Wikimedia Commons / CreativeCommons)

4. Guepardo-asiático

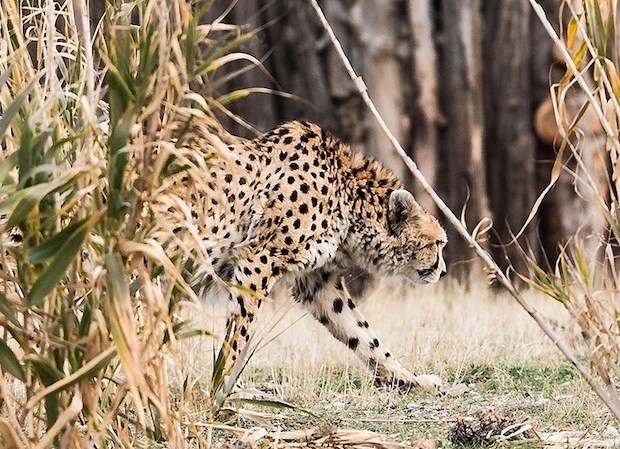
O guepardo-asiático é uma subespécie que já habitou a península arábica, a região do mar do Cáspio, Paquistão e Índia, mas foi extinto nessas áreas no início do século 20. Apenas cerca de 200 animais do tipo ainda vivem na natureza, exclusivamente no Irã.

O Acinonyx jubatus venaticus também é conhecido como guepardo-iraniano (Foto: Erfan Kouchari / Wikimedia Commons / CreativeCommons)

O Acinonyx jubatus venaticus também é conhecido como guepardo-iraniano (Foto: Erfan Kouchari/ Wikimedia Commons/ CreativeCommons)

5. Leopardo-das-neves

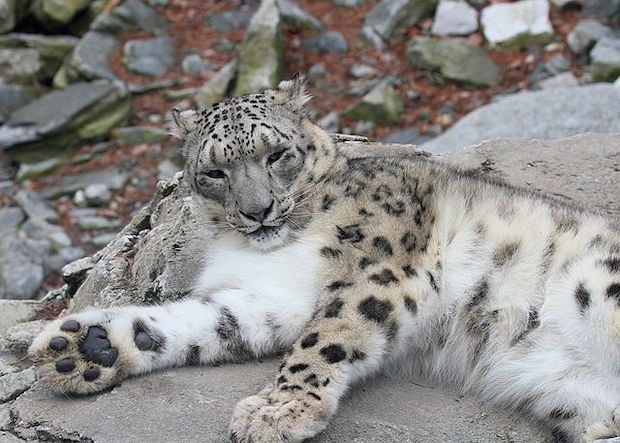
Estes animais vivem nas montanhas da Ásia Central, em altitudes de até 6.700 metros. Assim como os linces canadenses, suas patas são largas, o que os ajuda a caminhar pela neve.

A Panthera uncia é uma espécie muito esquiva quase nunca avistada por humanos (Foto: Greg Hume / Wikimedia Commons / CreativeCommons)

A Panthera uncia é uma espécie muito esquiva quase nunca avistada por humanos (Foto: Greg Hume/ Wikimedia Commons/ CreativeCommons)

6. Gato-andino

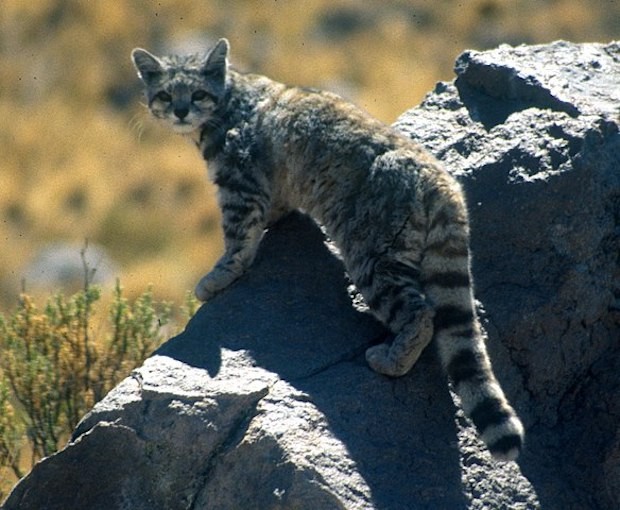
Os gatos andinos são o equivalente americano ao leopardo-das-neves: eles vivem em altitudes de 3.500 a 4.800 metros, próximos a fontes de água na Cordilheira dos Andes. Antes de 1998, eles só haviam sido fotografados duas vezes!

O Leopardus jacobita se alimenta de pequenos roedores (Foto: Jim Sanderson / Wikimedia Commons / CreativeCommons)

O Leopardus jacobita se alimenta de pequenos roedores (Foto: Jim Sanderson/ Wikimedia Commons/ CreativeCommons)

7. Gato-vermelho-de-bornéu

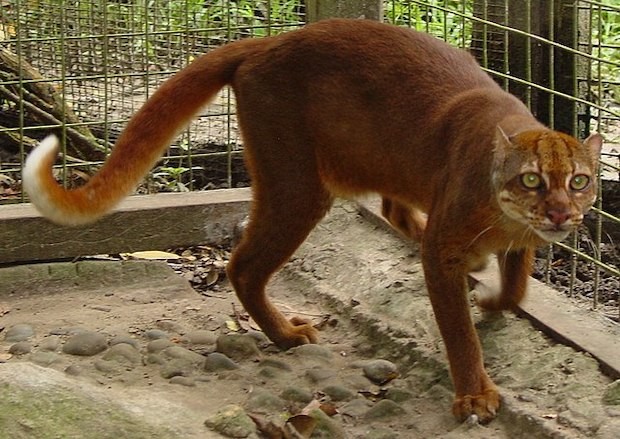
Estes felinos são misteriosos e vivem apenas na ilha de Bornéu. Provavelmente, há menos de 2.200 animais adultos da espécie na natureza.

Apenas 12 animais da espécie Catopuma badia já foram capturados para estudo (Foto: Jim Sanderson / Wikimedia Commons / CreativeCommons)

Apenas 12 animais da espécie Catopuma badia já foram capturados para estudo (Foto: Jim Sanderson/ Wikimedia Commons/ CreativeCommons)

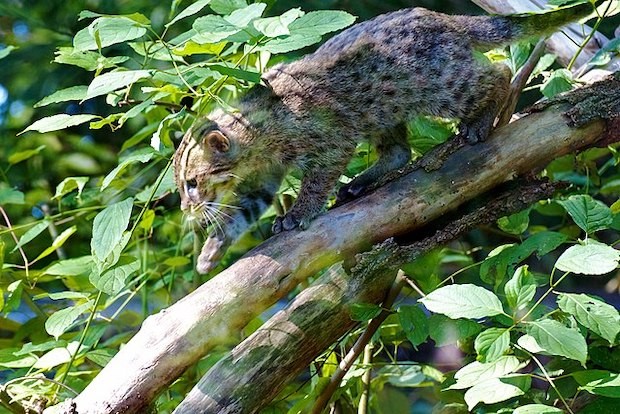
8. Gato-pescador

Os gatos-pescadores vivem em zonas úmidas em partes do sul e sudeste da Ásia, especialmente perto de córregos, rios e manguezais. Eles têm patas espalmadas e são adeptos da captura de peixes e outras pequenas presas.

A espécie Prionailurus viverrinus alimenta-se de peixes (Foto: Michael Bentley / Wikimedia Commons / CreativeCommons)

A espécie Prionailurus viverrinus alimenta-se de peixes (Foto: Michael Bentley/ Wikimedia Commons/ CreativeCommons)

9. Lince-do-canadá

A principal característica que diferencia o lince-do-canadá das outras espécies são suas enormes patas traseiras que parecem raquetes de andar na neve.

O Lynx canadensis também pode ser encontrado nos EUA (Foto: Michael Zahra / Wikimedia Commons / CreativeCommons)

O Lynx canadensis também pode ser encontrado nos EUA (Foto: Michael Zahra / Wikimedia Commons / CreativeCommons)


quinta-feira, 5 de maio de 2022


Antigo playground humano encontrado dentro de pegadas de preguiça

Pegadas fossilizadas de uma preguiça gigante estão estampadas com minúsculos pés humanos

modelo 3D de pegadas de preguiça
David Bustos/Serviço Nacional de Parques

No topo das dunas branqueadas do Parque Nacional White Sands, no Novo México, encontram-se as pegadas de 40 centímetros de uma preguiça gigante, agora extinta, que vagava há mais de 11.500 anos. Dentro dessas trilhas, os pesquisadores notaram pequenas pegadas humanas (modelo 3D retratado) – remanescentes de um antigo playground , New Scientist relata A forma como os rastros foram deformados sugere que um grupo de crianças pequenas brincava em pegadas de preguiça frescas que se encheram de água, de acordo com a análise não publicada. Se confirmada, a cena alegre aumentaria a compreensão dos cientistas sobre alguns dos primeiros humanos a se divertirem na América do Norte pré-histórica.

Correção, 14 de abril, 16h: Uma versão anterior desta história deturpou a idade das pegadas de preguiça fossilizadas.

Maior arte rupestre dos nativos americanos revelada por digitalizações 3D

Glifos anteriormente escondidos na caverna do Alabama têm mais de 1000 anos

Imagem do desenho de uma caverna (esquerda) e desenho com uma sobreposição para destacar o desenho (direita)
Uma figura humana esculpida no teto da 19ª Caverna Sem Nome no Alabama (à esquerda), que os arqueólogos delinearam virtualmente para deixar mais claro (à direita). Jan Simek, Stephen Alvarez

Nas profundezas de uma caverna úmida no norte do Alabama, arqueólogos fizeram uma descoberta gigante. Em um teto subterrâneo de apenas meio metro de altura, pesquisadores descobriram a maior arte rupestre descoberta na América do Norte: gravuras intrincadas de figuras humanas e uma serpente, esculpidas por nativos americanos há mais de 1.000 anos.

“É um trabalho exemplar e importante”, diz Carla Klehm, arqueóloga da Universidade de Arkansas, Fayetteville (UAF).

Embora o sudoeste dos EUA seja famoso por petroglifos esculpidos em desfiladeiros e penhascos, grande parte da arte rupestre do sudeste está escondida no subsolo em cavernas. “Quarenta anos atrás, ninguém pensaria que o sudeste tinha muita arte rupestre”, diz Thomas Pluckhahn, arqueólogo da Universidade do Sul da Flórida que não esteve envolvido com o artigo. Mas, nas últimas décadas, arqueólogos, incluindo Jan Simek, da Universidade do Tennessee, de Knoxville, mostraram que não é esse o caso.

Simek visitou pela primeira vez a 19ª Caverna Sem Nome – chamada assim em artigos científicos para proteger sua localização precisa em terras privadas – na década de 1990. Em suas profundezas frias e úmidas, onde nenhuma luz externa penetra, as lanternas de Simek e seus colegas revelaram impressões fracas no teto representando pássaros, cobras, vespas e padrões sobrepostos de linhas. A arte se assemelhava a desenhos encontrados em cerâmica no sudeste do período Woodland, entre 1000 aC e 1000 dC

O teto da caverna desce a pouco mais de meio metro de altura onde os glifos estão localizados, então os pesquisadores tiveram que se deitar de costas para ver a maioria das imagens, explica Simek. Não há lugar para ficar e ver todo o teto, diz ele.

Para obter uma imagem mais completa da arte, Simek revisitou a caverna em 2017 com Stephen Alvarez, fotógrafo e fundador da organização sem fins lucrativos Ancient Art Archive, que documenta arte rupestre antiga em todo o mundo e a compartilha online via realidade virtual . Alvarez queria usar uma nova técnica chamada fotogrametria 3D para criar um modelo 3D realista da caverna - e ver se eles poderiam descobrir imagens adicionais que não foram observadas no espaço apertado.

Os pesquisadores desceram na caverna e usaram um tripé para começar a tirar fotos. Durante um período de 2 meses, eles tiraram quase 16.000 imagens sobrepostas e de alta resolução. Em seguida, eles juntaram as fotos, usando software de computador para alinhar as imagens no espaço 3D; os pesquisadores poderiam então manipular o modelo resultante usando software de realidade virtual, explica Alvarez. “Podíamos iluminar o espaço da maneira que quiséssemos e largar o chão” para virtualmente dar um passo para trás e ver todo o teto, diz ele.

Pesquisador Stephen Alvarez trabalhando na 19ª Caverna Sem Nome
O fotógrafo Stephen Alvarez ilumina a 19ª Caverna Sem Nome para fotografar seu teto. Alan Cressler

À medida que os pesquisadores manipulavam suas imagens para tornar os desenhos mais visíveis, cinco enormes glifos que antes eram muito grandes e fracos para serem vistos entraram em relevo. Eles incluíam três seres humanos vestidos com roupas reais, uma figura rodopiante com uma cauda semelhante a uma cascavel e uma longa serpente com escamas. As imagens medem entre 0,93 metros e 3,37 metros de comprimento, tornando a maior delas a maior arte rupestre da América do Norte , relatam os pesquisadores hoje na Antiquity .

As imagens, provavelmente feitas por gravação em lama fresca no teto úmido, não são datadas. Fragmentos de carvão e rastros de fumaça de madeira nas paredes da caverna, talvez das tochas dos artistas, datam do primeiro milênio. Os nativos americanos da floresta que viviam na área naquela época residiam em assentamentos de aldeias, construíam grandes montes de terra para culto religioso e negociavam extensivamente no sul, leste e centro-oeste. Seus descendentes permaneceram na região por séculos; mas no final de 1800, muitos foram forçados a ir para o oeste sob as políticas de remoção dos nativos americanos do governo dos EUA.

As figuras recém-descritas compartilham características com outras formações de arte rupestre no sudeste, como desenhos de penhascos em Painted Bluff, no Alabama, e também no sudoeste, como os pictogramas humanos no Canyonlands National Park. As figuras também são semelhantes às encontradas na cerâmica estilo Woodland. Embora o significado exato dos glifos não seja claro, cavernas como aquela em que foram encontrados estavam frequentemente ligadas ao submundo, dizem os pesquisadores.

Ao completar o trabalho, os autores consultaram a Banda Oriental de índios Cherokee, cuja terra natal tribal inclui a área onde a caverna está localizada.

A criação dos glifos exigia “um grau extraordinário de habilidade artística”, diz a UAF George Sabo. Mas muito sobre os artistas permanece um mistério. “Quem eram eles em suas comunidades?” ele se pergunta.

Embora a localização da caverna não seja divulgada para proteger a arte de vândalos, a equipe criou um vídeo de seu modelo para que qualquer pessoa possa explorá-lo virtualmente. Klehm está animado para ver a fotogrametria 3D continuar a revelar arte oculta em outros locais - e torná-la acessível. “[Isso] pode nos ajudar a ver coisas que não podemos ver, a ir além do que o olho humano está acostumado a procurar”, diz ela.


doi: 10.1126/science.abq8329


 1.2 A ATMOSFERA

        A atmosfera é uma camada relativamente fina de gases e material particulado (aerossóis) que envolve a Terra. De fato, 99% da massa da atmosfera está contida numa camada de ~0,25% do diâmetro da Terra (~32 km). Esta camada é essencial para a vida e o funcionamento ordenado dos processos físicos e biológicos sobre a Terra. A atmosfera protege os organismos da exposição a níveis arriscados de radiação ultravioleta, contém os gases necessários para os processos vitais de respiração celular e fotossíntese e fornece a água necessária para a vida.

Fig. 1.1 Composição do ar seco

        a) Composição da Atmosfera

        A composição do ar não é constante nem no tempo, nem no espaço. Contudo se removêssemos as partículas suspensas, vapor d'água e certos gases variáveis, presentes em pequenas quantidades, encontraríamos uma composição muito estável sobre a Terra, até uma altitude de ~ 80 km (Fig. 1.1 e Tab. 1.1).
 

 Gás
Porcentagem 
Partes por Milhão
Nitrogênio
78,08
780.000,0
Oxigênio
20,95
209.460,0
Argônio
0,93
9.340,0
Dióxido de carbono
0,035
350,0
Neônio
0,0018
18,0
Hélio
0,00052
5,2
Metano
0,00014
1,4
Kriptônio
0,00010
1,0
Óxido nitroso
0,00005
0,5
Hidrogênio
0,00005
0,5
Ozônio
0,000007
0,07
Xenônio
0,000009
0,09

Tabela 1.1 Principais gases do ar seco

        O nitrogênio e o oxigênio ocupam até 99% do volume do ar seco e limpo. A maior parte do restante 1% é ocupado pelo gás inerte argônio. Embora estes elementos sejam abundantes eles tem pouca influência sobre os fenômenos do tempo. A importância de um gás ou aerossol atmosférico não está relacionado a sua abundância relativa. Por exemplo, o dióxido de carbono, o vapor d'água, o ozônio e os aerossóis ocorrem em pequenas concentrações mas são importantes para os fenômenos meteorológicos ou para a vida.

        Embora constitua apenas 0,03% da atmosfera, o dióxido de carbono é essencial para a fotossíntese:

        Por ser um eficiente absorvedor de energia radiante (de onda longa) emitida pela Terra, ele influencia o fluxo de energia através da atmosfera, fazendo com que a baixa atmosfera retenha o calor, tornando a Terra própria à vida. O percentual de dióxido de carbono vem crescendo devido à queima de combustíveis fósseis tais como o carvão, petróleo e gás natural. Muito do dióxido de carbono adicional é absorvido pelas águas dos oceanos ou usado pelas plantas mas em torno de 50% permanece no ar. Projeções indicam que na 2ª metade do próximo século os níveis de  serão o dobro do que eram no início do século 20. Embora o impacto deste crescimento seja difícil de prever, acredita-se que ele trará um aquecimento na baixa troposfera e portanto produzirá mudanças climáticas globais.

        O vapor d'água é um dos mais variáveis gases na atmosfera e também tem pequena participação relativa. Nos trópicos úmidos e quentes constitui não mais que 4% do volume da baixa atmosfera, enquanto sobre os desertos e regiões polares pode constituir uma pequena fração de 1%. Contudo, sem vapor d'água não há nuvens, chuva ou neve. Além disso, o vapor d'água também tem grande capacidade de absorção, tanto da energia radiante emitida pela Terra (em ondas longas), como também de alguma energia solar. Portanto, junto com o , o vapor d'água atua como uma manta para reter calor na baixa atmosfera. Como a água é a única substância que pode existir nos 3 estados (sólido, líquido e gasoso) nas temperaturas e pressões existentes normalmente sobre a Terra, suas mudanças de estado absorvem ou liberam calor latente. Desta maneira, calor absorvido em uma região é transportado por ventos para outros locais e liberado. O calor latente liberado, por sua vez, fornece a energia que alimenta tempestades ou modificações na circulação atmosférica.

        O ozônio, a forma triatômica do oxigênio (), é diferente do oxigênio que respiramos, que é diatômico (). Ele tem presença relativamente pequena e distribuição não uniforme, concentrando-se entre 10 e 50 km (e em quantidades bem menores, no ar poluído de cidades), com um pico em torno de 25 km. Sua distribuição varia também com a latitude, estação do ano, horário e padrões de tempo, podendo estar ligada a erupções vulcânicas e atividade solar. A formação do ozônio na camada entre 10-50 km é resultado de uma série de processos que envolvem a absorção de radiação solar. Moléculas de oxigênio () são dissociadas em átomos de oxigênio após absorverem radiação solar de ondas curtas (ultravioleta). O ozônio é formado quando um átomo de oxigênio colide com uma molécula de oxigênio em presença de uma 3ª molécula que permite a reação mas não é consumida no processo . A concentração do ozônio nesta camada deve-se provavelmente a dois fatores:

(1) a disponibilidade de energia ultravioleta e

(2) a densidade da atmosfera é suficiente para permitir as colisões necessárias entre oxigênio molecular e oxigênio atômico.

        A presença do ozônio é vital devido a sua capacidade de absorver a radiação ultravioleta do sol na reação de fotodissociação . O átomo livre recombina-se novamente para formar outra molécula de ozônio, liberando calor. Na ausência da camada de ozônio a radiação ultravioleta seria letal para a vida. Desde os anos 70 tem havido contínua preocupação de que uma redução na camada de ozônio na atmosfera possa estar ocorrendo por interferência humana. Acredita-se que o maior impacto é causado por um grupo de produtos químicos conhecido por clorofluorcarbonos (CFCs). CFCs são usados como propelentes em 'sprays' aerossol, na produção de certos plásticos e em equipamentos de refrigeração e condicionamento de ar. Como os CFCs são praticamente inertes (não quimicamente ativos) na baixa atmosfera, uma parte deles eventualmente atinge a camada de ozônio, onde a radiação solar os separa em seus átomos constituintes. Os átomos de cloro assim liberados, através de uma série de reações acabam convertendo parte do ozônio em oxigênio. A redução do ozônio aumentaria o número de casos de certos tipos de câncer de pele e afetaria negativamente colheitas e ecossistemas.

        Além de gases, a atmosfera terrestre contém pequenas partículas, líquidas e sólidas, chamadas aerossóis. Alguns aerossóis - gotículas de água e cristais de gelo - são visíveis em forma de nuvens. A maior concentração é encontrada na baixa atmosfera, próximo a sua fonte principal, a superfície da Terra. Eles podem originar-se de incêndios florestais, erosão do solo pelo vento, cristais de sal marinho dispersos pelas ondas que se quebram, emissões vulcânicas e de atividades agrícolas e industriais. Alguns aerossóis podem originar-se na parte superior da atmosfera, como a poeira dos meteoros que se desintegram. Embora a concentração dos aerossóis seja relativamente pequena, eles participam de processos meteorológicos importantes. Em 1° lugar, alguns aerossóis agem como núcleos de condensação para o vapor d'água e são importantes para a formação de nevoeiros, nuvens e precipitação. Em 2° lugar, alguns podem absorver ou refletir a radiação solar incidente, influenciando a temperatura. Assim, quando ocorrem erupções vulcânicas com expressiva liberação de poeira, a radiação solar que atinge a superfície da Terra pode ser sensivelmente alterada. Em 3° lugar, a poeira no ar contribui para um fenômeno ótico conhecido: as várias tonalidades de vermelho e laranja no nascer e pôr-do-sol.

        b) Estrutura Vertical da Atmosfera

        b.1) Perfis Verticais de Pressão e Densidade

Fig. 1.2 Perfil vertical médio da pressão do ar

        Sabemos que o ar é compressível, isto é, seu volume e sua densidade são variáveis. A força da gravidade comprime a atmosfera de modo que a máxima densidade do ar (massa por unidade de volume) ocorre na superfície da Terra. O decréscimo da densidade do ar com a altura é bastante rápido (decréscimo exponencial) de modo que na altitude de ~5,6 km a densidade já é a metade da densidade ao nível do mar e em ~16 km já é de apenas 10% deste valor e em ~32 km apenas 1%.

        O rápido decréscimo da densidade do ar significa também um rápido declínio da pressão do ar com a altitude. A pressão da atmosfera numa determinada altitude é simplesmente o peso da coluna de ar com área de seção reta unitária, situada acima daquela altitude. No nível do mar a pressão média é de ou , que corresponde a um peso de 1kg de ar em cada . O perfil vertical médio da pressão do ar é mostrado na Fig. 1.2. O decréscimo da densidade do ar segue uma curva semelhante. Não é possível determinar onde termina a atmosfera, pois os gases se difundem gradualmente no vazio do espaço.

        Quando estudarmos a pressão atmosférica, discutiremos uma interpretação física da Fig. 1.2.

        b.2) Perfil Vertical de Temperatura

Fig. 1.3 - Perfil vertical médio de temperatura na atmosfera

        Por conveniência de estudo a atmosfera é usualmente subdividida em camadas concêntricas, de acordo com o perfil vertical médio de temperatura (Fig. 1.3).

        A camada inferior, onde a temperatura decresce com a altitude, é a troposfera, que se estende a uma altitude média de 12 km (~ 20 km no equador e ~ 8 km nos polos). Nesta camada a taxa de variação vertical da temperatura tem valor médio de 6,5°C/km. Esta taxa na realidade, é bastante variável. De fato, algumas vezes a temperatura cresce em finas camadas, caracterizando uma inversão de temperatura. A troposfera é o principal domínio de estudo dos meteorologistas, pois é nesta camada que ocorrem essencialmente todos os fenômenos que em conjunto caracterizam o tempo. Na troposfera as propriedades atmosféricas são facilmente transferidas por turbulência de grande escala e mistura. O seu limite superior é conhecido como tropopausa.

        A camada seguinte, a estratosfera ,se estende até ~50 km. Inicialmente, por uns 20 km, a temperatura permanece quase constante e depois cresce até o topo da estratosfera, a estratopausa. Temperaturas mais altas ocorrem na estratosfera porque é nesta camada que o ozônio está concentrado. Conforme mencionamos, o ozônio absorve radiação ultravioleta do sol. Consequentemente, a estratosfera é aquecida.

        Na mesosfera a temperatura novamente decresce com a altura, até a mesopausa, que está em torno de 80 km, onde atinge ~ -90°C. Acima da mesopausa, e sem limite superior definido, está a termosfera, onde a temperatura é inicialmente isotérmica e depois cresce rapidamente com a altitude, como resultado da absorção de ondas muito curtas da radiação solar por átomos de oxigênio e nitrogênio. Embora as temperaturas atinjam valores muito altos, estas temperaturas não são exatamente comparáveis àquelas experimentadas próximo a superfície da Terra. Temperaturas são definidas em termos da velocidade média das moléculas. Como as moléculas dos gases da termosfera se movem com velocidades muito altas, a temperatura é obviamente alta. Contudo, a densidade é tão pequena que muito poucas destas moléculas velozes colidiriam com um corpo estranho; portanto, só uma quantidade insignificante de energia seria transferida. Portanto, a temperatura de um satélite em órbita seria determinada principalmente pela quantidade de radiação solar que ele absorve e não pela temperatura do ar circundante.

        Os perfis verticais de pressão e temperatura do ar (Figs. 1.2 e 1.3) aqui apresentados são baseados na atmosfera padrão, um modelo da atmosfera real. Representa o estado da atmosfera numa média para todas as latitudes e estações. Ela apresenta valores fixos da temperatura e pressão do ar ao nível do mar (15°C e 1013,25mb) e perfis verticais fixos de temperatura e pressão.

        c) A Ionosfera

        Entre as altitudes de 80 a 900 km (na termosfera) há uma camada com concentração relativamente alta de íons, a ionosfera. Nesta camada a radiação solar de alta energia de ondas curtas (raios X e radiação ultravioleta) tira elétrons de moléculas e átomos de nitrogênio e oxigênio, deixando elétrons livres e íons positivos. A maior densidade de íons ocorre próximo a 300 km. A concentração de íons é pequena abaixo de 80 km porque nestas regiões muito da radiação de ondas curtas necessária para ionização já foi esgotada. Acima de ~400 km a concentração é pequena por causa da extremamente pequena densidade do ar, possibilitando a produção de poucos íons.

        A estrutura da ionosfera consiste de 3 camadas de densidade variável de íons: as camadas D, E e F, com altitude e densidade de íons crescente. Como a produção de íons requer a radiação solar direta, a concentração de íons diminui do dia para a noite, particularmente nas camadas D e E, onde os elétrons se recombinam com íons positivos durante a noite. A taxa de recombinação depende da densidade do ar, isto é, quanto mais denso o ar maior a probabilidade de colisão e recombinação das partículas. Assim, a camada D desaparece à noite, a camada E se enfraquece consideravelmente, mas a camada F continua presente à noite, embora enfraquecida, pois a densidade nesta camada é muito pequena.

        A ionosfera tem pequeno impacto sobre o tempo, mas tem grande influência sobre a transmissão de ondas de rádio na banda AM. Durante o dia as ondas de rádio tendem a ser absorvidas nas dois camadas mais baixas, especialmente na camada D. A camada F reflete as ondas de rádio durante o dia e a noite. Contudo , mesmo que as ondas consigam atravessar as camadas D e E e ser refletidas na camada F, elas serão absorvidas no seu caminho de volta para a Terra. À noite, contudo, a camada absorvedora D desaparece e as ondas podem atingir a camada F mais facilmente e ser refletidas para a superfície da Terra. Isto explica porque à noite os sinais de rádio atingem grandes distâncias sobre a Terra (Fig. 1.4).

Fig. 1.4 - Influência da Ionosfera sobre a transmissão de ondas de rádio.

        Na ionosfera ocorre também o fenômeno da aurora boreal (no Hemisfério Norte) ou austral (no Hemisfério Sul). As auroras estão relacionadas com o vento solar , um fluxo de partículas carregadas, prótons e elétrons, emanadas do sol com alta energia. quando estas partículas se aproximam da Terra, elas são capturadas pelo campo magnético da Terra. Sob a ação da força exercida pelo campo magnético sobre cargas em movimento (), elas descrevem trajetórias espiraladas ao longo das linhas de indução  do campo magnético terrestre, movendo-se para frente e para trás entre os pólos magnéticos sul e norte, onde são "refletidas" devido ao aumento do campo magnético. Estes elétrons e prótons aprisionados constituem os chamados "cinturões radioativos de Van Allen". Algumas partículas acompanham o campo magnético da Terra em direção aos pólos geomagnéticos, penetrando na ionosfera, onde colidem com átomos e moléculas de oxigênio e nitrogênio, que são temporariamente energizados. Quando estes átomos e moléculas retornam do seu estado energético excitado, eles emitem energia na forma de luz, o que constitui as auroras. As zonas de maior ocorrência das auroras situam-se em torno de 20-30° ao redor dos pólos geomagnéticos (76°N, 102°W; 68°S, 145°E). A atividade auroral varia com a atividade do sol. Quando o sol está calmo, a zona auroral diminui; quando o sol está ativo (com explosões solares), intensificando o vento solar, a zona auroral se expande em direção ao equador.

        No próximo capítulo o maior objetivo é examinar a força motora do tempo. Para isto, é necessária a compreensão do fornecimento de energia pelo Sol e das conversões de energia na atmosfera.


Para saber mais sobre auroras e campo magnético terrestre:

BRIEN, J. O., 1963: Radiation belts, Scientific American, 208, 5, 84-96.

AKASOFU,S.I., 1989: The dynamic aurora, Scientific American, 260, 5, 54-63.