quinta-feira, 27 de junho de 2024

Translator


A mais antiga alegação de fóssil do Homo sapiens reescreve a história da nossa espécie

Este artigo foi atualizado

Restos de Marrocos datados de há 315 mil anos atrasam as origens da nossa espécie em 100 mil anos – e sugerem que não evoluímos apenas na África Oriental.

Fósseis dos primeiros membros do Homo sapiens encontrados em Marrocos (à esquerda) apresentam um formato de crânio mais alongado do que os humanos modernos (à direita). Crédito: NHM Londres

Os pesquisadores dizem que encontraram os restos mais antigos do Homo sapiens já registrados em um lugar improvável: Marrocos.

Num sítio arqueológico perto da costa atlântica, achados de ossos de crânio, rosto e maxilar identificados como sendo de membros primitivos da nossa espécie foram datados de cerca de 315 mil anos atrás. Isso indica que o H. sapiens apareceu mais de 100 mil anos antes do que se pensava: a maioria dos investigadores situa as origens da nossa espécie na África Oriental, há cerca de 200 mil anos.

As descobertas, publicadas em 7 de junho na Nature 1 , 2 , não significa que o H. sapiens tenha se originado no Norte da África. Em vez disso, sugerem que os primeiros membros da espécie evoluíram por todo o continente, dizem os cientistas.

Como a China está reescrevendo o livro sobre as origens humanas

“Até agora, o conhecimento comum era que a nossa espécie emergiu provavelmente muito rapidamente algures num ‘Jardim do Éden’ que estava localizado muito provavelmente na África Subsaariana”, diz Jean-Jacques Hublin, autor do estudo e diretor do o Instituto Max Planck de Antropologia Evolutiva em Leipzig, Alemanha. Agora, “eu diria que o Jardim do Éden em África é provavelmente África – e é um grande, grande jardim.” Hublin foi um dos líderes da escavação de uma década no sítio marroquino, chamado Jebel Irhoud.

Mandíbulas e ferramentas

Hublin conheceu Jebel Irhoud pela primeira vez no início dos anos 1980, quando lhe foi mostrado um espécime intrigante de um maxilar inferior de uma criança do local. Os mineiros descobriram ali um crânio humano quase completo em 1961; escavações posteriores também encontraram uma caixa craniana, bem como sofisticadas ferramentas de pedra e outros sinais de presença humana.

Os ossos “pareciam demasiado primitivos para serem compreensíveis, por isso as pessoas tiveram algumas ideias estranhas”, diz Hublin. Os investigadores adivinharam que eles tinham 40.000 anos e propuseram que os Neandertais viveram no Norte de África.

Mais recentemente, os investigadores sugeriram que os humanos Jebel Irhoud eram uma espécie “arcaica” que sobreviveu no Norte de África até que o H. sapiens do sul do Sahara os substituiu. A África Oriental é onde a maioria dos cientistas situa as origens da nossa espécie : dois dos mais antigos fósseis conhecidos de H. sapiens – crânios de 196.000 e 160.000 anos de idade 3 , 4 — vêm da Etiópia, e estudos de DNA de populações atuais em todo o mundo apontam para uma origem africana há cerca de 200 mil anos 5 .

Escavação de uma década

Hublin visitou Jebel Irhoud pela primeira vez na década de 1990, apenas para descobrir que o local estava enterrado. Ele não teve tempo nem dinheiro para escavá-lo até 2004, depois de ingressar na Sociedade Max Planck. Sua equipe alugou um trator e uma escavadeira para remover cerca de 200 metros cúbicos de rocha que bloqueavam o acesso.

O mais antigo DNA humano antigo detalha o surgimento dos Neandertais

O seu objetivo inicial era atualizar o local utilizando métodos mais recentes, mas no final dos anos 2000, a equipa descobriu mais de 20 novos ossos humanos relativos a pelo menos cinco indivíduos, incluindo uma mandíbula extraordinariamente completa, fragmentos de crânio e ferramentas de pedra. Uma equipe liderada pelo cientista arqueológico Daniel Richter e pela arqueóloga Shannon McPherron, também do Instituto Max Planck de Antropologia Evolutiva, datou o local e todos os restos humanos encontrados lá entre 280 mil e 350 mil anos de idade, usando dois métodos diferentes.

A nova datação e a parcela de novos ossos humanos convencem Hublin de que os primeiros H. sapiens viveram em Jebel Irhoud. “É um rosto que você poderia cruzar na rua hoje”, diz ele. Os dentes - embora grandes em comparação com os dos humanos de hoje - combinam melhor com o H. sapiens do que com os neandertais ou outros humanos arcaicos. E os crânios de Jebel Irhoud, alongados em comparação com os do H. sapiens posterior , sugerem que os cérebros destes indivíduos eram organizados de forma diferente.

Uma reconstrução facial de fragmentos de um crânio de Homo sapiens encontrado em Jebel Irhoud, Marrocos. Crédito: Hublin/Ben-Ncer/Bailey/et al./Nature

Isto oferece pistas sobre a evolução da linhagem do H. sapiens até aos humanos anatomicamente modernos de hoje. Hublin sugere que os humanos anatomicamente modernos podem ter adquirido seus rostos característicos antes que ocorressem mudanças no formato de seus cérebros. Além disso, a mistura de características observadas nos restos mortais de Jebel Irhoud e noutros fósseis semelhantes ao H. sapiens de outras partes de África aponta para uma génese diversa para a nossa espécie e levanta dúvidas sobre uma origem exclusivamente da África Oriental.

Inscreva-se, é grátis!

“O que pensamos é que antes de 300 mil anos atrás, houve uma dispersão da nossa espécie – ou pelo menos da versão mais primitiva da nossa espécie – por toda a África”, diz Hublin. Nessa época, o Saara era verde e repleto de lagos e rios . Os animais que percorriam a savana da África Oriental, incluindo gazelas, gnus e leões, também viviam perto de Jebel Irhoud, sugerindo que estes ambientes já estiveram ligados.

Evidência genômica

Uma origem anterior do H. sapiens é ainda apoiada por um estudo de DNA antigo publicado no servidor de pré-impressão bioRxiv em 5 de junho. 6 . Pesquisadores liderados por Mattias Jakobsson, da Universidade de Uppsala, na Suécia, sequenciaram o genoma de um menino que viveu na África do Sul há cerca de 2.000 anos – apenas o segundo genoma antigo da África Subsaariana a ser sequenciado . Eles determinaram que os seus antepassados ​​da linhagem H. sapiens se separaram dos de algumas outras populações africanas atuais há mais de 260 mil anos.

Hublin diz que sua equipe tentou e não conseguiu obter DNA dos ossos de Jebel Irhoud. Uma análise genômica poderia ter estabelecido claramente se os restos mortais pertencem à linhagem que leva aos humanos modernos.

O paleontólogo Jeffrey Schwartz, da Universidade de Pittsburgh, Pensilvânia, diz que as novas descobertas são importantes — mas não está convencido de que devam ser consideradas H. sapiens . Muitos fósseis de aparência diferente foram agrupados sob as espécies, pensa ele, complicando os esforços para interpretar novos fósseis e para criar cenários sobre como, quando e onde a nossa espécie emergiu.

“ O Homo sapiens , apesar de tão conhecido, era uma espécie sem passado até agora”, afirma María Martínon-Torres, paleoantropóloga da University College London, salientando a escassez de fósseis ligados às origens humanas em África. Mas a falta de características que, diz ela, definem a nossa espécie — como o queixo e a testa proeminentes — convence-a de que os restos mortais de Jebel Irhoud não devem ser considerados H. sapiens .

O site em Jebel Irhoud, Marrocos. Quando o local foi ocupado pelos primeiros humanos, teria sido uma caverna; a rocha de cobertura e muitos sedimentos foram removidos por obras na década de 1960. Crédito: Shannon McPherron, MPI EVA Leipzig/CC-BY-SA 2.0

Vanguarda da evolução

Chris Stringer, paleoantropólogo do Museu de História Natural de Londres, coautor de um artigo do News & Views que acompanha os estudos , diz que ficou perplexo com os restos mortais de Jebel Irhoud quando os viu pela primeira vez no início dos anos 1970. Ele sabia que não eram neandertais, mas pareciam muito jovens e de aparência primitiva para serem H. sapiens . Mas com as datas mais antigas e os novos ossos, Stringer concorda que os ossos de Jebel Irhoud permanecem firmemente na do H. sapiens linhagem . “Eles transferem Marrocos de um suposto atraso na evolução da nossa espécie para uma posição de destaque”, acrescenta.

Para Hublin, que nasceu na vizinha Argélia e fugiu aos oito anos de idade quando a guerra de independência começou, regressar ao Norte de África, para um local que o cativou durante décadas, foi uma experiência emocionante. “Sinto que tenho um relacionamento pessoal com este site”, diz ele. “Não posso dizer que encerramos um capítulo, mas chegamos a uma conclusão incrível depois dessa longa jornada. Isso me surpreende.

Histórico de alterações

  • 08 de junho de 2017

    Uma versão anterior desta história distorceu as datas de escavação do sítio Jebel Irhoud.

Referências

  1. Hublin, J. et al. Natureza 546 , 289-292 (2017).

    Artigo   CAS   ADS   Google Scholar  

  2. Richter, D. et al. Natureza 546 , 293-296 (2017).

    Artigo   CAS   ADS   Google Scholar  

  3. McDougall, I., Brown, FH & Fleagle, JG Nature 433 , 733–736 (2005).

    Artigo   CAS   ADS   Google Scholar  

  4. Branco, TD et al. Natureza 423 , 742–747 (2003).

    Artigo   CAS   ADS   Google Scholar  

  5. Cann, RL, Stoneking, M. & Wilson, AC Nature 325 , 31-36 (1987).

    Artigo   CAS   ADS   Google Scholar  

  6. Schlebusch, C. et al. Pré-impressão em http://biorxiv.org/content/early/2017/06/05/145409 (2017).

Baixar referências

Informações adicionais

Leia o artigo relacionado de Notícias e Visualizações: ' Sobre a origem da nossa espécie '

Links Relacionados

Links Relacionados

Links relacionados em Pesquisa da Natureza

Como a China está reescrevendo o livro sobre as origens humanas 12/07/2016

O DNA humano antigo mais antigo detalha o surgimento dos Neandertais em 14 de março de 2016

Dentes da China revelam a primeira jornada humana para fora da África 14 de outubro de 2015

'Poço de ossos' captura a evolução do Neandertal em flagrante 19 de junho de 2014

Estudos retardam o relógio do DNA humano 2012-Set-18

Etiópia é a melhor escolha para berço do Homo sapiens 2005-Fev-16

Direitos e permissões

Reimpressões e permissões

Sobre este artigo

Verifique se há atualizações.  Verifique a moeda e a autenticidade via CrossMark

Cite este artigo

Callaway, E. A afirmação mais antiga do fóssil do Homo sapiens reescreve a história de nossa espécie. Natureza (2017). https://doi.org/10.1038/nature.2017.22114

quarta-feira, 26 de junho de 2024

Translator


As cobras são construídas para evoluir em velocidades incríveis, e os cientistas não sabem ao certo por quê!

As cobras têm um relógio evolutivo que funciona muito mais rápido do que muitos outros grupos de animais, permitindo-lhes diversificar e evoluir em velocidades super rápidas, descobriram os pesquisadores.

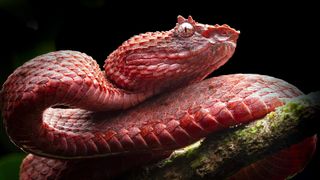
Uma víbora dos cílios dos trópicos do Novo Mundo.

As cobras, como esta víbora dos cílios, parecem evoluir muito rapidamente, permitindo-lhes adaptar-se, diversificar-se e espalhar-se pelo mundo. (Crédito da imagem: Alejandro Arteaga, Fundação Khamai) 


As cobras têm um relógio evolutivo sobrecarregado que lhes permite adaptar-se a taxas muito mais rápidas do que outros répteis, descobriram os cientistas. Essa habilidade os ajudou a se tornarem “vencedores” evolutivos e a se espalharem por todo o planeta.

" As cobras são como a 'singularidade' do Big Bang na cosmologia - uma expansão dramática da diversidade nas espécies e suas ecologias, ligada a algum evento que pode ter ocorrido no início da história evolutiva das cobras", disse o autor principal Pascal Title , macroecologista evolucionista da Stony Brook University, em Nova York, disse em comunicado.

Em um novo estudo, publicado quinta-feira (22 de fevereiro) na revista Science , os pesquisadores investigaram o que torna os grupos de animais vencedores evolutivos – em particular, por que certos grupos são capazes de diversificar em mais espécies e parecer melhores em sobreviver a eventos como extinções em massa – o autor do estudo , Daniel Rabosky , especialista em biologia evolutiva da Universidade de Michigan, cuja pesquisa se concentra na macroevolução, disse ao WordsSideKick.com por e-mail.

Os cientistas analisaram os escamatos, a ordem dos répteis que inclui cobras e lagartos e inclui mais de 11.000 espécies. Neste grupo, as cobras, em particular, são amplamente diversas - as cerca de 4.000 espécies de cobras conhecidas variam de cobras marinhas venenosas , constritoras gigantes e cobras encapuzadas a pequenas cobras que escavam para se alimentar de formigas e cupins.

Relacionado: A maior cobra do mundo (e 9 outras serpentes gigantes)

Para descobrir por que as cobras são uma história de sucesso evolutivo, os pesquisadores realizaram um enorme estudo dos genomas de quase 1.000 cobras e lagartos. Eles também examinaram as preferências alimentares observando o conteúdo estomacal de mais de 60.000 espécimes de museu e observações de campo. Com esses dados, eles construíram uma árvore evolutiva abrangente de mudanças corporais e alimentares no grupo ao longo do tempo. Eles então usaram modelos matemáticos e estatísticos para observar como as cobras e os lagartos evoluíram.

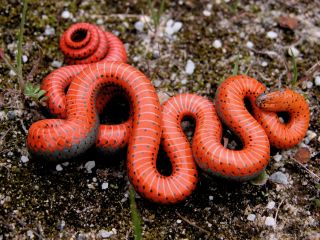
Uma cobra ocidental de pescoço anelado ( Diadophis punctatus ), nativa do oeste dos EUA. Existem cerca de 4.000 espécies de cobras conhecidas na Terra. (Crédito da imagem: Alison Davis Rabosky, Universidade de Michigan)

Suas descobertas sugerem que as cobras passaram por diversas explosões evolutivas e evoluíram três vezes mais rápido que os lagartos, em termos de diversidade.  

Depois de provavelmente emergir pela primeira vez há cerca de 128 milhões de anos, houve uma enorme explosão em algum ponto entre essa época e 70 milhões de anos atrás, durante o período Cretáceo (145 milhões a 66 milhões de anos atrás), e outro grande impulso depois que os dinossauros foram extintos em o final do Cretáceo. 

Este rápido ritmo de evolução continua até hoje, mostram os modelos da equipe.

“Comparados aos lagartos, eles mudaram de forma relativamente rápida e continuaram a fazê-lo ao longo do tempo”, disse Rabosky. "Portanto, diríamos também que a contínua 'explosão evolutiva' das cobras ainda está em curso hoje e parece parcialmente impulsionada pelo fato de que a taxa de evolução - o seu 'relógio evolutivo', por assim dizer - está simplesmente correndo muito mais rápido do que muitos outros grupos de animais. Este relógio evolutivo acelerado é realmente importante porque permite que as cobras evoluam rapidamente novas características que podem aproveitar as oportunidades que surgem.

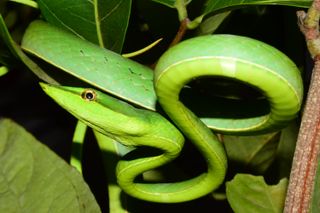
Cobra trepadeira verde ( Oxybelis fulgidus ) no Brasil — espécie que se adaptou para comer sapos, lagartos e pássaros. (Crédito da imagem: Ivan Prates, Universidade de Michigan) 
 

A flexibilidade evolutiva das cobras permite-lhes mudar a forma do corpo e a dieta “muito rapidamente”, disse ele. A “singularidade” inicial que levou ao sucesso das cobras parece ter começado com o desenvolvimento de corpos sem membros, crânios flexíveis e sistemas avançados de detecção de produtos químicos.

Estas mudanças permitiram-lhes atingir uma enorme variedade de presas, proporcionando a estrutura para que espécies individuais se desenvolvessem e se especializassem. Pesquisas anteriores publicadas em 2021 mostram que a diversidade em suas dietas explodiu após a extinção dos dinossauros, com as cobras evoluindo rapidamente em novas adaptações para tirar vantagem do novo mundo em que se encontravam – um mundo sem dinossauros no qual os mamíferos estavam começando a ganhar uma posição segura. .

Mas por que as cobras acabaram com um relógio evolutivo rápido ainda é um mistério. “Esta é a grande questão para nós”, disse Rabosky. "Ainda não podemos explicar isso... Mas essa é a natureza da ciência, certo? Normalmente, resolver um mistério anda de mãos dadas com o levantamento de novas questões que você precisa responder."

E as cobras provavelmente continuam a se adaptar e a evoluir em um tempo super rápido. “Isto é obviamente especulação, mas não vemos quaisquer sinais de que a rápida evolução das cobras esteja a abrandar”, disse Rabosky. “As cobras parecem continuar a desenvolver novos modos de vida e tenho todas as expectativas de que isso continuará no futuro.”


Translator


O esqueleto de um mamífero do Cretáceo de Madagascar reflete a insularidade de longo prazo

Abstrato

O registro fóssil de mamíferos (mamíferos e seus parentes mais próximos) da era Mesozóica do supercontinente meridional Gondwana é muito menos extenso do que o de sua contraparte norte, Laurásia. 1 , 2 . Entre as formas mamíferas do Mesozoico, Gondwanatheria é um dos clados menos conhecidos, anteriormente representado por apenas um único crânio e mandíbulas e dentes isolados. 1 , 2 , 3 , 4 , 5 . Como resultado, a anatomia, a paleobiologia e as relações filogenéticas dos gondwanatherianos permanecem obscuras. 


Aqui relatamos a descoberta de um esqueleto articulado e muito bem preservado de um gondwanatheriano da idade mais recente (72,1-66 milhões de anos atrás) do período Cretáceo de Madagascar que atribuímos a um novo gênero e espécie, Adalatherium hui . Até onde sabemos, o espécime é o esqueleto mais completo de uma forma mamífera do Mesozóico Gondwana que foi encontrado e inclui o único material pós-craniano e ramo ascendente do dentário conhecido por qualquer gondwanatheriano. Uma análise filogenética incluindo o novo táxon recupera Gondwanatheria como grupo irmão de Multituberculata. O esqueleto, que representa uma das maiores formas de mamíferos mesozóicos de Gondwana, é particularmente notável por exibir muitas características únicas em combinação com características que são convergentes com as dos mamíferos Therian. Esta singularidade é consistente com uma história de linhagem de isolamento de A. hui em Madagascar por mais de 20 milhões de anos.

Translator


A maior cobra madtsoiida conhecida do período Eoceno quente da Índia sugere dispersão intercontinental de Gondwana

Abstrato

Aqui relatamos a descoberta de fósseis representando a coluna vertebral parcial de uma cobra gigante madtsoiida de uma sucessão de linhita do início do Eoceno Médio (Lutetiano, ~ 47 Ma) em Kutch, oeste da Índia. O comprimento estimado do corpo de ~ 11–15 m torna este novo táxon ( Vasuki indicus gen et sp. nov.) a maior cobra madtsoiida conhecida, que prosperou durante um intervalo geológico quente com temperaturas médias estimadas em ~ 28 °C. Filogeneticamente, Vasuki forma um clado distinto com o táxon indiano do Cretáceo Superior Madtsoia pisdurensis e o norte-africano do Eoceno Superior Gigantophis garstini . Considerações biogeográficas, vistas em conjunto com a sua inter-relação com outros madtsoiídeos indianos e norte-africanos, sugerem que Vasuki representa uma linhagem relíquia que se originou na Índia. A subsequente colisão Índia-Ásia em ~ 50 Ma levou à dispersão intercontinental desta linhagem do subcontinente para o Norte da África através do sul da Eurásia.

Conteúdo semelhante sendo visualizado por outras pessoas

Introdução

Madtsoiidae são um clado extinto de cobras terrestres principalmente de Gondwana com uma faixa temporal que abrange cerca de 100 milhões de anos do Cretáceo Superior ao Pleistoceno Superior. 1 , 2 , 3 . A sua distribuição geográfica durante o Cretáceo Superior abrangia Madagáscar, América do Sul, Índia, África e o arquipélago europeu. 1 , 4 , 5 , 6 , 7 , 8 , 9 . As formas Cenozóicas estão restritas ao Norte da África, América do Sul, subcontinente indiano e Austrália 2 , 10 , 11 , 12 , 13 , 14 , 15 , 16 , 17 . Os Madtsoiídeos exibem um amplo espectro de tamanhos corporais e incluem algumas das maiores cobras terrestres conhecidas que já existiram. 2 , 7 , 9 . Embora seja um clado específico, a maioria dos táxons são conhecidos exclusivamente pelas vértebras, resultando em relações intragrupo pouco restritas. 2 , 8 , 16 . Além disso, a posição filogenética de Madtsoiidae dentro de Ophidia permaneceu controversa, já que alguns estudos o recuperam dentro de Serpentes, enquanto outros o colocam fora do grupo da coroa. 3 , 9 , 17 , 18 , 19 , 20 . Essas incertezas filogenéticas dificultaram nossa compreensão da biogeografia e dos eventos de radiação dos madtsoiídeos 2 , 8 .

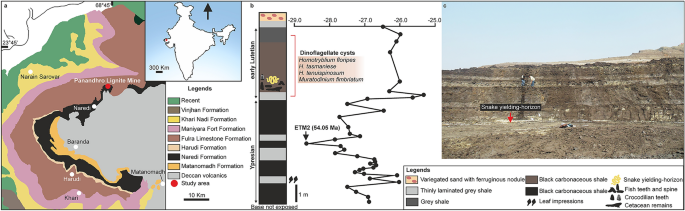
No subcontinente indiano, os madtsoiídeos do Cretáceo Superior (Maastrichtiano) são conhecidos da província vulcânica de Deccan, incluindo o grande tamanho Madtsoia pisdurensis da Formação Lameta 6,8. Among Tertiary madtsoiids, indeterminate forms are known from the early Paleocene Khadro Formation (Pakistan16) and the early Eocene Cambay Shale (India15). The latter also yielded the large madtsoiid Platyspondylophis21. The Eocene and Late Oligocene records include indeterminate taxa from Kutch and Ladakh, respectively14,22. Here we report the discovery of a giant madtsoiid snake, one of largest snakes ever reported, from an interval corresponding to a warm Middle Eocene period (~ 47 Ma) of India. Fossils were collected from an early Lutetian grey shale unit from Panandhro Lignite Mine, Kutch, Gujrat State, western India (Supplementary Note 1, Fig. 1), and includes an excellently preserved, partial vertebral column. The discovery of a giant Eocene snake has important implications for madtsoiid biogeography in the context of Gondwanan inter-continental dispersal, and the evolution of large body-sizes possibly driven by high temperatures in the Middle Eocene tropical zones.

figura 1
figura 1

Mapa geológico da Bacia Kutch mostrando a localidade fóssil ( a ); coluna estratigráfica na mina de linhita Panandhro mostrando a posição do horizonte de produção de cobras madtsoiid com assembléia de cistos dinoflagelados para diagnóstico de idade e δ 13 Curva C marcando evento hipertérmico ETM2 (modificado após Agrawal et al. 23 ) ( b ); vista panorâmica do sítio fóssil ( c ). O mapa e a coluna estratigráfica foram desenhados por DD usando CorelDRAW 2019 (número de versão: 21.0.0.593, link URL: http://www.corel.com/en/ ). Estimativa de idade do ETM2 após Westerhold et al. 24 .

Resultados

Paleontologia sistemática

Squamata Oppel, 1811

Ophidia Brongniart, 1800

Madtsoiidae (Hoffstetter 1961) McDowell, 1987

Vasuki indicus gen. et sp. nov.

Etimologia

Nome genérico em homenagem à conhecida serpente mítica hindu 'Vāsuki' em volta do pescoço do Senhor Shiva; o nome específico é para o país de origem, ou seja, Índia.

Holótipo

IITR/VPL/SB 3102-1-21; uma coluna vertebral parcial representando a região pré-cloacal (Figs. 2 , 3 ; Tabela Suplementar 1 ).

Figura 2
Figura 2

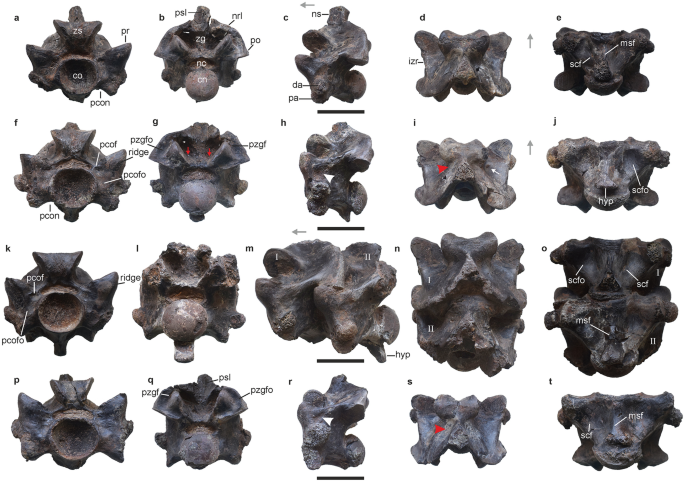
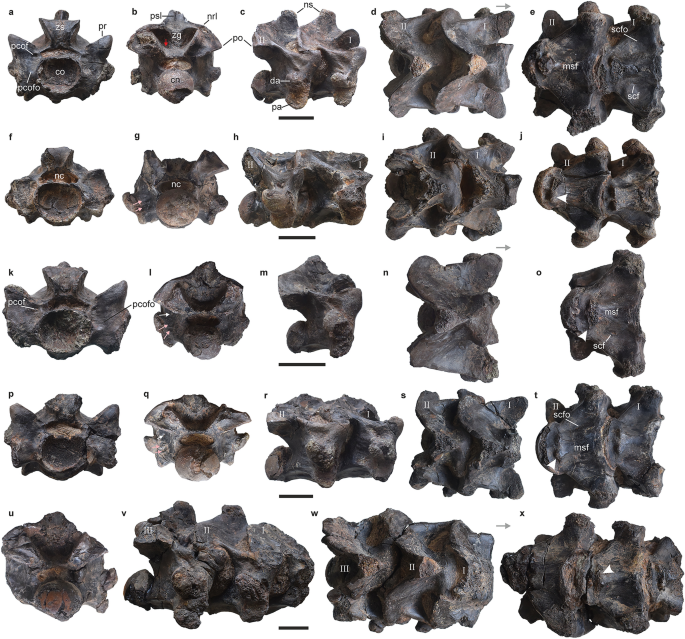
Vértebras anteriores do tronco de Vasuki indicus . IITR/VPL/SB 3102-3, vértebra parcial em vista anterior ( a ); vista posterior ( b ); vista lateral esquerda ( c ); vista dorsal ( d ); vista ventral ( e ). IITR/VPL/SB 3102-5, vértebra completa em vista anterior ( f ); vista posterior ( g ); vista lateral esquerda ( h ); vista dorsal ( eu ); vista ventral ( j ). IITR/VPL/SB 3102-7I-II, vértebra parcial em vista anterior ( k ); vista posterior; ( eu ); vista lateral esquerda ( m ); vista dorsal ( n ); vista ventral ( o ). IITR/VPL/SB 3102-6, vértebra posterior posterior completa do tronco em vista anterior ( p ); vista posterior ( q ); vista lateral esquerda ( r ); vista dorsal( s ); vista ventral ( t ). As setas cinza indicam a direção anterior. Setas e setas vermelhas indicam fossas na base espinhal neural e forames endozigântricos, respectivamente. Os algarismos romanos nas figuras ( m – o ) referem-se a vértebras individuais em espécimes articulados onde 'I' está voltado para a parte anterior. Ponta de seta branca e seta indicam fossa medial à diápófise e forame na superfície dorsal do arco neural. co cotyle, cn condyle, da diapophysis, hyp hypapophysis, izr interzygapophyseal ridge, msf median shaft, nc neural canal, nrl neural arch lamina, ns neural spine, pa parapophysis, pcof paracotylar foramen, pcofo paracotylar fossa, pcon paracotylar notch, po postzygapophysis, pr prezygapophysis, psl prespinal lamina, pzgf parazygantral foramen, pzgfo parazygantral fossa, scf subcentral foramen, scfo subcentral fossa, zg zygantrum, zs zygosphene. Scale bar represents 50 mm.

Figura 3
Figura 3

Vértebras pré-cloacais de Vasuki indicus . IITR/VPL/SB 3102-10I-II, vértebras posteriores completas do tronco anterior/médio do tronco em vista anterior ( a ); vista posterior ( b ); vista lateral direita ( c ); vista dorsal ( d ); vista ventral ( e ). IITR/VPL/SB 3102-9I-II, vértebras parciais do tronco médio em vista anterior ( f ); vista posterior ( g ); vista lateral esquerda (invertida) ( h ); vista dorsal ( eu ); vista ventral ( j ). IITR/VPL/SB 3102-4, vértebra média do tronco quase completa em vista anterior ( k ); vista posterior; ( eu ); vista lateral esquerda (invertida) ( m ); vista dorsal ( n ); vista ventral ( o ). IITR/VPL/SB 3102-8I-II, vértebras parciais do tronco médio em vista anterior ( p ); vista posterior ( q ); vista lateral direita ( r ); vista dorsal( s ); vista ventral ( t ). IITR/VPL/SB 3102-11I-III, vértebras parciais do tronco médio em vista posterior ( você ); vista lateral direita ( v ); vista dorsal ( w ); vista ventral ( x ). As setas cinza indicam a direção anterior. Os algarismos romanos nas figuras ( c – e, h – j, r – t, v – w ) referem-se a vértebras individuais em espécimes articulados onde 'I' está voltado para a parte anterior. Setas rosa e brancas indicam fossa e forame na superfície lateral do centro, respectivamente. A seta vermelha indica forame endozigântrico. Pontas de seta brancas indicam protuberância emparelhada na diáfise mediana ventral. cocótilo , côndilo cn , da diapófise, hip hipófise, izr crista interzigapofisária msf , diáfise mediana nc , canal neural nrl , lâmina do arco neural ns , espinha neural pa , parapófise pcof , forame paracotilar pcofo , fossa paracotilar , po pós-zigapófise, pr prezigapófise, psl lâmina prespinal scf , forame subcentral , fossa subcentral scfo, zg zygantrum, zs zigosfeno. A barra de escala representa 50 mm.

Horizonte e localidade

Formação Naredi; Mina de linhita Panandhro, distrito de Kutch, estado de Gujarat, oeste da Índia.

Diagnosis

Vasuki exhibits a unique combination of the following characters: presence of prominent paracotylar foramina (shared with Madtsoiidae); middle-sized cotyle (shared with Madtsoiidae); median prominence on ventral margin of centrum (shared with Madtsoiidae); prezygapophyseal process absent; high angle of synapophysis with horizontal in anterior view (avg. 71.5°); MTV diapophysis level with dorsoventral midpoint of neural canal (shared with Madtsoia madagascariensis, Madtsoia camposi, Wonambi barriei and Adinophis); prezygapophyseal buttress succeeded posteriorly by elliptical fossa (shared with Madtsoia pisdurensis); deep V-shaped embayment (shared with Gigantophis garstini and Madtsoia pisdurensis); oval precloacal cotyle (shared with Gigantophis garstini and Madtsoia pisdurensis); transversely wide vertebrae (shared with Gigantophis garstini and Madtsoia pisdurensis); neural spine posteriorly canted (shared with Gigantophis garstini and Madtsoia pisdurensis); broad hemal keel with posterior process (shared with Gigantophis garstini and Madtsoia pisdurensis); strongly notched anterior zygosphenal margin; endozygantral foramen present (shared with Madtsoia madagascariensis, Powellophis and Gigantophis garstini).

Autapomorfias: vértebras excepcionalmente grandes [comprimento do centro (cL): 37,5–62,7 mm e largura pré-zigapofisária (prW): 62,4–111,4 mm]; seção transversal da coluna neural em forma de pá; quilha hemal pouco desenvolvida que permanece dorsal às parapófises; processo posterior em forma de cinzel da quilha hemal.

Descrição

A coleção compreende 27 vértebras associadas, em sua maioria bem preservadas e incluindo algumas em articulação (Figs. 2 A – T, 3 A – W). 22 das 27 amostras podem ser atribuídas com segurança à região pré-cloacal com base na ausência de hemapófises, pleurapófises e linfapófises, e são ainda restritas a uma posição anterior à região posterior do tronco, como sugerido por uma maior largura mediolateral do arco neural em comparação ao comprimento do centro (sensu LaDuke 1 ; Rio e Mannion 2 ; Tabelas Suplementares 1 , 2 ; Figura Complementar 2 ). Essas dimensões vertebrais são geralmente encontradas em madtsoiídeos de grande porte, como Gigantophis 2 ; Yurlunggur 11 , Madtsoia 1 , 10 , 13 e Wonambi 25 . Além disso, o encerramento das suturas vertebrais sugere que estes espécimes provavelmente atingiram a maturidade esquelética, semelhante, por exemplo, a Madtsoia pisdurensis 8 .

Vasuki é caracterizado por vértebras excepcionalmente grandes, onde o comprimento do centro (cL) e a largura pré-zigapofisária (prW) variam entre 37,5–62,7 e 62,4–111,4 mm, respectivamente (Tabela Suplementar 2 ). Reconhecemos isso como uma autapomorfia, uma vez que essas proporções eclipsam todos os madtsoiídeos de grande porte [ Madtsoia (cL = 18–25 mm; prW = 35–65 mm; LaDuke et al. 1), Gigantophis (cL = 28–41 mm; prW = 44–66 mm; Rio and Mannion2), Platyspondylophis (cL = 18–21 mm; prW = 26–43 mm; Smith et al.21) e Yurlunggur (cL = 15–22 mm; prW = 19–41 mm)]. Alguma cautela, no entanto, é necessária aqui devido às incertezas sobre se o maior tamanho desses madtsoiídeos de grande porte foi capturado, embora o mesmo seja verdade para Vasuki.

Na forma geral, as vértebras do novo táxon indiano são maciças (prW >> cL) e compreendem um centro proceloso. Anteriormente, o centro preserva um cótilo inclinado anteroventralmente, enquanto o côndilo posterior é desviado póstero-dorsalmente, resultando em considerável visibilidade do côndilo e do cótilo nas vistas dorsal e ventral, respectivamente (Fig. 2 C, E). Na vista anterior, o cótilo é fortemente côncavo com sua margem ventral recuada em relação à dorsal. O cótilo é mediolateralmente mais largo do que dorsoventralmente alto (Figs. 2 P, 3 A, F, K; IITR/VPL/SB 3102-4, coW/coH = 1,2; Tabela Suplementar 2 ) como em todos os madtsoiídeos [por exemplo, Gigantophis garstini 2 (NHMUK R8344, vaca/coH = 1,2), Madtsoia madagascariensis (FMNH PR 2551, vaca/coH = 1,24) Yurlunggur (NTM P8695-243, vaca/coH = 1,22) e Wonambi (QMF23038, vaca/coH = 1,4]. Lateralmente, o cótilo é limitado em cada lado por uma fossa paracotilar bem desenvolvida e moderadamente profunda (Figs. 2 K, P, 3 A, K). As margens dorsal e ventral da fossa são proeminentes e definidas por suportes ósseos que emanam de). as margens cotilar dorsolateral e lateral, respectivamente. A margem lateral da fossa, entretanto, está nivelada com a superfície. Além disso, em alguns espécimes a fossa paracotilar é dividida em uma subfossa dorsal mais rasa e ventral mais profunda por uma haste secundária fraca que se estende. lateralmente da margem dorsolateral do cótilo. Um minúsculo forame paracotilar está presente na parte mais dorsal de uma ou ambas as fossas paracotiledonares, imediatamente lateral ao canal neural (Figs. 2 F, K, P, 3 A, K). Embora a presença de fossas e forames paracotiledonares seja uma sinapomorfia de Madtsoiidae 16 , 26 , a morfologia exata dessas características é variável em todo o clado. “ Gigantophis sp.” (CPAG-RANKT-V-1), Menarana nosymena e Adinophis fisaka (FMNH PR 2572) diferem de Vasuki pela presença de forames paracotiledonares pareados em cada lado 1 , 16 , 27 . Em Madtsoia e Eomadtsoia (MPEF-PV 2378) os forames são profundos e comparativamente grandes, enquanto em Yurlunggur estes ocorrem em aglomerados 7 , 8 , 10 , 11 , 13 . Eomadtsoia , no entanto, compartilha com Vasuki a presença de borda ventral proeminente da fossa paracotilar 7 . Em Gigantophis garstini, a fossa paracotilar não possui margem ventral e em Platyspondylophis o forame paracotilar está totalmente ausente. 2 , 21 .

The posterior condyle is transversely wider than high (IITR/VPL/SB 3102–4, cnW/cnH = 1.2; Supplementary Table 2) with the width progressively increasing from ATV (Fig. 2B,G; cnW/cnH = 1.1) to MTV (Fig. 3G, Q; cnW/cnH = 1.2–1.3). Similar proportions of the posterior condyle characterize most madtsoiids [e.g., Nidophis (LPB FGGUB v.547/3, ATV, cnW/cnH = 1.1; LPB FGGUB v.547/1, MTV, cnW/cnH = 1.2); Gigantophis garstini (NHMUK R8344, MTV, cnW/cnH = 1.2 Rio and Mannio2); Madtsoia camposi (DGM 1310b, MTV, cnW/cnH = 1,3] (Fig. 3 G, I, Q). Além disso, na vista posterior, duas pequenas fossas distintas são discerníveis na superfície lateral do centro imediatamente posterior à esquerda diapófise (Fig. 3 G, I, Q). As fossas estão dispostas verticalmente, umas sobre as outras, e separadas por uma crista proeminente. Se essas fossas unilaterais representam uma condição individual ou uma característica geral, não pode ser determinado atualmente e será necessário. espécimes adicionais de Vasuki .

A sinapófise é dorsoventralmente alta e compreende uma diápófise e uma parapófise distintas (Figs. 2 M, R, 3 C, R), ao contrário de Gigantophis garstini , Madtsoia madagascariensis e Madtsoia pisdurensis 1 , 2 , 8 . Na vista anterior, a orientação da sinapófise muda de ventrolateral (Fig. 2 F, K) para um pouco voltada lateralmente (Fig. 3 K, P, U) ao longo da série pré-cloacal. Essa mudança é marcada pelo aumento do ângulo sinapofisário (α), com a horizontal, de ATV (α = média 56,6°) para MTV (α = média 71,5°). Um ângulo sinapofisário mais estreito foi observado na maioria dos táxons madtsoiídeos comparativos, incluindo Eomadtsoia [MPEF-PV 2378 (MTV), α = 45°], Gigantophis garstini [NHMUK R8344 (MTV) α = 48], Madtsoia madagascariensis [FMNH PR 2549 ( ATV), α = 47°; FMNH PR 2551 (MTV), α = 56°], “ Gigantophis sp.” [CPAG-RANKT-V-1 (MTV), α = 56°], Madtsoia camposi [DGM 1310c (MTV), α = 57°], Wonambi [QMF23038 (MTV) α = 58°] e Madtsoia bai [AMNH 3155 (MTV), α = 62°]. Em vista lateral, a sinapófise está inclinada em (β) 20°–27° da vertical em Vasuki . Isto é semelhante a Wonambi [QMF23038, β = 25°], Nanowana [QMF19741, β = ~ 25°], Madtsoia camposi [DGM 1310c, β = 26°] e Yurlunggur [P8695, β = 22°–26°]. Em contraste, ângulos mais amplos caracterizam Gigantophis garstini [NHMUK R8344, β = 30° 2 ], Platyspondylophis [β = 30°–35°], Madtsoia madagascariensis [FMNH PR 2549, β = 33°] e “ Gigantophis sp.” [CPAG-RANKT-V-1, β = ~ 90°], enquanto em Patagniophis [β = 7°–9°], Powellophis [PVL 4714–4, β = 18°] e Madtsoia pisdurensis [225/GSI/PAL /CR/10, β = 12°] os ângulos são mais estreitos.

Um entalhe paracotilar arqueado (sensu LaDuke et al. 1 ), entre a borda cotilar ventral e a parapófise, está consistentemente presente em todos os espécimes (Fig. 2 A, F). A parapófise compreende uma faceta sub-retangular, em vista lateral, e se estende abaixo da borda cotilar ventral no ATV (Fig. 2 F,H,P,R). No MTV, situa-se dorsalmente à borda cotilar ventral (Fig. 3 F, P), ao contrário de Madtsoia pisdurensis e Gigantophis garstini, onde a base parapofisária é ventral e no nível da borda cotilar ventral, respectivamente 2,8. The diapophysis is bulbous and extends laterally beyond the prezygapophysis (Figs. 2F,H, 3P,R), contrary to Powellophis3, Patagoniophis australiensis28, Madtsoia pisdurensis8, Madtsoia madagascariensis1 and Nidophis9. The dorsal margin of the diapophysis remains ventral to the dorsal cotylar margin in ATV (Fig. 2A,F), but becomes level with the dorsoventral midpoint of the neural canal in MTV (Fig. 3K,P). A similar disposition of the MTV diapophysis is observed in Madtsoia madagascariensis, Madtsoia camposi, Wonambi barriei and Adinophis1,2,13,27. The dorsal diapophyseal margin lies between the ventral margin of the neural canal and the dorsoventral midpoint of the cotyle in “Gigantophis sp.”16, Gigantophis garstini2 , Nidófis 9 , Yurlunggur 11 e Powellophis 3 . Em Platyspondylophis, a diapófise estende-se além da margem ventral do canal neural em todas as vértebras pré-cloacais preservadas. 21 .

O contraforte pré-zigapofisário é maciço, não possui um processo pré-zigapofisário e apresenta uma crista oblíqua e romba anteriormente (Fig. 2 F, K). Em vista lateral, o contraforte é sucedido posteriormente por uma fossa elíptica (Fig. 2 C,H,R). A fossa ocorre imediatamente ventral à crista interzigapofisária e medial à diapófise, semelhante a Madtsoia pisdurensis (Mohabey et al. 8 ). As facetas pré-zigapofisárias são elípticas (5022–4, przL/przW = 1,3) e inclinadas ventromedialmente (prα = 20°–28°; Fig. 2 A,D,F,I). Em vista dorsal, essas facetas divergem em 45° do plano sagital, ao contrário das facetas orientadas transversalmente em Madtsoia bai 10 , Madtsoia madagascariensis 1 , Platyspondylophis 21 e Yurlunggur 11 . Pré-zigapófises fortemente divergentes também são observadas em Gigantophis garstini 2 (~ 70°) e Eomadtsoia 7 (60°–80°). As facetas pós-zigapofisárias em Vasuki também são elípticas (IITR/VPL/SB 3102-8II, pozL/pozW = 1,2; Tabela Suplementar 2 ) e orientadas medioventralmente (poα = 12°–26°; Figs. 2 G, J, 3 B, E). A crista interzigapofisária é espessa e direcionada póstero-dorsalmente, atuando como uma ponte entre as pré e pós-zigapofises. Um pequeno forame lateral está presente ventralmente à crista (Fig. 3 L, Q), como em Powellophis 3 . Em vista dorsal, as cristas interzigapofisárias são retas e diferem das cristas arqueadas vistas na maioria dos madtsoiídeos [por exemplo, Madtsoia , Gigantophis garstini , Wonambi , Yurlunggur e Platyspondylophis ] 2 , 8 , 10 , 11 , 13 , 18 , 21 , 28 .

The neural canal is reniform (Figs. 2P,Q, 3F,G) in cross-section and significantly wider than high (ncW/ncH = 3–3.6). It differs from the comparatively narrower and trilobate neural canal in Gigantophis garstini2 (NHMUK R8344, ncW/ncH = 2.3), Platyspondylophis (WIF/A 2271, ncW/ncH = 2.1), Madtsoia (ncW/ncH = 1.3–2.3), Yurlunggur (NTM P8695-243, ncW/ncH = 2.3), “Gigantophis sp.” (CPAG-RANKT-V-1, ncW/ncH = 1.8) and Powellophis (PVL 4714–4, ncW/ncH = 1.6), and the sub-elliptical canal in Wonambi (QMF23038, ncW/ncH = 1.3).

O zigósfeno é trapezoidal e mediolateralmente mais largo que alto (zsW/zsH = 1,4–1,8; Fig. 2 A, K), como em Gigantophis garstini (NHMUK R8344, zsW/zsH = 2 2), Madtsoia bai (AMNH 3155, zsW/zsH = 1.8) and Madtsoia madagascariensis (FMNH PR 2551, zsW/zsH = 1.9). Transversely much wider zygosphenes characterize Nidophis (LPB FGGUB v.547/1, zsW/zsH = 5), Madtsoia camposi (DGM 1310a, zsW/zsH = 2.8), Eomadtsoia (MPEF-PV 2378, zsW/zsH = 2.6), Platyspondylophis (WIF/A 2269, zsW/zsH = 2.2) and Patagoniophis (QMF 19717, zsW/zsH = 5). In Vasuki, the zygosphene is wider than the cotyle, contrary to Gigantophis garstini, “Gigantophis sp.”, Platyspondylophis and Madtsoia1,8,10,13,16,21. Na vista anterior, a margem dorsal do zigósfeno é reta e as facetas articulares são fortemente inclinadas (~ 40° da vertical; Figs. 2 F, P, 3 A). Essas facetas são ovais em vista lateral (IITR/VPL/SB 3102–6, zsfL/zsfW = 1,1). A margem zigofenal anterior é marcadamente entalhada em vista dorsal (zsα = 118°–128°; Figs. 2 I, N, 3 N) e difere do zigofeno não entalhado em Madtsoia pisdurensis 8 , Madtsoia camposi 13 , Eomadtsoia 7 e Platyspondylophis 21 . Em “ Gigantophis sp.” (zsα = 145°) e Madtsoia madagascariensis (zsα = 145°–147°) o zigofeno é fracamente entalhado.

O zigante é mediolateralmente mais largo do que alto, com facetas fortemente inclinadas (50°–60° da horizontal; Fig. 2 B, G, Q). As facetas são elípticas em vista posterior, mas desprovidas de parede mediana presente em Gigantophis garstini 2 . Uma fossa direcionada ântero-ventralmente está presente na base de cada faceta e acomoda um forame endozigantral (Figs. 2 G, 3 B). Este último também está presente em Madtsoia madagascariensis 1 , Powellophis 3 e Gigantophis garstini 2 . Em Vasuki , o teto zygantral acima de cada faceta é médio-dorsalmente convexo e desce como cristas subverticais até o zygantrum (Fig. 2 Q), como em Madtsoia madagascariensis 1 . O teto é ventralmente convexo em Eomadtsoia e Madtsoia pisdurensis , e reto em Powellophis , Platyspondylophis , Yurlunggur e Gigantophis garstini 3 , 7 , 8 , 11 , 21 . Uma grande fossa parazigantral elíptica, orientada dorsolateralmente, flanqueia o zigante lateralmente em ambos os lados e possui um pequeno forame parazigantral (Fig. 2 B, G, Q).

A coluna neural é dorsoventralmente alta (MTV, nsH/tvH = 0,21–0,29, Tabela Suplementar 2 ) e reforçada posteriormente pelas lâminas do arco neural (Fig. 3 B – D, V, W). Estas últimas estendem-se ântero-dorsalmente desde a margem dorsolateral das pós-zigapófises até a margem espinhal dorsal, resultando em um encaixe mediano profundo. Na vista lateral, a coluna é fortemente inclinada póstero-dorsalmente (12°–19° da vertical) com uma margem anterior côncava e uma margem posterior reta. Enquanto uma coluna neural alta caracteriza a maioria dos grandes madtsoiídeos [ Madtsoia camposi (DGM, 1310b, MTV, nsH/tvH = 0,22), Madtsoia madagascariensis (FMNH PR 2551, MTV, nsH/tvH = 0,33), Madtsoia bai (AMNH 3154, MTV, nsH/tvH = 0,22), Wonambi (QMF23038, MTV, nsH/tvH = 0,27)], é mais suavemente inclinado nesses táxons de grande porte [por exemplo, Madtsoia madagascariensis (27°–33°), Wonambi (30°) , Gigantophis garstini (30°)]. Uma margem anterior convexa em Madtsoia madagascariensis, bem como em Powellophis e Nanowana, os distingue ainda mais de Vasuki . Furthermore, the presence of a sharp postspinal lamina (sensu Tschopp29) on the posterior spinal surface and a spade-shaped cross-section of the spine differentiates Vasuki from other madtsoiids (Figs. 2D,S, 3D). In dorsal view, the neural spine base is flanked on either side by a prominent fossa (Fig. 2I,S), as in Madtsoia pisdurensis8 e Madtsoia madagascariensis 1 . As fossas ocorrem imediatamente posteriores ao zigósfeno e são delimitadas ventralmente por suportes ósseos arredondados e fracos que emanam da margem zigosfenal póstero-lateral. Ventralmente a essas hastes, um forame proeminente está presente na superfície dorsal do arco neural posterior ao zigósfeno (Fig. 2 I), semelhante a Madtsoia madagascariensis 1 .

Na vista ventral, o centro é triangular e mais largo nas parapófises. Grandes fossas subcentrais pareadas, mais proeminentes nas vértebras anteriores do tronco (ATV), ocupam a maior parte da superfície ventral do centro (Figs. 2 J, O, 3 E, T). As fossas são delimitadas lateralmente por robustas cristas subcentrais que se estendem posteromedialmente das parapófises até o ponto médio dorsoventral do côndilo. Essas cristas são retas a fracamente convexas na vista ventral e diferem das cristas côncavas em Patagoniophis 28 e Madtsoia madagascariensis 1 . As fossas subcentrais são separadas por uma quilha hemal baixa transversalmente convexa (Figs. 2 T, 3 E, O, T). Este último é largo, ligeiramente elevado e termina anterior à constrição pré-condilar. A quilha hemal não é proeminente, ao contrário da quilha estreita/afiada em “ Gigantophis sp.”, Eomadtsoia , Nidophis , Nanowana e Powellophis 2 , 3 , 7 , 9 , 16 . Em Vasuki , esta quilha permanece dorsal à margem parapofisária ventral (Figs. 2 M, R, 3 M, R, V), ao contrário da quilha hemal de outros madtsoiídeos que desce abaixo da parapófise. Consequentemente, identificamos a disposição da quilha hemal como uma autapomorfia de Vasuki .

A small subcentral foramen is present on either side of the ventral shaft in Vasuki (Fig. 2E,O,T), as in Madtsoia madagascariensis1, Madtsoia camposi13, Nidophis9, and Patagoniophis28. The hypapophysis is paddle-like with sharp lateral margins and extends up to the level of the ventral condylar rim in ATV (Fig. 2G,H,J,L,M,O). The hypapophysis is directed posteroventrally unlike the ventrally directed hypapophysis in Madtsoia madagascariensis1 and Patagoniophis28. Across the precloacals, the hypapophysis progressively reduces in prominence and is replaced by a chisel shaped structure with paired protuberances separated from the ventral condylar rim by a short, sharp ridge in the mid-trunk vertebrae (MTV; Fig. 3J,O,T,X). This chisel shaped structure appears autapomorphic for Vasuki as it differs from the condition in other madtsoiids.

Phylogenetic analysis

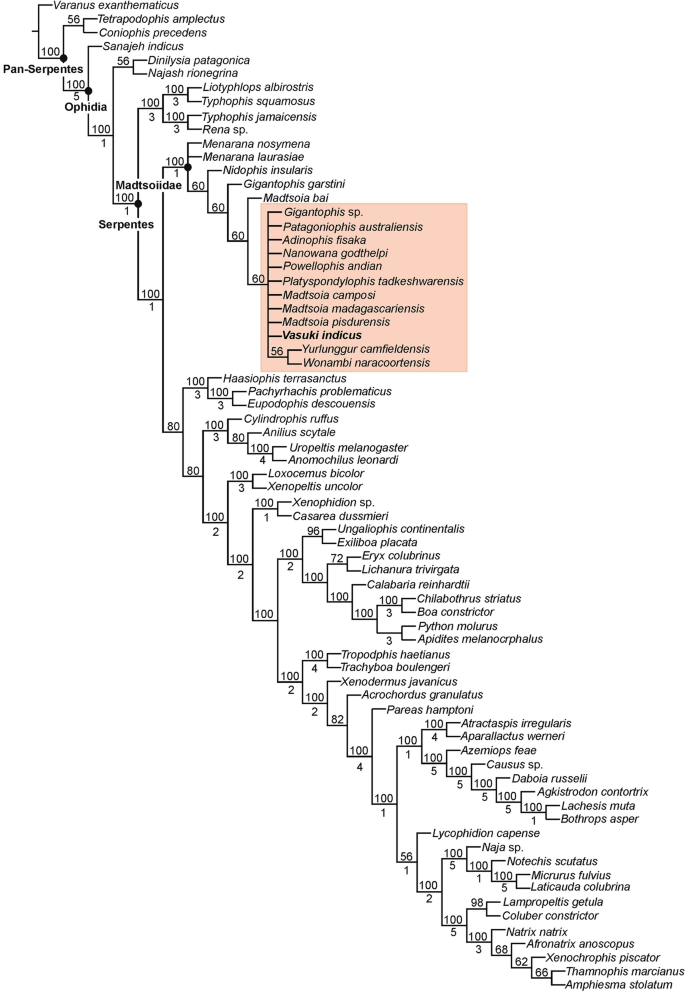
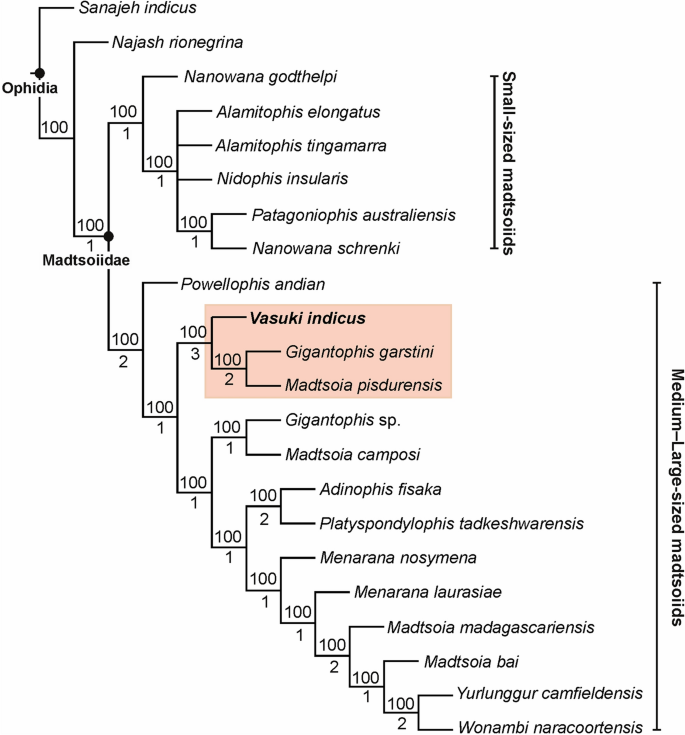
A posição de Vasuki dentro de Madtsoiidae foi testada em uma versão modificada da matriz caráter-táxon de Zaher et al. 30(Análise 1; ver seção “ Métodos ” e Nota Complementar 2 ). Foram recuperadas 50 árvores mais parcimoniosas com comprimento de árvore de 1610, índice de consistência (CI) de 0,386 e índice de retenção (IR) de 0,73. As topologias de árvore resultantes são amplamente consistentes com Zaher et al. 30 como Madtsoiidae foi recuperado como um clado distinto dentro da coroa Serpentes (Fig. 4 , Fig. Complementar 3 ). Madtsoiidae, no entanto, foi mal resolvido e não forneceu informações sobre o inter-relacionamento de Vasuki com os outros membros do clado. A má resolução é provavelmente um reflexo da ausência de material craniano na maioria dos madtsoiídeos e uma função da grande matriz onde muito poucos caracteres vertebrais puderam ser pontuados para a maioria dos táxons de madtsoiídeos. Nós, portanto, realizamos uma segunda análise (Análise 2) removendo todas as Serpentes não-madtsoiid e combinando os caracteres cranianos e vertebrais de Zaher et al. 30 e Garberoglio et al. 3 , respectivamente (ver seção “ Métodos ” e Nota Complementar 3 ). O último conjunto de dados foi usado porque o estudo se concentrou nas relações intragrupo madtsoiid. Nossa análise recuperou apenas duas árvores mais parcimoniosas com comprimento de árvore de 191, IC de 0,634 e IR de 0,62. Ambas as árvores (Fig. 5 , Fig. Complementar 4 ) foram em sua maioria bem resolvidas e as topologias resultantes são amplamente consistentes com estudos recentes 2 , 3 , 7 sobre inter-relacionamentos madtsoiid. Madtsoiidae mostra agrupamento baseado em tamanho com táxons de corpo pequeno (<2 m) e médio-grande (> 3 m) recuperados como clados separados (Fig. 5 ). Vasuki está aninhado dentro de um clado distinto (suporte de Bremer = 3) como um táxon irmão do Cretáceo Superior Indiano Madtsoia pisdurensis + Eoceno Superior do Norte da África Gigantophis garstini .

Figura 4
figura 4

Posição filogenética de Vasuki indicus gen. e sp. novembro. IITR/VPL/SB 3102 na árvore de análise 1 com regra majoritária de 50%. Clado compreendendo Vasuki indicus destacado em rosa. Os números acima e abaixo dos nós indicam a frequência com que um clado é representado nas árvores mais parcimoniosas e nos valores de suporte de Bremer, respectivamente.

Figure 5
figura 5

Posição filogenética de Vasuki indicus gen. e sp. novembro. IITR/VPL/SB 3102 na árvore de análise 2 com regra majoritária de 50%. Clado compreendendo Vasuki indicus destacado em rosa. Os números acima e abaixo dos nós indicam a frequência com que um clado é representado nas árvores mais parcimoniosas e nos valores de suporte de Bremer, respectivamente.

Estimation of body length

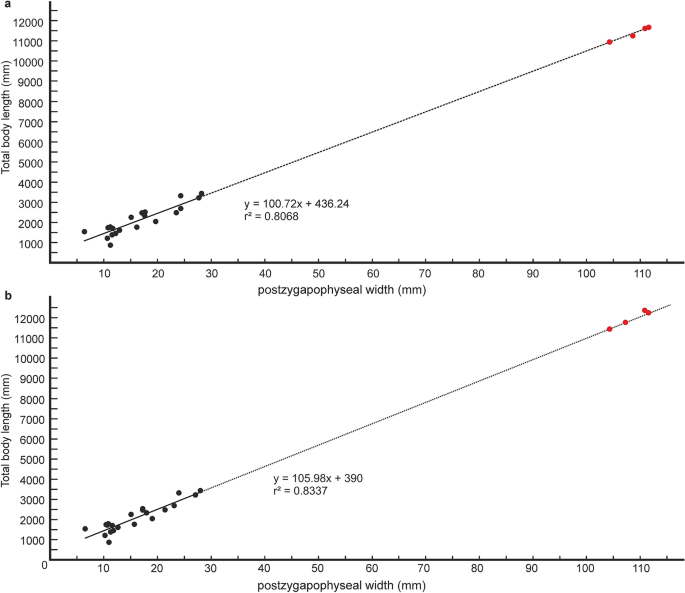
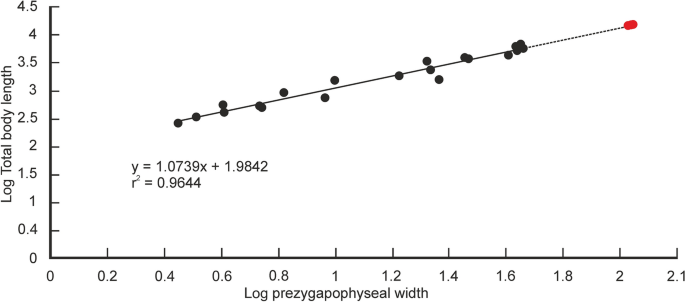
Estimativas quantitativas do comprimento total do corpo (TBL) de Vasuki foram feitas com base em dois métodos separados que têm sido usados ​​nos últimos anos para estimativa de tamanho de cobras extintas de grande porte (ver seção “ Métodos ” e Tabelas Suplementares 3 – 5 ). Nestes métodos, o TBL foi regredido na largura pós-zigapofisária (seguindo Head et al. 31; Rio and Mannion2) and the prezygapophyseal width (= trans-prezygapophyseal width; following McCartney et al.32, Garberoglio et al.3), respectively. In the present study estimates were made from MTV (IITR/VPL/SB 3102-4, 3102-8I–II, 3102-11II–III), the largest specimens in the collection, following Rio and Mannion2, McCartney et al.32 and Garberoglio et al.3. Both regression models were statistically significant (p < 0.05) and had a high explanatory power (r2 = 0.83–0.96) which asserts their validity. The TBL estimates following Head et al.31 ranges between 10.9 and 12.2 m (Fig. 6A,B), whereas those following McCartney et al.32 is between 14.5 and 15.2 m (Fig. 7A). These estimates, however, should be treated with caution as the collection lacks posterior precloacal and cloacal vertebrae, and an understanding of the intracolumnar variation in madtsoiids is currently non-existent.

Figura 6
figura 6

Regressões de métricas vertebrais no comprimento total do corpo em táxons bovinos existentes. Regressão da largura pós-gapofisária no comprimento total do corpo em táxons bovinos existentes das vértebras 60% posteriormente ao longo da coluna vertebral; p = 0,00000003, erro padrão = ± 0,3 m ( a ). Regressão da largura pós-gapofisária no comprimento total do corpo em táxons bovinos existentes das vértebras 65% posteriormente ao longo da coluna vertebral; p = 0,00000001, erro padrão = ± 0,2 m ( b ). Medições de cobras boinas existentes retiradas de Head et al. 31 and plotted as black circles. Estimated body lengths of Vasuki indicus shown in red.

Figura 7
figura 7

Regressão do comprimento total do corpo na largura pré-zigapofisária em cobras existentes. Medições de cobras existentes retiradas de McCartney et al. 32 e plotados como círculos pretos. Comprimentos corporais estimados de Vasuki indicus mostrados em vermelho. p = 0,000000000000003; erro padrão = ± 0,09m.

It is worth noting that the largest body-length estimates of Vasuki appear to exceed that of Titanoboa, even though the vertebral dimensions of the Indian taxon are slightly smaller than those of Titanoboa. We acknowledge that this observation may be a reflection of the different datasets used to formulate the predictive equations. However, we do not disregard the results based on the dataset of MacCartney et al.32, since the equations derived from the dataset of Head et al.31 involve measurements of extant boine taxa that are taken from vertebrae 60–65% posteriorly along the column. Caution is warranted here because of the uncertainties surrounding the phylogenetic position of Madtsoiidae relative to crown snakes which make estimations based on a model depicting intracolumnar variation in vertebral morphology of a particular extant family/taxa tentative. Consequently, predictive regression equations following McCartney et al.32, which comprise vertebral data from an array of extant snakes, are also considered in our study.

Discussão

Implicações filogenéticas

As análises aqui apresentadas recuperaram um Madtsoiidae monofilético com o clado colocado dentro da coroa Serpentes na Análise 1 (Fig. 4 , Figura Complementar 3 ). Isto está de acordo com a maioria dos estudos filogenéticos que avaliaram a relação do grupo total de cobras dentro de Squamata 30 , 33 , 34 , 35 . Além disso, semelhante a Zaher et al. 30 , a topologia da árvore na Análise 1 recuperou Sanajeh , Diniliysia , Najash em direção ao caule da coroa Serpentes. Embora o clado Madtsoiidae permaneça mal resolvido na Análise 1, encontramos uma combinação de cinco sinapomorfias apoiando a colocação de Vasuki dentro de Madtsoiidae [centro amplo e subtriangular (cap. 613); reentrância profunda em forma de V ao longo da margem posterior do arco neural (cap. 614); presença de forames paracotiledonares bem desenvolvidos (cap. 615); ausência de processo acessório pré-zigapofisário (cap. 616); presença de forame parazygantral (cap. 617)].

Por outro lado, a Análise 2 forneceu insights sobre as relações intragrupais de Madtsoiidae (Fig. 5 , Figura 4 Complementar ). As topologias resultantes são amplamente comparáveis ​​com resultados filogenéticos anteriores 2 , 3 , 7 , 9 , já que descobriu-se que os táxons se dividiam em dois clados baseados no tamanho (grande versus pequeno). Embora a possibilidade de características relacionadas ao tamanho conduzirem tais agrupamentos não possa ser descartada, a recuperação de táxons de pequeno a médio porte (por exemplo, Adinophis , Menarana , Powellophis ) dentro do clado de corpo grande sugere a presença de caracteres independentes de tamanho que apoiam esses clados. Argumento semelhante também foi apresentado por Garberoglio et al. 3ao discutir a ocorrência de clados baseados em tamanho dentro de Madtsoiidae. Contudo, nenhum dos gêneros específicos (por exemplo, Madtsoia , Nanowana , Menarana ) incluídos neste estudo formou clados monofiléticos. O suporte de Bremer para a maioria dos nós internos dentro de Madtsoiidae permanece baixo, embora alguns tenham um suporte comparativamente maior (Fig. 5 ). Estes resultados destacam a necessidade de uma amostragem mais rigorosa envolvendo uma melhor cobertura anatômica dos madtsoiídeos, levando a relações filogenéticas mais robustas.

Uma combinação única de 7 sinapomorfias aninha Vasuki dentro de Madtsoiidae [forame paracotilar bem desenvolvido (cap. 610); proeminência mediana na margem ventral do centro (cap. 611); vaca:dW entre 0,5 e 0,3 (cap. 634); crista lateral nas vértebras pré-cloacais abaixo do forame lateral (cap. 635); zigosfeno espesso (cap. 645); coluna neural moderadamente alta (cap. 648); forames laterais presentes dorsalmente às cristas subcentrais (cap. 650)]. Além disso, uma combinação de 6 sinapomorfias inequívocas [margem posterior do arco neural com embutimento profundo em forma de V (cap. 614); cótilo pré-cloacal oval (cap. 615); vértebras transversalmente largas (cap. 629); quilha hemal não afiada e estreita (cap. 633); coluna neural inclinada posteriormente (cap. 652); presença de processo posterior de quilha hemal (cap. 653)] apoiam a colocação de Vasuki com Gigantophis garstini e Madtsoia pisdurensis . Além disso, uma única autapomorfia caracteriza Vasuki - processo em forma de cinzel de quilha hemal (cap. 654).

Vale ressaltar que algumas das sinapomorfias citadas acima podem ser caracteres individualmente plesiomórficos, é a combinação única de caracteres que justifica a recuperação de Vasuki dentro de Madtsoiidae. Estudos anteriores (por exemplo, Head et al. 31 ; Mohabey et al. 8 ) usaram combinações de caracteres para diagnosticar Madtsoiidae e outros táxons de cobras.

Estimativa do comprimento corporal e paleoecologia

Nossas estimativas de TBL mostram que Vasuki não foi apenas o maior madtsoiid (Tabela 1 ), mas uma das maiores cobras já relatadas. Suas dimensões vertebrais perdem apenas para o Boinae Titanoboa do Paleoceno (Head et al. 31 ). Tentamos inferir a paleoecologia deste grande madtsoiídeo indiano a partir da morfologia vertebral, uma vez que vários estudos anteriores sobre outras cobras extintas (por exemplo, Palaeophis colossaeus , Powellophis e Madtsoia madagascarensis ) destacaram a importância das vértebras nas reconstruções paleoecológicas. 1 , 3 , 32 . As vértebras transversalmente largas de Vasuki apresentam principalmente sinapófises direcionadas lateralmente que teriam sido associadas a costelas direcionadas lateralmente, sugerindo um corpo largo e cilíndrico (ver McCartney et al. 32). These features suggest a non-aquatic lifestyle for Vasuki as opposed to aquatic snakes which may possess high pterapophyses and have laterally compressed vertebrae with ventrally facing synapophyses, thereby placing the ribs beneath the vertebrae3,32,36. A high pterapophysis, however, is absent in many aquatic snakes and changes in the orientation of synapophyses from ventral to lateral across the vertebral column have been previously noted in aquatic snakes such as Simoliophis37. In hydrophiine sea snakes the vertebrae show true lateral compression only in the caudal region. Therefore, the possibility of an aquatic lifestyle for this giant Indian madtsoiid cannot be completely ruled out. An arboreal lifestyle is unlikely, judging from the large size of Vasuki and the fact that arboreal snakes tend to have elongated vertebrae with short zygapophyses38. A non-fossorial habitat is inferred here for Vasuki based on large body-size and non-depressed neural arch-spine complexes which would have placed the dorsal muscles (e.g., M. Semispinalis et spinalis, M. Interarticularis superior) away from the sagittal plane (sensu Auffenburg39)1,3. Isto é ainda apoiado pela presença inferida de M. multifidus espesso dorsoventralmente , que se origina da superfície espinhal neural ântero-dorsal e se insere anteriormente na margem posterior das lâminas do arco neural da vértebra anterior. Semelhança grosseira na morfologia vertebral com pitinídeos de grande porte existentes (por exemplo, Python e Malayopython ) 40 sugere um paleohabitat terrestre/semi-aquático para Vasuki . Evidências corroborativas vêm do ambiente de deposição do horizonte de produção de Vasuki , que foi reconstruído como um pântano de fundo 23 , 41 , 42 , 43 , 44 , 45 , semelhante ao habitat dos grandes pitonídeos modernos.

Tabela 1 Comparação das estimativas de comprimento corporal de Vasuki indicus e outros matdsoiídeos de grande porte.

Vasuki é visto como uma cobra de movimento lento que possivelmente adotou um mecanismo locomotor retilíneo, conforme indicado por seu grande tamanho, vértebras anteroposteriormente curtas e transversalmente largas e ausência de processos pré-zigapofisários acessórios. 1 , 38 , 46 . Uma inferência semelhante, baseada na anatomia, também foi feita para o grande malgaxe Madtsoia madagascariensis 1 , embora a locomoção retilínea também tenha sido documentada em cobras existentes com processos pré-zigapofisários bem desenvolvidos, como víboras 47 . Apesar das incertezas associadas ao mecanismo locomotor de Vasuki , talvez fosse grande demais para ser um forrageador ativo e era mais provavelmente um predador de emboscada que subjugaria suas presas por meio de constrição, semelhante às sucuris modernas e aos pitinídeos de grande porte. 1 , 42 , 48 .

O novo madtsoiid indiano sugere um clima relativamente quente (~ 28 ° C) para a posição paleogeográfica da Índia no Eoceno Médio (início do Lutetiano) dentro da zona tropical 49 , 50 . Esta inferência decorre principalmente da dependência empiricamente derivada da temperatura corporal poiquilotérmica da temperatura ambiente, que por sua vez controla o tamanho máximo do corpo 31 , 32 , 51 . Seguindo Head et al. 31 , a paleotemperatura média anual (MAPT) para o Eoceno Médio foi estimada com base em uma relação entre a temperatura média anual atual (MAT), a diferença TBL entre Vasuki e a píton reticulada ( Malayopython reticulatus , a cobra existente mais longa conhecida) 42 e a taxa metabólica específica de massa das pítons (ver seção “ Métodos ”). O MAPT previsto fica entre 27,2 e 28,6 °C, correspondendo à faixa de temperatura necessária para a sobrevivência de uma cobra de 11 a 15 m, e sugere que os trópicos do Eoceno Médio eram 0,7 a 2,1 °C (ΔT) mais quentes do que atualmente (MAT = 26,5ºC 52 ). Essas estimativas são amplamente comparáveis ​​​​às do Paleoceno e do Cretáceo Superior com base na extinta Titanoboa (ΔT = 1,9–3,7 °C) e na rã Beelzebufo ampinga (ΔT = 2,1 °C), respectivamente. 52 . Estudos baseados em δ 18 Razões isotópicas de O de foraminíferos e índice TEX86 53 , 54 , 55 , 56 previram altas temperaturas tropicais da superfície do mar (≥ 30 ° C) durante o Eoceno Médio em ~ 47 Ma, enquanto algumas estimativas sugerem resfriamento tropical para o início do Eoceno Médio e Final, mas particularmente durante 45-34 Ma 57 , 58 . A paleotemperatura inferida aqui (<30 °C) é inferior às estimativas acima mencionadas (≥ 30 °C), mas sugere que o clima do Eoceno Médio (início do Lutetiano, ~ 47 Ma) era mais quente do que o atual.

Uma possível limitação deste estudo poderia ser o uso de um pitinídeo ( Malayopython reticulatus ) como análogo moderno, especialmente porque Pythonoidae e Madtsoiidae são filogeneticamente distantes. No entanto, a nossa escolha de um análogo moderno baseia-se no modo de forrageamento inferido e no paleohabitat terrestre/semi-aquático de Vasuki , utilizando dados anatômicos e o ambiente de deposição do horizonte fossilífero. Estes últimos são semelhantes aos dos grandes pitinídeos modernos que habitam pântanos, pântanos e florestas de várzea. 41 , 42 , 43 , 45 .

Na Índia, eventos hipertérmicos do Paleógeno, como PETM e ETM2 estão bem documentados nas bacias de Kutch e Cambay, no oeste da Índia, com base em δ 13 C excursões negativas 23 , 59 , 60 , 61 . Em comparação, os estudos sobre as paleotemperaturas do Paleógeno são escassos. Com base nas razões isotópicas de oxigênio, temperaturas superiores a 30 °C foram determinadas para o Paleoceno tardio e início do Eoceno, enquanto temperaturas mais baixas, variando entre 22 e 28 °C, foram relatadas para o Eoceno Médio-Final (~ 45-37 Ma). 62,63. Our new estimates show that while the paleoclimate during the Middle Eocene (~ 47 Ma) became cooler compared to the Late Paleocene and early Eocene, it was still higher than at present. Further studies on Paleogene climates in the context of squamate speciation and extinction pattern are necessary in view of their suggested correlation with temperature patterns64,65,66.

Paleobiogeography

Madtsoiids eram um grupo importante de cobras terrestres cuja extensão temporal abrange a fronteira do Cretáceo-Paleógeno. As ocorrências fósseis retratam uma distribuição distorcida dessas cobras, já que a maioria dos táxons são conhecidos nas massas terrestres de Gondwana, exceto na Antártida. 1,2 (Figs. 8, 9). The Laurasian record is extremely poor with madtsoiids known only from the Late Cretaceous (upper Campanian–Maastrichtian) of southern Europe9. O padrão de distribuição também mostra o aparecimento de táxons em massas de terra que foram separadas durante o Cretáceo Superior e o Cenozóico, mas que compartilham relações filogenéticas estreitas indicando ligações biogeográficas (sensu LaDuke et al. 1 ). Este enigma é apropriadamente ilustrado pela presença de Madtsoia no Cretáceo Superior (Maastrichtiano) de Madagascar e da Índia e no Paleógeno Inferior da América do Sul, e Menarana no Maastrichtiano de Madagascar e Espanha 1 , 8 (Fig. 8 ). Estudos anteriores apresentaram vários cenários para a paleobiogeografia dos madtsoiídeos, incluindo: uma distribuição pan-Gondwana, embora sem amostragem, durante o Cretáceo Inferior, seguida por extinções regionais e/vicariância; presença de pontes terrestres que permitem a dispersão entre diferentes massas terrestres de Gondwana e para a Europa; dispersão de sorteios entre continentes separados por barreiras oceânicas 1 , 8 , 9 . No entanto, Rio e Mannion 2 argumentou a favor de uma distribuição pan-Gondwanana inicial e de dispersões transtethianas entre a África e a Europa no Cretáceo Superior. O novo madtsoiid indiano do Eoceno Médio aumenta ainda mais a complexidade da biogeografia dos madtsoiid devido aos seus estreitos laços filogenéticos com o Madtsoia pisdurensis do Norte da África do Eoceno Superior do Cretáceo Superior da Índia e o Gigantophis garstini (Figs. 5 , 8 ).

Figura 8
Figura 8

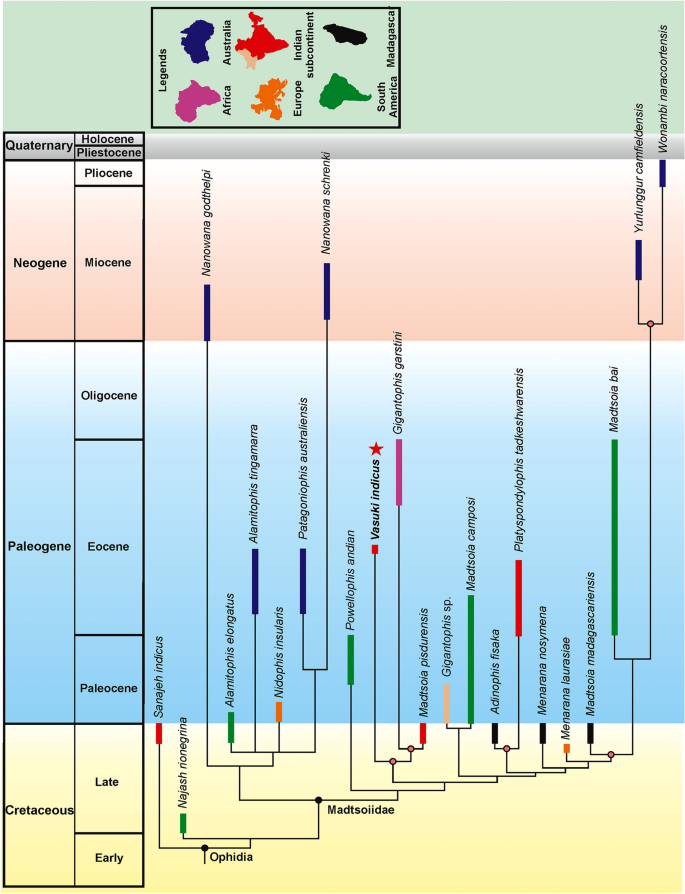
Árvore filogenética calibrada no tempo, com base na árvore de regra majoritária de 50% da Fig . A estrela vermelha indica a posição do Vasuki indicus . Os clados para os quais foram discutidos cenários biogeográficos são marcados com nós coloridos.

Figure 9
figure 9

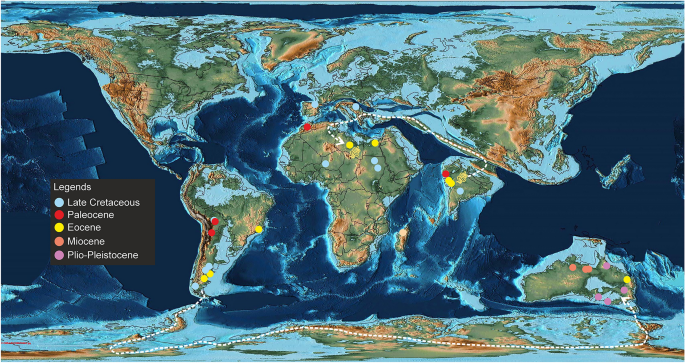
Distribuição paleogeográfica de madtsoiídeos com táxons de diferentes idades plotados juntos em um mapa simplificado do Eoceno Médio (50 Ma) para mostrar suas ocorrências espaço-temporais globais. As linhas tracejadas indicam possíveis rotas de dispersão entre a América do Sul e a Austrália e o subcontinente indiano e o Norte da África. Mapa paleogeográfico após Scotese 43 e proveniente de https://www.earthbyte.org/paleomap-paleoatlas-for-gplates/ [Este trabalho está licenciado sob a Licença Internacional Creative Commons Attribution 4.0. http://creativecommons.org/licenses/by/4.0/ ]. Fonte de informações sobre distribuição de madtsoiid no banco de dados Paleobiologia ( https://www.paleo-biodb.org/ ).

Para avaliar o significado biogeográfico de Vasuki construímos uma árvore filogenética calibrada no tempo, uma vez que esta abordagem tem sido amplamente utilizada em vários estudos anteriores para avaliar o significado paleobiogeográfico de diferentes grupos de vertebrados, incluindo cobras e dinossauros 2 , 67 , 68 , 69 . A lógica por trás desta abordagem é que as relações filogenéticas são amplamente consideradas sugestivas de laços biogeográficos. 1 , 70 , 71 , 72 . A árvore filogenética usada aqui é baseada em dados anatomicamente esparsos porque a maioria dos táxons de madtsoiid são conhecidos exclusivamente a partir de vértebras e carecem de material craniano, resultando em suporte fraco (suporte de Bremer) para a maioria dos nós internos dentro de Madtsoiidae. Por esta razão, restringimos as nossas interpretações biogeográficas apenas aos nós que tinham suporte comparativamente maior (suporte de Bremer ≥ 2; Fig. 8 ). No geral, os cenários paleobiogeográficos aqui apresentados devem ser tratados com cautela, pois futuras descobertas de fósseis podem alterar a posição filogenética de alguns táxons de madtsoiídeos e, por sua vez, as atuais inferências biogeográficas.

Não obstante as limitações acima mencionadas, a árvore resultante em nosso estudo é consistente com o consenso atual sobre as origens dos madtsoiid, pois sugere uma origem Gondwana, refletindo o fato de que todos os táxons divergentes iniciais conhecidos são de antigas massas terrestres de Gondwana (Fig. 8 ). A topologia da árvore defende trocas bióticas entre a América do Sul, Madagascar e Austrália, uma vez que o malgaxe Madtsoia madagascariensis (Cretáceo Superior) e o sul-americano Madtsoia bai (Eoceno) são grupos externos sucessivos ao clado que compreende o Neógeno Yurlunggur e Wonambi da Austrália. As reconstruções paleogeográficas retratam a fragmentação da maioria das principais massas de terra de Gondwana pelo início do Cenomaniano, com o Indo-Madagascar separando-se da Austrália-Antártica em ~ 110 Ma 73 , 74 , 75 . No entanto, estudos anteriores sugeriram que as conexões terrestres entre a América do Sul e a Austrália, facilitando a dispersão da fauna através da Antártica, persistiram até o início do Eoceno. 1 , 75 (Fig. 9 ). Por outro lado, a ligação biótica malgaxe-sul-americana-australiana pode provavelmente ser explicada pela presença de madtsoiídeos ou dos seus ancestrais comuns mais recentes nestes blocos continentais antes da sua dissolução. Estudos recentes sobre a biogeografia de madtsoiid prevêem uma dispersão pan-Gondwana dessas cobras no Cretáceo Inferior, com linhagens fantasmas de árvores calibradas no tempo prevendo uma origem aptiana de Madtsoiidae 1 , 2 , 8 , 9 , 19 . O registro fóssil, no entanto, é inconsistente com as hipotéticas origens dos madtsoiídeos do Cretáceo Inferior, uma vez que seus primeiros representantes atualmente conhecidos são do Coniaciano-Santoniano do Níger. 1 , 2 , 9 , 76 , 77 . A amostragem futura dos horizontes pré-Maastrichtianos da África e do Indo-Madagascar pode ajudar a resolver este enigma.

Os madtsoiídeos indianos, nomeadamente Vasuki indicus , Madtsoia pisdurensis e Platyspondylophis tadkeshwarensis , são divididos em dois subclados distintos (Fig. 8 ). Platyspondylophis (Ypresian) e o malgaxe Adinophis fisaka (Maastrichtiano) são recuperados como táxons-irmãos, enquanto Vasuki (antigo lutetiano) é o primeiro membro divergente de um clado que compreende Madtsoia pisdurensis (Maastrichtiano) e o norte-africano Gigantophis garstini (Priaboniano). Essas relações filogenéticas sugerem trocas bióticas do Cretáceo Superior-Paleógeno entre o subcontinente indiano, Madagascar e o Norte da África. Entre as várias hipóteses concorrentes que explicam tais ligações faunísticas, Krause et al. 74 conexões hipotéticas ( trampolins ) entre o subcontinente indiano, Madagascar e África durante o Cretáceo Superior, que foram possivelmente destruídas em eventos tectônicos subsequentes (por exemplo, subducção, vulcanismo relacionado a hotspots). O arco Omã-Kohistão-Ladakh (OKL) é outra via biogeográfica que se considera ter facilitado os intercâmbios bióticos entre o Norte da África e a Índia após a colisão do subcontinente com OKL em ~ 80 Ma 78. While there is some support from paleomagnetic and radiometric data for the 80 Ma Indo–OKL collision78, subsequent studies based on detrital zircon ages and dating of post-collisional olasses have provided alternate explanations bearing on the sequence of accretion of the OKL with India/Asia79,80. These studies support OKL–Eurasia collision by ~ 100–80 Ma, with India colliding with Asia + OKL only during the Paleogene. This makes the possibility of Late Cretaceous Indo–African faunal exchange less likely2. More recent studies based on paleomagnetic data propose an initial collision between India and Kohistan-Ladakh arc at ~ 60–50 Ma followed by their final collision with Asia at ~ 45–50 Ma, with the arc being positioned at 8.3 ± 5.6°N at ~ 66–62 Ma81,82.

Among the scenarios discussed above we consider the following to be the most plausible explanation for the Indo-Madagascar-North African biotic links suggested by phylogenetic disposition of the Indian madtsoiids:

  1. (eu)

    Uma relação de táxons irmãos entre o Maastrichtiano Malgaxe Adinophis fisaka e o indiano Platyspondylophis (Ypresian) sugere um evento de dispersão durante ou antes da separação Indo-Madagascar em ~ 88 Ma 83 . A direcção da dispersão, no entanto, permanece incerta, uma vez que a evidência fóssil disponível não permite uma avaliação crítica desta hipótese devido ao fraco registo de amostragem de depósitos malgaxes e indianos pré-Maastrichtianos. No entanto, a recuperação de Madtsoia do Maastrichtiano da Índia e de Madagascar 8 (Fig. 8 ) apoia a prevalência de suas ligações bióticas, como também sugerido por outros grupos, incluindo lagartos cordiliformes e o nigerofídeo Indophis 75 , 84 .

  2. (ii)

    Após a separação Indo-Madagascar em ~ 88 Ma, houve longos períodos de isolamento que terminaram com a colisão do subcontinente indiano + arco Kohistan-Ladakh com a Ásia no início do Paleógeno 50 , 81 , 82 resultando em caminhos biogeográficos com o Norte da África através do sul da Eurásia (Fig. 9 ).

  3. (iii)

    Vasuki , Madtsoia pisdurensis e Gigantophis garstini formam um clado distinto, com exclusão de outros, com os primeiros táxons divergentes da Índia (Fig. 8 ). Este clado também mostra ligações filogenéticas estreitas entre os táxons indianos do Cretáceo Superior e do Eoceno Médio, sugerindo uma possível origem indiana para este clado. A colocação de Gigantophis garstini dentro deste clado indica possíveis eventos de dispersão da Índia para o Norte da África após a colisão Índia-Ásia, consistente com o Eoceno Superior (Priaboniano, 37-35 Ma 2 ) age of Gigantophis and recent paleobiogeographic reconstructions showing dispersal routes between India and North Africa via southern Eurasia following the collision43 (Fig. 9). Whereas an African origin of Gigantophis garstini cannot be ruled out considering the recovery of madtsoiids from the Late Cretaceous deposits of that continent, the taxonomic and phylogenetic uncertainties offer little support for this hypothesis. However, Rio and Mannion’s2 A explicação alternativa de que uma dispersão pan-Gondwana do Cretáceo Inferior e longas linhagens fantasmas podem ter levado a relações filogenéticas estreitas entre Gigantophis garstini e os madtsoiídeos indianos, embora potencialmente válida, é atualmente fracamente apoiada devido à má amostragem.

Para resumir, identificamos uma linhagem de madtsoiídeos excepcionalmente grandes (representados pelos maiores madtsoiídeos conhecidos, Vasuki e Gigantophis garstini ) que se originaram no subcontinente indiano e posteriormente se espalharam para a África através do sul da Eurásia durante o Eoceno. A descoberta de Vasuki e a escassa cobertura anatômica dos madtsoiídeos conhecidos destacam a necessidade de uma amostragem rigorosa dos depósitos do Cretáceo Superior e do Paleógeno Gondwana. A recuperação de material adicional e novos táxons (incluindo formas de grande porte) pode fornecer mais informações sobre a sistemática e a biogeografia dos madtsoiídeos.

Métodos

Descrição osteológica

A descrição osteológica dos espécimes esqueléticos foi realizada seguindo a nomenclatura de LaDuke et al. 1 , Rio e Mannion 2 e Mohabey et al. 8 . Diferentes parâmetros dos espécimes fósseis foram medidos (Figura 2 Complementar ) utilizando paquímetros digitais Mitutoyo com precisão de 0,01 mm. Desenhos explicativos são usados ​​sempre que necessário. A terminologia para lâminas vertebrais e fossas segue Rio e Mannion 2 e Tschopp 29 .

Análise filogenética

A afinidade filogenética de Vasuki foi avaliada em duas análises separadas (Análise 1 e 2). Na Análise 1 (Conjunto de Dados Suplementares 1 ), a matriz caráter-táxon de Zaher et al. 30 foi usado. Todos os toxicoferans não-Pan-Serpentes foram removidos, exceto Varanus exanthematicus , que foi usado como grupo externo. 15 táxons madtsoiid, incluindo Vasuki , foram adicionados. A matriz caractere-táxon incluiu 72 táxons e 785 caracteres. A análise filogenética foi realizada no TNT versão 1.6 85 onde a memória do software foi configurada para reter 10.000 árvores e um buffer de exibição de 10 Mb. A opção Pesquisa Tradicional foi utilizada para analisar o conjunto de dados. As restrições para a análise incluíram 50 replicações de árvores de Wagner, nas quais o algoritmo de troca foi a reconexão de bissecção com 10 árvores salvas por replicação. Para determinar a robustez dos nós, os valores de suporte de Bremer foram calculados usando o script bremer.run no qual apenas árvores abaixo do ideal em 20 etapas foram retidas.

In Analysis 2 (Supplementary Dataset 2) all non-madtsoiid Serpentes were removed except for the basal ophidians Najash and Sanajeh. The latter taxon was used as the outgroup. The dataset combined the cranial and vertebral characters of Zaher et al.30 and Garberoglio et al.3, respectively. 3 additional madtsoiid taxa were included. The character-taxon matrix included 22 taxa and 656 characters. The analysis was performed using TNT version 1.685 following the software settings and search parameters of Analysis 1. The script bremer.run was used to calculate Bremer support values in which only trees suboptimal by 20 steps were retained.

Árvore calibrada por tempo

Isto foi construído traçando os intervalos temporais dos táxons de cobras na árvore de regras majoritárias da Análise 2 em relação a uma escala de tempo geológica numericamente calibrada. Os intervalos temporais dos táxons utilizados neste estudo foram obtidos do Banco de Dados de Paleobiologia ( https://www.paleobiodb.org/ ), Rio e Mannion 2 e Garberoglio et al. 3 .

Estimativa do comprimento do corpo

As estimativas do comprimento corporal de Vasuki foram baseadas nos conjuntos de dados de Head et al. 31 e McCartney et al. 32 . O conjunto de dados de Head et al. 31 compreende medidas de largura trans-pós-pós-zigapofisária (poW) e TBL de 21 táxons bovinos existentes, enquanto a de McCartney et al. 32 incluem medidas de largura trans-prezigapofisária e comprimento total do corpo de 21 cobras existentes.

As seguintes equações de regressão preditiva foram formuladas após

  1. 1.

    Cabeça et al. 31 :

where postzygapophyseal width (x) is equated with the total body length (y). The dataset was from vertebrae 60% posteriorly along the vertebral column, and was not log transformed as the measured parameters were approximately normally distributed (sensu Head et al.31).


  • where postzygapophyseal width (x) is equated with the total body length (y). The dataset was from vertebrae 65% posteriorly along the vertebral column, and was not log transformed as the measured parameters were approximately normally distributed (sensu Head et al.31).

  • 2.

    McCartney et al. 32 and Garberoglio et al.3:

    1. onde a largura trans-prezigapofisária (x) é igualada ao comprimento total do corpo (y). Os valores transformados em log dos parâmetros medidos foram usados ​​para normalizar o conjunto de dados.

    Em estudos anteriores, os comprimentos corporais foram estimados para cobras extintas, que fazem parte de clados existentes, usando métodos de máxima verossimilhança 31 , 32 . Cabeça et al. 31 desenvolveram um modelo que descreve a variação intracolunar da morfologia vertebral em bovinos existentes para atribuir espécimes vertebrais do boide gigante extinto Titanoboa à sua posição mais provável na coluna vertebral. Com base nos marcos vertebrais, os espécimes de Titanoboa foram combinados em uma posição 60-65% posteriormente ao longo da coluna (MTV, sensu Rio e Mannion 2 ), e as estimativas de tamanho foram obtidas regredindo o TBL no poW com base nas vértebras dos ossos existentes nessas posições. No entanto, tais modelos que mostram variação intracolunar em madtsoiídeos são atualmente inexistentes, pois muito poucas dessas cobras são conhecidas da coluna vertebral completa/quase completa. 2 . As estimativas de tamanho de Vasuki foram calculadas neste estudo usando MTV seguindo Rio e Mannion 2 , embora essas estimativas devam ser consideradas provisórias, pois os espécimes de Vasuki não podem ser atribuídos à mesma posição que as vértebras boinas usadas para formular as equações. Além disso, pode haver diferenças na relação entre poW e TBL entre boines existentes e Vasuki . Além disso, as incertezas associadas à posição filogenética de Madtsoiidae em relação às cobras-coroa impedem a formulação de modelos que mostram variação intracolunar na morfologia vertebral com base em qualquer clado existente. Consequentemente, equações de regressão preditiva, baseadas em dados de uma série de cobras existentes de McCartney et al. 32 , foram usados ​​para determinar o comprimento do corpo do novo táxon indiano e, portanto, os comprimentos estimados, embora razoáveis, também devem ser tratados com cautela.

    Estimativa da paleotemperatura

    As estimativas da paleotemperatura foram obtidas usando a seguinte equação fornecida em Head et al. 31 :

    onde MAPT é a paleotemperatura média anual; MAT é a temperatura média anual atual (26,5 °C 52 ); TBL M = 10,05 m é o comprimento total máximo do corpo de Malayopython reticulatus 41 ; TBL V é o comprimento corporal máximo estimado de Vasuki (15,2 m); Q 10 (taxa metabólica específica de massa de pitinídeos) = 2,6 86 ; α (componente de escala metabólica) = 0,17 52 , 87 .

    Como Madtsoiidae é um clado extinto, o comprimento do corpo de Malayopython reticulatus (Serpentes, Pythonidae) foi usado no estudo, pois é a cobra existente mais longa conhecida 42 . A escolha do Malayopython como o análogo moderno é baseada na semelhança na morfologia vertebral grosseira e no modo de vida e habitat inferido entre Vasuki e os pythonídeos de grande corpo existentes 40 , 41 , 42 , 43 , 45 . No entanto, na ausência de representantes existentes de madtsoiídeos ou de seus parentes próximos, os valores estimados da paleotemperatura devem ser tratados com cautela.

    Disponibilidade de dados

    Todos os dados associados ao manuscrito são fornecidos no Arquivo Suplementar.

    Code availability

    Nomenclatural acts. This published work and the nomenclatural acts it contains have been registered in Zoo- Bank, the proposed online registration system for the International Code of Zoological Nomenclature (ICZN). The LSIDs for this publication are urn:lsid:zoobank.org:act: 2F44E9BE-AE99-45E8-A132-D36A935D3B36 (Vasuki) and urn:lsid:zoobank.org:act: 0DD3FB9F-A500-4FFE-842C-EFE51EC76E4D (V. indicus).

    Abbreviations

    AMNH:

    American Museum of Natural History, New York

    CPAG:

    Centre of Pure and Applied Geology, University of Sindh, Pakistan

    DGM:

    Departamento Nacional de Produção Mineral, Rio de Janeiro, Brazil

    FMNH:

    The Field Museum, Chicago, USA

    IITR/VPL/SB:

    Laboratório de Paleontologia de Vertebrados, Instituto Indiano de Tecnologia Roorkee, Roorkee, Índia

    LPB FGGUB:

    Laboratório de Paleontologia, Faculdade de Geologia e Geofísica, Universidade de Bucareste, Bucareste, Romênia

    MPEF-PV:

    Coleção Paleontológica de Vertebrados, MuseoPaleontológico Egidio Feruglio, Trelew, Província de Chubut, Argentina

    NTM:

    Museu do Território do Norte, Austrália

    NHMUK:

    Museu de História Natural, Londres, Reino Unido

    QMF:

    Museu de Queensland, Brisbane, Austrália

    PVL:

    Coleção Paleontológica de Vertebrados do Instituto Miguel Lillo, San Miguel de Tucumán, Argentina

    WIF/A:

    Instituto Wadia de Geologia do Himalaia, Dehradun, Índia

    Referências

    1. Laduke, T. C., Krause, D. W., Scanlon, J. D. & Kley, N. J. A late cretaceous (Maastrichtian) snake assemblage from the Maevarano formation, Mahajanga basin, Madagascar. J. Vertebr. Paleontol. 30, 109–138 (2010).

      Article  Google Scholar 

    2. Rio, J. P. & Mannion, P. D. The osteology of the giant snake Gigantophis garstini from the upper Eocene of North Africa and its bearing on the phylogenetic relationships and biogeography of Madtsoiidae. J. Vertebr. Paleontol. 37, e1347179 (2017).

      Article  Google Scholar 

    3. Garberoglio, FF, Triviño, LN & Albino, A. Uma nova cobra madtsoiida do Paleógeno da América do Sul (noroeste da Argentina), baseada em um esqueleto pós-craniano articulado. J. Vertebr. Paleontol. 42 , e2128687 (2022).

      Artigo   Google Scholar  

    4. Albino, AM Simpósio sobre a Evolução dos Vertebrados Mesozóicos. Em Anais IV Congresso Argentino de Paleontologia e Bioestratigrafia (ed. Bonaparte, JF) (Formação Los Alamitos, 1986).

      Google Scholar  

    5. Albino, AM Uma nova cobra (Reptilia) no Cretáceo Superior da Patagônia, Argentina. Pesquisas 21 , 58–63 (1994).

      Google Scholar  

    6. Rage, JC, Prasad, GVR & Bajpai, S. Cobras adicionais do Cretáceo Superior (Maastrichtiano) da Índia. Cretaco. Res. 25 , 425–434 (2004).

      Artigo   Google Scholar  

    7. Gómez, RO, Garberoglio, FF & Rougier, GW Uma nova cobra do Cretáceo Superior da Patagônia: Filogenia e tendências na evolução do tamanho corporal de cobras madtsoiid. CR Palevol. 18 , 771–781 (2019).

      Artigo   Google Scholar  

    8. Mohabey, DM, Head, JJ & Wilson, JA Uma nova espécie de cobra Madtsoia do Cretáceo Superior da Índia e suas implicações paleobiogeográficas. J. Vertebr. Paleontol. 31 , 588–595 (2011).

      Artigo   Google Scholar  

    9. Vasile, Ş, Csiki-Sava, Z. & Venczel, M. Uma nova cobra madtsoiid do Cretáceo Superior da Bacia Haţeg, oeste da Romênia. J. Vertebr. Paleontol. 33 , 1100–1119 (2013).

      Artigo   Google Scholar  

    10. Simpson, GG Um novo fóssil de cobra dos leitos de Notostylops da Patagônia. Touro. Sou. Mus. Nat. História. 67 , 1–22 (1933).

      Google Scholar  

    11. Scanlon, JD Uma nova grande cobra madtsoiid do Mioceno do Território do Norte. O Beagle 9 , 49–60 (1992).

      Google Scholar  

    12. Scanlon, JD Nanowana gen. nov., pequenas cobras madtsoiid do Mioceno de Riversleigh: espécies simpátricas com dentição divergentemente especializada. Mem. Qd Mus. 41 , 393–412 (1997).

      Google Scholar  

    13. Rage, J.-C. Fossil snakes from the Palaeocene of São José de Itaboraí, Brazil. Part I. Madtsoiidae, Aniliidae. Palaeovertebrata 27 , 109–144 (1998).

      Google Scholar  

    14. Rage, J.-C. e outros. Cobras do início do Eoceno de Kutch, Índia Ocidental, com uma revisão dos Palaeophiidae. Geodiversitas 25 , 695–716 (2003).

      Google Scholar  

    15. Rage, J.-C. e outros. Uma fauna diversificada de cobras do início do Eoceno da Mina Vastan Lignite, Gujarat, Índia. Acta Paleontol. Pol. 53 , 391–403 (2008).

      Artigo   Google Scholar  

    16. Rage, J.-C. et al. First report of the giant snake Gigantophis (Madtsoiidae) from the Paleocene of Pakistan: Paleobiogeographic implications. Geobios 47, 147–153 (2014).

      Artigo   Google Scholar  

    17. Scanlon, JD & Lee, MSY A serpente Wonambi do Pleistoceno e a evolução inicial das cobras. Natureza 403 , 416–420 (2000).

      Artigo   ADS   CAS   PubMed   Google Scholar  

    18. Wilson, JA, Mohabey, DM, Peters, SE & Head, JJ Predação de dinossauros filhotes por uma nova cobra do Cretáceo Superior da Índia. PLoS Biol. 8 , e1000322 (2010).

      Artigo   PubMed   PubMed Central   Google Scholar  

    19. Longrich, NR, Bhullar, BAS & Gauthier, JA Uma cobra de transição do período Cretáceo Superior da América do Norte. Natureza 488 , 205–208 (2012).

      Artigo   ADS   CAS   PubMed   Google Scholar  

    20. Martill, DM, Tischlinger, H. & Longrich, NR Uma cobra quadrúpede do Cretáceo Inferior de Gondwana. Ciência 349 , 416–419 (2015).

      Artigo   ADS   CAS   PubMed   Google Scholar  

    21. Smith, T. et al. Uma nova assembleia de vertebrados do início do Eoceno do oeste da Índia revela uma fauna mista de afinidades europeias e gondwanas. Geociências. Frente. 7 , 969–1001 (2016).

      Artigo   Google Scholar  

    22. Wazir, WA et al. Uma descoberta no Ladakh Himalaia revela a sobrevivência de cobras madtsoiid (Serpentes, Madtsoiidae) na Índia até o final do Oligoceno. J. Vertebr. Paleontol. 41 , e20584012021 (2021).

      Artigo   Google Scholar  

    23. Agrawal, S. et al. Depósitos de linhita da Bacia de Kutch, oeste da Índia: assinaturas isotópicas e palinológicas de carbono do evento hipertérmico ETM2 do início do Eoceno. J. Ciência da Terra Asiática. 146 , 296–303 (2017).

      Artigo   ANÚNCIOS   Google Scholar  

    24. Westerhold, T., Röhl, U., Donner, B. & Zachos, JC Extensão global dos eventos hipertérmicos do início do Eoceno: Um novo registro de isótopos foraminíferos bentônicos do Pacífico de Shatsky Rise (ODP Site 1209). Paleoceanogr. Paleoclimatol. 33 , 626–642 (2018).

      Artigo   ANÚNCIOS   Google Scholar  

    25. Smith, MJ Pequenos vertebrados fósseis de Victoria Cave, Naracoorte, Sul da Austrália IV. Répteis. Trad. R.Soc. S. Aust. 100 , 39–51 (1976).

      Google Scholar  

    26. Scanlon, JD Crânio da grande cobra não macrostomatana Yurlunggur do Oligo-Mioceno australiano. Natureza 439 , 839–842 (2006).

      Article  ADS  CAS  PubMed  Google Scholar 

    27. Pritchard, A. C., McCartney, J. A., Krause, D. W. & Kley, N. J. New snakes from the Upper Cretaceous (Maastrichtian) Maevarano Formation, Mahajanga Basin, Madagascar. J. Vertebr. Paleontol. 34, 1080–1093 (2014).

      Article  Google Scholar 

    28. Scanlon, J. D. Australia’s oldest known snakes: Patagoniophis, Alamitophis, and cf. Madtsoia (Squamata: Madtsoiidae) from the Eocene of Queensland. Mem. Queensl. Mus. 51, 215–235 (2005).

      Google Scholar 

    29. Tschopp, E. Nomenclatura de lâminas vertebrais em lagartos, com comentários sobre variação ontogenética e serial em Lacertini (Squamata, Lacertidae). PLoS ONE 11 , e0149445 (2016).

      Artigo   PubMed   PubMed Central   Google Scholar  

    30. Zaher, H., Mohabey, DM, Grazziotin, FG e Wilson Mantilla, JA O crânio de Sanajeh indicus , uma cobra do Cretáceo com uma barra temporal superior e a origem da alimentação ofídica de boca larga. Zoológico. J. Linn. Soc. 197 , 656–697 (2023).

      Artigo   Google Scholar  

    31. Cabeça, JJ et al. A cobra boid gigante dos neotrópicos do Paleoceno revela temperaturas equatoriais passadas mais quentes. Natureza 457 , 715–717 (2009).

      Artigo   ADS   CAS   PubMed   Google Scholar  

    32. McCartney, JA, Roberts, EM, Tapanila, L. & Oleary, MA Grandes cobras paleofiídeos e nigerofiídeos dos depósitos do Paleógeno Trans-Saharan Seaway do Mali. Acta Paleontol. Pol. 63 , 207–220 (2018).

      Artigo   Google Scholar  

    33. Zaher, H. & Scanferla, CA O crânio da cobra do Cretáceo Superior Dinilysia patagonica Smith-Woodward, 1901, e sua posição filogenética revisitada. Zoológico. J. Linn. Soc. 164 , 194–238 (2012).

      Artigo   Google Scholar  

    34. Hsiang, AY et al. A origem das cobras: revelando a ecologia, o comportamento e a história evolutiva das primeiras cobras usando genômica, fenômica e registro fóssil. BMC Evol. Biol. 15 , 1–22 (2015).

      Artigo   Google Scholar  

    35. Harrington, SM & Reeder, TW Inferência filogenética e datação por divergência de cobras usando moléculas, morfologia e fósseis: Novos insights sobre a evolução convergente da morfologia alimentar e redução de membros. Biol. J. Linn. Soc. 121 , 379–394 (2017).

      Article  Google Scholar 

    36. Georgalis, G. L. First potential occurrence of the large aquatic snake Pterosphenus (Serpentes, Palaeophiidae) from Nigeria, with further documentation of Pterosphenus schweinfurthi from Egypt. Alcheringa 1, 1–9 (2023).

      Google Scholar 

    37. Rage, J. C., Vullo, R. & Néraudeau, D. The mid-Cretaceous snake Simoliophis rochebrunei Sauvage, 1880 (Squamata: Ophidia) from its type area (Charentes, southwestern France): Redescription, distribution, and palaeoecology. Cretac. Res. 58, 234–253 (2016).

      Artigo   Google Scholar  

    38. Johnson, RG O significado adaptativo e filogenético da forma vertebral em cobras. Evolução 9 , 367–388 (1955).

      Artigo   Google Scholar  

    39. Auffenberg, W. Observações adicionais sobre a evolução da musculatura do tronco em cobras. Sou. Médio. Nat. 65 , 1–16 (1961).

      Artigo   Google Scholar  

    40. Szyndlar, Z. & Georgalis, GL Um atlas ilustrado da morfologia vertebral de cobras não cenofídicas existentes, com ênfase especial nas porções cloacal e caudal da coluna. Vértebra. Zoológico. 73 , 717–886 (2023).

      Artigo   Google Scholar  

    41. Murphy, JC & Henderson, RW Contos de cobras gigantes: uma história natural de sucuris e pítons (Krieger, 1997).

      Google Scholar  

    42. Auliya, M., Mausfeld, P., Schmitz, A. & Böhme, W. Revisão da píton reticulada ( Python reticulatus Schneider, 1801) com a descrição de novas subespécies da Indonésia. Naturwissenschaften 89 , 201–213 (2002).

      Artigo   ADS   CAS   PubMed   Google Scholar  

    43. Reed, RN & Rodda, GH Giant Constrictors: Perfis biológicos e de manejo e uma avaliação de risco de estabelecimento para nove grandes espécies de pítons, sucuris e jibóias (Departamento do Interior dos EUA, US Geological Survey, 2009).

    44. Babar, M. E. et al. Biology, habitat and conservation of Indian Rock Python—A brief review. J. Anim. Plant Sci. 29, 349–352 (2019).

      ADS  Google Scholar 

    45. Burger, R. Ecologia da Python Reticulada (Malayopython reticulatus): Vida em uma Paisagem Alterada 212. Dissertação de doutorado, Universidade de Cardiff (2022).

    46. Mosauer, W. Sobre a locomoção das cobras. Ciência 76 , 583–585 (1932).

      Artigo   ADS   CAS   PubMed   Google Scholar  

    47. Marvi, H., Bridges, J. & Hu, DL Cobras imitam minhocas: Propulsão usando ondas viajantes retilíneas. JR Soc. Interface 10 , 20130188 (2013).

      Artigo   PubMed   PubMed Central   Google Scholar  

    48. Rivas, J. A História de Vida da Anaconda Verde (Eunectes murinus), com Ênfase em Sua Biologia Reprodutiva . Dissertação, Univ. Tenessi (2000).

    49. Shukla, A. et al. Temperaturas terrestres equatoriais frias e monções do sul da Ásia no início do Eoceno: evidências da mina Gurha, Rajastão, Índia. Paleogeogr. Paleoclimatol. Paleoecol. 412 , 187–198 (2014).

      Artigo   Google Scholar  

    50. Scotese, C. R. PALEOMAP PaleoAtlas for GPlates and the PaleoData Plotter Program, PALEOMAP Project. http://www.earthbyte.org/paleomap--‐paleoatlas--‐for--‐gplates/, https://doi.org/10.13140/RG2.2.34367.00166 (2016).

    51. Makarieva, A. M., Gorshkov, V. G. & Li, B.-L. Gigantism, temperature and metabolic rate in terrestrial poikilotherms. Proc. R. Soc. Lond. B 272, 2325–2328 (2005).

      Google Scholar 

    52. Makarieva, AM, Gorshkov, VG & Li, BL Recalibrando o paleotermômetro de cobra. Natureza 460 , E2–E3 (2009).

      Artigo   ADS   CAS   Google Scholar  

    53. Pearson, PN et al. Temperaturas quentes da superfície do mar tropical nas épocas do Cretáceo Superior e Eoceno. Natureza 413 , 481–487 (2001).

      Artigo   ADS   CAS   PubMed   Google Scholar  

    54. Pearson, PN et al. Clima tropical quente estável durante a Época Eocena. Geologia 35 , 211–214 (2007).

      Artigo   ANÚNCIOS   Google Scholar  

    55. Cramwinckel, MJ et al. Evolução síncrona da temperatura tropical e polar no Eoceno. Natureza 559 , 382–386 (2018).

      Artigo   ADS   CAS   PubMed   Google Scholar  

    56. Evans, D. et al. Clima de estufa do Eoceno revelado por termometria de isótopos aglomerados acoplados-Mg/Ca. Processo. Nacional. Acad. Ciência. EUA 115 , 1174–1179 (2018).

      Artigo   ADS   CAS   PubMed   PubMed Central   Google Scholar  

    57. Inglis, GN et al. Descida em direção à Casa de Gelo: resfriamento da superfície do mar no Eoceno inferido a partir de distribuições GDGT. Paleoceanografia 30 , 1000–1020 (2015).

      Artigo   ANÚNCIOS   Google Scholar  

    58. Zachos, J. et al. Tendências, ritmos e aberrações no clima global de 65 milhões de anos até o presente. Ciência 292 , 686–693 (2001).

      Artigo   ADS   CAS   PubMed   Google Scholar  

    59. Clementz, M. et al. Early Eocene warming events and the timing of terrestrial faunal exchange between India and Asia. Geology 39, 15–18 (2011).

      Article  ADS  CAS  Google Scholar 

    60. Samanta, A. et al. Do the large carbon isotopic excursions in terrestrial organic matter across Paleocene–Eocene boundary in India indicate intensification of tropical precipitation? Palaeogeogr. Palaeoclimatol. Palaeoecol. 387, 91–103 (2013).

      Article  Google Scholar 

    61. Mitra, A., Dutta, R. & Halder, K. Um estudo sobre moluscos bentônicos e isótopos estáveis ​​​​de Kutch, oeste da Índia, revela hipertérmicas do início do Eoceno e transgressão pronunciada durante eventos ETM2 e H2. Suíço J. Paleontol. 141 , 1–22 (2022).

      Artigo   Google Scholar  

    62. Saraswati, PK, Ramesh, R. & Navada, SV Temperaturas isotópicas Palaeogene do oeste da Índia. Lethaia 26 , 89–98 (1993).

      Artigo   Google Scholar  

    63. Khanolkar, S. & Saraswati, PK Biofácies foraminíferas do Eoceno na Bacia de Kutch (Índia) no contexto de paleoclima e paleoecologia. J. Paleogeogr. 8 , 1–16 (2019).

      Artigo   Google Scholar  

    64. Prothero, DR As extinções do final do Eoceno-oligoceno. Anu. Rev. Planeta Terra. Ciência. 22 , 145–165 (1994).

      Artigo   ANÚNCIOS   Google Scholar  

    65. Rage, J. C. Mesozoic and Cenozoic squamates of Europe. Paleobiodivers. Paleoenviron. 93, 517–534 (2013).

      Article  Google Scholar 

    66. Cyriac, V. P. & Kodandaramaiah, U. Paleoclimate determines diversification patterns in the fossorial snake family Uropeltidae Cuvier, 1829. Mol. Phylogenet. Evol. 116, 97–107 (2017).

      Article  PubMed  Google Scholar 

    67. Delcourt, R. & Grillo, O. N. Tyrannosauroids from the Southern Hemisphere: Implications for biogeography, evolution, and taxonomy. Palaeogeogr. Palaeoclimatol. Palaeoecol. 511, 379–387 (2018).

      Article  Google Scholar 

    68. Whitlock, JA e Mantilla, JAW O dinossauro saurópode do Jurássico Superior ' Morosaurus' agilis Marsh, 1889 reexaminado e reinterpretado como um dicraeossaurídeo. J. Vertebr. Paleontol. 40 , e1780600 (2020).

      Artigo   Google Scholar  

    69. Bajpai, S. et al. Fósseis do dinossauro diplodocóide mais antigo sugerem que a Índia era um importante centro de radiação neossauropode. Ciência. Rep. 13 , 12680 (2023).

      Artigo   ADS   CAS   PubMed   PubMed Central   Google Scholar  

    70. Krause, DW, Sampson, SD, Carrano, MT & O'Connor, PM Visão geral da história da descoberta, taxonomia, filogenia e biogeografia de Majungasaurus crenatissimus (Theropoda: Abelisauridae) do Cretáceo Superior de Madagascar. J. Vertebr. Paleontol. 27 , 1–20 (2007).

      Artigo   Google Scholar  

    71. Gallina, PA, Apesteguia, S., Haluza, A. & Canale, JI Um saurópode diplodocídeo sobrevivente do Cretáceo Inferior da América do Sul. PLoS ONE 9 , e97128 (2014).

      Artigo   ADS   PubMed   PubMed Central   Google Scholar  

    72. Mohabey, DM, Samant, B., Vélez-Rosado, KI & Wilson Mantilla, JA Uma revisão de dinossauros terópodes de corpo pequeno do Cretáceo Superior da Índia, com descrição de novos restos cranianos de um noasaurídeo (Theropoda: Abelisauria). J. Vertebr. Paleontol. 43 , e2288088 (2023).

      Artigo   Google Scholar  

    73. Ali, J. R. & Krause, D. W. Late Cretaceous bioconnections between Indo-Madagascar and Antarctica: Refutation of the Gunnerus Ridge causeway hypothesis. J. Biogeogr. 38, 1855–1872 (2011).

      Article  Google Scholar 

    74. Krause, DW et al. A história biogeográfica mesozóica dos vertebrados terrestres de Gondwana: percepções do registro fóssil de Madagascar. Anu. Rev. Planeta Terra. Ciência. 47 , 519–553 (2019).

      Artigo   ADS   CAS   Google Scholar  

    75. Wilf, P. et al. Esplêndido e raramente isolado: A paleobiogeografia da Patagônia. Anu. Rev. Planeta Terra. Ciência. 41 , 561–603 (2013).

      Artigo   ADS   CAS   Google Scholar  

    76. Head, JJ, Howard, AF & Muller, J. A origem e a história evolutiva inicial das cobras (Cambridge University Press, 2022).

      Google Scholar  

    77. Rage, J.-C. Os continentes periatlânticos no Cretáceo Superior: migrações de faunas continentais e problemas paleogeográficos. Cretaco. Res. 2 , 65–84 (1981).

      Artigo   ANÚNCIOS   Google Scholar  

    78. Chatterjee, S., Scotese, CR & Bajpai, S. A inquieta placa indiana e sua viagem épica de Gondwana à Ásia: sua evolução tectônica, paleoclimática e paleobiogeográfica. Geol. Soc. Sou. 529 , 1–147 (2017).

      Google Scholar  

    79. Borneman, NL et al. Idade e estrutura da sutura Shyok na região de Ladakh, no noroeste da Índia: implicações para o deslizamento no sistema de falhas de Karakoram. Tectônica 34 , 2011–2033 (2015).

      Artigo   ANÚNCIOS   Google Scholar  

    80. Andjić, G., Zhou, R., Jonell, TN & Aitchison, JC Um único arco Dras – Kohistan – Ladakh revelado por registros vulcaniclásticos. Geoquímica. Geofísica. Geossist. 23 , e2021GC010042 (2022).

      Artigo   ANÚNCIOS   Google Scholar  

    81. Martin, CR et al. A latitude paleocena do arco Kohistan-Ladakh indica colisão em vários estágios Índia-Eurásia. Processo. Nacional. Acad. Ciência. EUA 117 , 29487–29494 (2020).

      Artigo   ADS   CAS   PubMed   PubMed Central   Google Scholar  

    82. Jin, S. et al. Uma grande Índia menor e uma colisão do Eoceno Médio-Início com a Ásia. Geofísica. Res. Vamos. 50 , e2022GL101372 (2023).

      Artigo   ANÚNCIOS   Google Scholar  

    83. Reeves, C. A posição de Madagascar dentro de Gondwana e seus movimentos durante a dispersão de Gondwana. J. Afr. Ciências da Terra. 94 , 45–57 (2014).

      Article  Google Scholar 

    84. Yadav, R., Bajpai, S., Maurya, A. S. & Čerňanský, A. The first potential cordyliform (Squamata, Scincoidea) from India (uppermost Cretaceous–lowermost Paleocene): An African lizard clade brings possible implications for Indo-Madagascar biogeographic links. Cretac. Res. 150, 105606 (2023).

      Article  Google Scholar 

    85. Goloboff, P. A. & Morales, M. E. TNT version 1.6, with a graphical interface for MacOS and Linux, including new routines in parallel. Cladistics 39, 144–153 (2023).

      Article  PubMed  Google Scholar 

    86. Bedford, GS & Christian, KA Taxa metabólica padrão e temperaturas corporais preferidas em algumas pítons australianas. Austrália. J. Zool. 46 , 317–328 (1998).

      Artigo   Google Scholar  

    87. Chappell, MA & Ellis, TM Taxas metabólicas de repouso em cobras boid: relações alométricas e efeitos de temperatura. J. Comp. Fisiol. B 157 , 227–235 (1987).

      Artigo   CAS   PubMed   Google Scholar  

    Baixar referências

    Reconhecimentos

    Os autores agradecem os comentários úteis, sugestões e uma crítica construtiva do manuscrito pelos revisores e pelo Editor, Scientific Reports. Os autores também agradecem a Ritu Sharma, Debasis Das, Vivesh Vir Kapur, N. Saravanan, Lisa Cooper, Lauren Stevens e Hans Thewissen pela ajuda durante o trabalho de campo e a Aatreyee Saha, Abhay Rautela e Poonam Verma pela ajuda e discussões. O Conselho de Pesquisa em Ciência e Engenharia (SERB) (Bolsa nº PDF/2021/00468 como Bolsa Nacional de Pós-Doutorado para DD) e o Departamento de Ciência e Tecnologia (Projeto nº SR/S4/ES-222/2006 para SB) , O governo da Índia é reconhecido pelo apoio financeiro. DD gostaria de agradecer ao IIT Roorkee por fornecer instalações de infraestrutura. SB gostaria de agradecer o apoio obtido do IIT Roorkee como parte de sua cátedra no Instituto.

    Informação sobre o autor

    Autores e Afiliações

    Contribuições

    SB e DD conceberam o problema. SB coletou os fósseis. DD e SB analisaram e interpretaram os dados e redigiram o manuscrito. SB e DD estiveram envolvidos em revisões posteriores.

    Autores correspondentes

    Correspondência para Debajit Datta ou Sunil Bajpai .

    Declarações éticas

    Interesses competitivos

    Os autores declaram não haver interesses conflitantes.

    Informações adicionais

    Nota do editor

    A Springer Nature permanece neutra em relação a reivindicações jurisdicionais em mapas publicados e afiliações institucionais.

    Informação suplementar

    Direitos e permissões

    Acesso aberto Este artigo está licenciado sob uma Licença Creative Commons Atribuição 4.0 Internacional, que permite o uso, compartilhamento, adaptação, distribuição e reprodução em qualquer meio ou formato, desde que você dê o devido crédito ao(s) autor(es) original(is) e à fonte, forneça um link para a licença Creative Commons e indique se foram feitas alterações. As imagens ou outros materiais de terceiros neste artigo estão incluídos na licença Creative Commons do artigo, salvo indicação em contrário na linha de crédito do material. Se o material não estiver incluído na licença Creative Commons do artigo e o uso pretendido não for permitido por regulamentação legal ou exceder o uso permitido, você precisará obter permissão diretamente do detentor dos direitos autorais. Para visualizar uma cópia desta licença, visite http://creativecommons.org/licenses/by/4.0/ .

    Reimpressões e permissões

    Sobre este artigo

    Verifique se há atualizações.  Verifique a moeda e a autenticidade via CrossMark

    Cite este artigo

    Datta, D., Bajpai, S. A maior cobra madtsoiid conhecida do período quente do Eoceno da Índia sugere dispersão intercontinental de Gondwana. Sci Rep 14 , 8054 (2024). https://doi.org/10.1038/s41598-024-58377-0